92. Uzaklıkla yalıtım ve peyzaj genetiği
Şablon kimliği: uzaklikla_yalitim · Kategori: genetik · Dil: R · Dosya: pro/sablonlar/genetik/uzaklikla_yalitim.R (satır 1–421; üstbilgi 1–126) · Örnek veri: _ornek/abies_cilicica.csv · Paketler: hierfstat 0.5-11, vegan 2.7-6
92.1 Ne işe yarar
Canlıların çoğu doğduğu yerden uzağa gitmez; yakın yaşayanlar daha sık çiftleşir ve genetik olarak birbirine benzer. Aralarındaki coğrafi uzaklık arttıkça popülasyonların (ya da bireylerin) genetik farklılığının da artmasına uzaklıkla yalıtım denir (Wright, 1943). Şablonun cevapladığı soru: "Genetik uzaklık coğrafi uzaklıkla birlikte artıyor mu; artıyorsa hangi hızla ve hangi uzaklığa kadar?" Şablon genotiplerden bir genetik uzaklık matrisi, koordinatlardan bir coğrafi uzaklık matrisi kurar ve ikisini üç yoldan karşılaştırır: Mantel testi (ilişki var mı), regresyon (eğim ne kadar) ve Mantel korelogramı (hangi uzaklık aralığında).
- F_{ST}: iki popülasyon arasındaki farklılaşma (Weir ve Cockerham kestirimi); F_{ST}/(1-F_{ST}): Rousset'nin (1997) doğrusallaştırılmış uzaklığı.
- d: iki popülasyon arasındaki coğrafi uzaklık.
- D: etkin birey yoğunluğu; \sigma^2: ebeveyn ile yavrunun doğum yerleri arasındaki uzaklığın (bir eksen boyunca) varyansı.
- 4\pi D\sigma^2: Wright'ın komşuluk büyüklüğü; eğimin tersidir. Tek boyutlu yaşam alanında (akarsu, kıyı) ilişki \ln d yerine d ile doğrusaldır ve b=1/(4D\sigma^2)'dir.
- Sıfır hipotezi (Mantel testi): iki uzaklık matrisi ilişkisizdir; seçenek hipotezi tek yönlüdür (r>0).
Çevre değişkenleri verilirse şablon kısmi Mantel testleriyle "coğrafya sabitken çevre farkı genetik farkı açıklıyor mu" sorusunu (çevreyle yalıtım; Wang ve Bradburd, 2014) da sınar.
Ne zaman kullanılır? Örnekleme yerlerinin koordinatları biliniyorsa; popülasyonlar ya da bireyler bir alana (ya da bir hat boyunca) yayılmışsa; farklılaşmanın coğrafi uzaklıkla açıklanıp açıklanmadığı, başka bir yapı (engel, küme) aramadan önce denetlenecekse; gen akışının ölçeği (komşuluk büyüklüğü) kestirilecekse.
Ne zaman kullanılmaz?
- Uzaklık matrisleri genetik değilse (tür bolluğu, Bray–Curtis):
permanova_mantel(ekoloji kategorisi). Bu şablon ona genetik uzaklık tanımlarını, regresyonu ve korelogramı ekler. - Yalnız ikili F_{ST} tablosu ve güven aralıkları isteniyorsa:
f_istatistikleri(Bölüm 71); başka popülasyon uzaklıkları ve ağaç içingenetik_uzaklik(Bölüm 74). - Yapı sürekli bir eğim değil de ayrık kümelerse:
populasyon_yapisi(Bölüm 84). Kümelenmiş veri Mantel testinde uzaklıkla yalıtım gibi görünebilir (92.8). - Hiyerarşik gruplama (bölge / popülasyon) sınanacaksa:
amova(Bölüm 63) ya da dizi verisindedizi_amova(Bölüm 68). - Veri DNA dizisiyse: bu şablon genotip okur, hazır bir uzaklık matrisi kabul etmez. İkili \Phi_{ST}/(1-\Phi_{ST}) değerleri
dizi_amova(Bölüm 68) ile üretilir; bunların coğrafi uzaklıkla Mantel testi içinbos_rşablonunda (Bölüm 61)vegan::mantelçağrılır. - Haploit ya da poliploit genotip: ayrıştırıcı yalnız diploit genotip kabul eder.
Temel programla ilişki. Temel programda uzaklık matrisi kuran ya da iki matrisi karşılaştıran bir analiz yoktur; genetik uzaklık, Mantel testi ve korelogram yalnız MerQuR+ şablonlarında bulunur.
92.2 Şablonun girdileri
Form, üstbilgideki on altı [[param]] bloğundan kurulur (uzaklikla_yalitim.R:11–118).
| Alan (form etiketi) · ad | Tür · sekme | Varsayılan | Geçerli değerler | Kodda etkisi |
|---|---|---|---|---|
Lokus sütunları · lokuslar |
sütunlar · Değişkenler | yok | en az 1 sütun | Genotiplerin alel indekslerine çevrilmesi (137, 163–173). |
Popülasyon · populasyon |
kategorik sütun · Değişkenler | boş | popülasyon düzeyinde zorunlu | Popülasyon etkeni; eksik etiketli bireylerin atılması (140, 147, 151, 160). |
x koordinatı ya da boylam · x |
sayısal sütun · Değişkenler | ilk sayısal sütun | sayısal | Coğrafi uzaklık; sütun değerleriyle okunur (149, 156–159, 192). |
y koordinatı ya da enlem · y |
sayısal sütun · Değişkenler | ilk sayısal sütun | sayısal | Coğrafi uzaklık; sütun değerleriyle okunur (149, 156–159, 192). |
Çözümleme düzeyi · duzey |
seçim · Model | popülasyon | populasyon, birey |
Birimlerin popülasyon ya da birey olması (138, 188, 240). |
Genetik uzaklık · genetik_uzaklik |
seçim · Model | Rousset | popülasyon: fst_rousset, edwards, nei; birey: oklid, paylasilan_alel |
Uzaklık matrisi (139, 197–237, 245–273). |
Popülasyonda tamamen eksik lokus · eksik_lokus |
seçim · Seçenekler | atla |
atla, sifir_frekans |
Yalnız Edwards ve Nei'de (212, 223, 227–230). |
Koordinat türü · koordinat |
seçim · Değişkenler | oklid |
oklid, enlem_boylam |
Öklid ya da büyük çember uzaklığı (158, 177–183). |
Regresyon: yaşam alanı boyutu · boyut |
seçim · Model | iki |
iki, bir |
Regresyonun yatay ekseni: \ln d ya da d; iki boyutta Mantel tablosunun "Mantel, ln(uzaklık)" satırı (327, 361–363, 375–376). |
Çevre değişkenleri · cevre |
sütunlar (sayısal) · Değişkenler | boş | boş olabilir | Çevre uzaklığı ve kısmi Mantel; sütunlar değerleriyle okunur (152–154, 238, 274, 343–352). |
Alel ayırıcısı · ayirici |
metin · Değişkenler | / |
boş olmayan metin | Genotip metninin bölünmesi (141, 165). |
Eksik genotip kodları · eksik_kodlar |
metin · Değişkenler | boş | virgülle ayrılmış kodlar | Boşsa varsayılan liste (boş hücre, NA, 0, 00, 000, ?, -, ., -9) eksik sayılır; doluysa alandaki kodlar bu listenin yerine geçer (boş hücre ve NA her zaman eksik); baş ve son boşluk kırpılır, boş kodlar atılır (satır 131–132; Bölüm 1.5). |
Permütasyon sayısı · B |
tamsayı · Seçenekler | 999 | 99–9999 | Mantel, kısmi Mantel ve korelogram (142, 321, 331, 344–346, 385). |
Korelogram uzaklık sınıfı sayısı · sinif_sayisi |
tamsayı · Çıktı | 0 | 0–30 | 0 ise Sturges kuralı (381, 385). |
Mantel korelasyon katsayısı · mantel_yontem |
seçim · Model | pearson |
pearson, spearman, kendall |
Bütün Mantel testleri ve korelogram (317–321, 331, 385). |
Korelogram çoklu test düzeltmesi · korelog_duzeltme |
seçim · Seçenekler | holm |
holm, BH, bonferroni, sidak, none |
mult (382–385, 388–396). |
Korelogramı en büyük uzaklığın yarısında kes · korelog_kesme |
onay · Seçenekler | açık | açık, kapalı | cutoff (385). |
Örnek ayar (ornek_param, satır 9): on lokus, populasyon = pop, x = boylam, y = enlem, koordinat = enlem_boylam (varsayılan oklid yerine), duzey = populasyon, genetik_uzaklik = fst_rousset.
Genotip hücrelerinin biçimi Bölüm 63.2'deki ile aynıdır (a1/a2 ya da 0/1/2). Genotipleri bütün genetik şablonlarının ortak ayrıştırıcısı okur (satır 131–132; Bölüm 1.5): boş hücre, NA, 0, 00, 000, ?, -, . ve -9 eksik sayılır; iki alel de eksik kodu olmalıdır (0/0). Alellerinden yalnız biri eksik kodu olan genotip (0/152) çalıştırmayı durdurur. Lokuslar okunduktan sonra eksik sayılan genotiplerin dökümü yazılır (171). Koordinat ve çevre sütunları değerleriyle okunur (142, 146; Bölüm 1.5): sütun Veri sekmesinde hangi türde olursa olsun hücrelerdeki sayılar kullanılır; sayıya çevrilemeyen bir değer varsa çalıştırma, sütun adını veren iletiyle durur. Düzey ile genetik uzaklık birbirine uymalıdır: popülasyon düzeyinde ilk üç, birey düzeyinde son iki seçenek geçerlidir.
Şablonun kendi denetimleri.
| Koşul | İleti | Satır |
|---|---|---|
| Veri açık değil | "Önce Veri sekmesinde bir veri açın." | 135 |
| Düzey ile uzaklık uyumsuz | "Popülasyon düzeyinde genetik uzaklık FST/(1 − FST), Edwards ya da Nei olmalı." / "Birey düzeyinde … Öklid ya da paylaşılan alel uzaklığı olmalı." | 143–146 |
| Popülasyon düzeyinde popülasyon sütunu boş | "Popülasyon düzeyinde popülasyon sütunu seçilmeli." | 147 |
| Koordinat ya da popülasyon lokuslar arasında | "Koordinat ve popülasyon sütunları lokus olarak da seçilemez." | 148 |
| Koordinat ya da çevre sütununda sayıya çevrilemeyen değer | Sütun adını ve örnek değerleri veren ileti | 142, 146; Bölüm 1.5 |
| Koordinatı tam 3'ten az birey | "Koordinatı tam en az 3 birey gerekli." | 157 |
| Boylam/enlem aralık dışında | "Boylam −180…180, enlem −90…90 aralığında olmalı (x = boylam, y = enlem)." | 158–159 |
| Lokusta hiç genotip yok | "… lokusunda hiç genotip yok (bütün değerler eksik)." | ortak ayrıştırıcı |
| Sayısal lokusta 0/1/2 dışında değer | "… sayısal genotip yalnız 0/1/2 (B alelinin sayısı) olabilir …" | ortak ayrıştırıcı |
| Ayırıcı boş | "Alel ayırıcısı boş olamaz." | ortak ayrıştırıcı |
| Genotipte ayırıcı yok (haploit) | "… ayırıcı ('/') içermeyen genotip var …" | ortak ayrıştırıcı |
| Genotipte ikiden çok alel | "… ikiden çok alelli genotip var …; yalnız diploit veri desteklenir." | ortak ayrıştırıcı |
| Genotipin alellerinden yalnız biri eksik kodu | "… genotipte alellerden yalnız biri eksik kodu …" | ortak ayrıştırıcı |
| Çok biçimli lokus yok | "Çok biçimli lokus yok; genetik uzaklık hesaplanamaz." | 173 |
| 3'ten az popülasyon | "Popülasyon düzeyinde en az 3 popülasyon gerekli …" | 190 |
| F_{ST}'de tek bireyli popülasyon | "FST için her popülasyonda en az 2 birey gerekli (… tek bireyli)." | 198 |
| İkili F_{ST} tanımsız | "İkili FST kestirilemedi (bir popülasyon çiftinde ortak genotipli lokus yok)." | 204 |
| Edwards/Nei: ortak lokus yok ya da ortak alel yok | "Bazı popülasyon çiftlerinin ortak genotipli lokusu yok." / "Genetik uzaklık sonsuz …" | 231, 235 |
| Birey düzeyinde 2000'den çok birey | "Birey düzeyinde en çok 2000 birey (bulunan …)." | 242 |
| Paylaşılan alel uzaklığı: iki bireyin ikisinde de genotiplenmiş hiç lokus yok | "Bazı birey çiftlerinin ortak genotipli lokusu yok." | 270 |
| Bütün koordinatlar aynı | "Coğrafi uzaklıkların hepsi sıfır …" | 278 |
| Genetik uzaklıklar sabit | "Genetik uzaklıkların hepsi aynı; Mantel testi yapılamaz." | 279 |
Koordinatı, popülasyonu ya da çevre değeri eksik bireyler atılır ve sayıları not olarak yazılır (150–155). Kalan bireylerde tek biçimli olan lokuslar dışlanır ve adları yazılır (168, 172). Birey düzeyinde tahmini süre on dakikayı aşıyorsa çalıştırmanın başında bir süre uyarısı yazılır (282–311); uyarı sonucu değiştirmez.
92.3 Örnek veri
Dosya: _ornek/abies_cilicica.csv. Lübnan'daki 15 Toros göknarı (Abies cilicica) popülasyonundan 351 ağacın 10 mikrosatellit lokusundaki genotipleri (Awad ve ark., 2014; açık veri). Her ağacın satırında popülasyonunun boylam ve enlemi yazılıdır.
| Değişken | Rol | Tür (veri sekmesi) | Özet |
|---|---|---|---|
birey |
kullanılmaz | metin | KCHB_01, … |
pop |
Popülasyon | kategorik | 15 popülasyon; 11–30 ağaç (QARS 11, HKYT ve HNKT 12, …, beş popülasyonda 30). |
NFF3 … SFb5 |
Lokus | kategorik | 105/105 biçiminde; lokus başına 3–27 alel. |
boylam, enlem |
x, y | coğrafi | 35,99–36,28° D; 34,31–34,50° K. |
Eksik genotipler: SFb5 55 ağaçta, SFb4 12, SF50 3, SF1 ve SF78 birer ağaçta; öteki beş lokus eksiksizdir. Hiçbir popülasyonda tamamen eksik lokus yoktur. Popülasyonlar arası büyük çember uzaklıkları 0,37–33,48 km arasındadır (ortalama 12,71 km); 15 popülasyon 15\times14/2=105 çift oluşturur.
Arayüzdeki düzey sırası (ilk görülme) KCHB, …'dir; şablon popülasyonları ad sırasına dizer (BTJF, CHIR, EHDN, …) ve uzaklık matrisini bu sırada yazar. Hiçbir sonuç sıraya bağlı değildir.
Bu bölümde kullanılan çalıştırmalar: (1) örnek ayar; (2) genetik_uzaklik = edwards, nei; (3) mantel_yontem = spearman, kendall; (4) boyut = bir; (5) korelog_kesme kapalı; (6) korelog_duzeltme = BH, none; (7) sinif_sayisi = 6; (8) popülasyon başına bir değer taşıyan kurgusal bir çevre değişkeni eklenmiş kopya (cevre1; gerçek ölçüm değildir, yalnız kısmi Mantel çıktısını göstermek içindir); (9) duzey = birey, Öklid ve paylaşılan alel uzaklığı, B=199; (10) ad sırasındaki ilk beş popülasyon; (11) ilk üç popülasyon; (12) popülasyonda tamamen eksik lokus içeren ikinci bir veri (adegenet paketindeki nancycats; 17 kedi kolonisi, düzlem koordinatları).
92.4 Yöntem: formüller ve hesap adımları
Hesap sırası: (1) eksik satırları at, genotipleri alel indekslerine çevir, tek biçimli lokusları dışla; (2) coğrafi uzaklık matrisini kur; (3) seçilen genetik uzaklık matrisini kur; (4) Mantel testi, çevre verilmişse üç Mantel testi daha; (5) genetik uzaklığın \ln d ya da d üzerine regresyonu ve (yalnız F_{ST}'de) komşuluk büyüklüğü; (6) Mantel korelogramı; (7) dağılım grafiği ve korelogram.
92.4.1 Coğrafi uzaklık
- \varphi: enlem, \lambda: boylam (radyan); R: Dünya'nın ortalama yarıçapı.
- Koordinat türü "Düzlem" ise formül yerine d_{kl}=\sqrt{(x_k-x_l)^2+(y_k-y_l)^2} kullanılır; birim koordinatın birimidir.
- Popülasyon düzeyinde popülasyonun koordinatı, bireylerinin koordinatlarının aritmetik ortalamasıdır (satır 192). Bireylerin koordinatları farklıysa bu not olarak yazılır.
Koordinat türü varsayılanda "Düzlem"dir
Boylam ve enlem derece olarak verilip koordinat türü varsayılanda bırakılırsa uzaklıklar "derece" cinsinden Öklid uzaklığı olur. Bir boylam derecesi 34° enleminde bir enlem derecesinin yaklaşık %83'ü kadardır; uzaklıklar yöne göre farklı ölçeklenir. Örnek veride doğru ayarla Mantel r=0{,}5747 ve eğim 0{,}022806; düzlem ayarıyla r=0{,}5700 ve eğim 0{,}022506 bulunur. Küçük bir alanda fark azdır; geniş alanlarda ve yüksek enlemlerde büyür. Derece cinsinden koordinatta "Boylam/enlem" seçilir.
92.4.2 Popülasyonlar arası genetik uzaklık
Rousset uzaklığı. Her popülasyon çifti için Weir ve Cockerham'ın (1984) \theta kestirimi yalnız o iki popülasyonun bireylerinden hesaplanır. Bir lokusun bir aleli için:
- r: popülasyon sayısı (burada 2); \bar n: popülasyon başına o lokusta okunmuş ortalama birey sayısı; n_c=(r\bar n-\sum n_i^2/(r\bar n))/(r-1).
- \bar p: alelin birey sayısıyla ağırlıklı ortalama frekansı; s^2=\sum n_i(p_i-\bar p)^2/((r-1)\bar n): frekansın popülasyonlar arası varyansı; \bar h: o alel için heterozigot bireylerin ortalama oranı.
- a, b, c: popülasyonlar arası, popülasyon içinde bireyler arası ve birey içi varyans bileşenleri.
- Toplamlar bütün lokusların bütün alelleri üzerindendir (toplamların oranı; lokus bazındaki oranların ortalaması değil).
Neden F_{ST} değil de F_{ST}/(1-F_{ST})?
Uzaklıkla yalıtım modelinde iki popülasyonun gen kimliği olasılıkları uzaklıkla değişir; F_{ST}'nin kendisi üstten 1 ile sınırlıdır ve uzaklıkla doğrusal artmaz. Rousset (1997), F_{ST}/(1-F_{ST}) oranının iki boyutta uzaklığın logaritmasıyla, tek boyutta uzaklığın kendisiyle yaklaşık doğrusal arttığını ve eğimin yalnız D\sigma^2 çarpımına bağlı olduğunu göstermiştir. Bu dönüşüm, eğimi demografik bir büyüklüğe bağlayan tek seçenektir; şablon komşuluk büyüklüğünü yalnız bu uzaklık seçiliyken yazar.
Koddaki tercih
F_{ST} hierfstat::pairwise.WCfst(dat, diploid = TRUE) ile hesaplanır (satır 202). Eksik genotipler lokus bazında dışlanır: her lokusun birey sayıları o lokusta okunmuş bireylerdendir. Eksi F_{ST} kestirimleri sıfıra çekilmez; oran da eksi kalır. Bir çiftte hiçbir lokus ortak okunmamışsa çalıştırma iletiyle durur (204). Genotipler pakete altı basamaklı sayı kodlarıyla verilir; bu yüzden lokus başına en çok 899 alel kabul edilir (201).
Edwards açısal uzaklığı (1971) ve Nei standart uzaklığı (1972).
- p_{kmu}: k popülasyonunda m lokusunun u alelinin frekansı; L: lokus sayısı.
- D_E: 0 (aynı frekanslar) ile 1 (hiç ortak alel yok) arasındadır. D_N: 0 ile sonsuz arasındadır; iki popülasyonun ortak aleli yoksa tanımsızdır ve şablon durur (235).
Koddaki tercih
İki uzaklık şablonda doğrudan hesaplanır (satır 213–236); tanımlar adegenet::dist.genpop'un 2 ve 1 numaralı yöntemleriyle aynıdır. Fark, bir popülasyonda tamamen eksik lokusun işlenişindedir. Varsayılanda (atla) o lokus yalnız o popülasyonun girdiği çiftlerde hesaptan çıkar ve L o çift için bir azalır. sifir_frekans seçeneğinde lokus çıkarılmaz, o popülasyondaki bütün alel frekansları sıfır sayılır; bu, uzaklığı yapay olarak büyütür ve yalnız adegenet sonuçlarını yinelemek içindir. Kedi verisinde (bir kolonide bir lokus tamamen eksik) Edwards uzaklığıyla Mantel r varsayılanda -0{,}0093, sifir_frekans ile -0{,}0701'dir. Uygulanan yol her çalıştırmada not olarak yazılır (229–230).
92.4.3 Bireyler arası genetik uzaklık
Alel sayılarında Öklid uzaklığı. Her birey, her lokusun her aleli için o alelin kopya sayısını (0, 1, 2) taşıyan bir vektörle gösterilir; uzaklık bu vektörler arasındaki Öklid uzaklığıdır:
- c_{imu}: i. bireyde m lokusunun u alelinin kopya sayısı.
- Eksik genotipte bireyin o lokustaki bütün sayıları, alelin bütün bireyler üzerindeki ortalama sayısıyla doldurulur (satır 249–253).
Paylaşılan alel uzaklığı. Bowcock ve ark.'nın (1994) paylaşılan alel oranı P_s, iki bireyin ortak alel kopyalarını sayar; uzaklık 1-P_s'dir:
- a_{im}, b_{im}: i. bireyin m lokusundaki iki aleli; [\cdot]: koşul doğruysa 1, değilse 0.
- k_{ijm}: iki genotipin o lokustaki ortak alel kopyası sayısı (0, 1 ya da 2); alel sayım vektörlerinin alel başına en küçüklerinin toplamına eşittir.
- L_{ij}: iki bireyde de genotiplenmiş lokuslar; |L_{ij}|: bu lokusların sayısı.
105/105 ile 105/109 genotiplerinin ortak kopyası birdir (k=1): o lokustaki paylaşım 1/2=0{,}50'dir. 105/109 ile 105/109 için k=2 (paylaşım 1), 105/105 ile 109/109 için k=0'dır.
Koddaki tercih
Hesap satır 257–270'tedir; ortak kopya sayısı iki eşlemenin büyüğü olarak alınır (264). Genotiplerinden biri eksik olan çift yalnız o lokusta atlanır: pay ve payda o lokustan katkı almaz (265–267); eksik genotip içeren veride (örnek veri dahil) uzaklık hesaplanır. Çalıştırma yalnız iki bireyin ikisinde de genotiplenmiş hiçbir lokus yoksa iletiyle durur (270). Tanım adegenet::propShared ile aynıdır; örnek verinin eksiksiz 60 ağacında bu tanımla ortalama uzaklık 0{,}5459'dur. Çıktıda uzaklığın adı "Paylaşılan alel uzaklığı (1 − Ps; Bowcock ve ark. 1994)" olarak geçer (272).
Birey düzeyinde aynı koordinatı taşıyan bireylerin coğrafi uzaklığı sıfırdır; bu çiftler Mantel testine ve korelograma girer, \ln d tanımsız olduğundan regresyondan çıkarılır ve sayıları not olarak yazılır (369).
92.4.4 Mantel testi
İki uzaklık matrisinin karşılıklı öğeleri arasındaki korelasyon hesaplanır ve anlamlılığı birimlerin karıştırılmasıyla sınanır (Mantel, 1967):
- G_{kl}: genetik uzaklık; d_{kl}: coğrafi uzaklık; korelasyon n(n-1)/2 çift üzerindendir.
- r^{*}_t: genetik uzaklık matrisinin satır ve sütunları aynı rastgele sırayla yeniden dizildikten sonra hesaplanan korelasyon.
- Test tek yönlüdür: yalnız artı ilişki uzaklıkla yalıtım sayılır. Eksi r için p değeri 1'e yakındır.
Neden olağan korelasyon testi kullanılamaz?
Çiftler bağımsız değildir: A–B ve A–C uzaklıkları A popülasyonunu paylaşır. 15 popülasyonun 105 uzaklığı 105 bağımsız gözlem değildir; korelasyon katsayısının t dağılımına dayalı p değeri aşırı küçük çıkar. Mantel testi birimleri (popülasyonları) karıştırır: bir popülasyonun bütün uzaklıkları birlikte yer değiştirir ve matrisin iç bağımlılığı korunur. Aynı nedenle regresyon tablosundaki standart hatalar yalnız betimseldir.
Koddaki tercih
Test vegan::mantel(Dgen, Dgeo, method, permutations = B) ile yapılır (satır 321). "Mantel" satırında coğrafi uzaklık matrise ham hâliyle (dönüştürülmeden) girer; regresyondaki logaritma bu satıra uygulanmaz. Pearson katsayısıyla bu satırın r'si bu yüzden regresyonun \sqrt{R^2}'sine eşit değildir (örnek veride 0{,}5747 ve \sqrt{0{,}3006}=0{,}5483); şeklin alt başlığındaki r de, yatay ekseni \ln d olan grafiğin değil, ham uzaklığın korelasyonudur ve alt başlık bunu belirtir ("dönüştürülmemiş uzaklıkla"; 398–400).
İki boyutlu seçenekte (varsayılan), popülasyon düzeyinde ve coğrafi uzaklığı sıfır olan çift yokken tabloya ikinci bir satır eklenir: "Mantel, ln(uzaklık)" (vegan::mantel(Dgen, log(Dgeo), …), satır 324–334). Dayanağı Rousset'nin (1997) iki boyutlu modelidir: ilişki \ln d ile doğrusaldır, regresyon ve grafik de bu eksendedir. Pearson katsayısında bu satırın r'sinin karesi regresyonun R^2'sine eşittir (örnek veride r=0{,}5483, 0{,}5483^2=0{,}3006; p=0{,}001). Spearman ve Kendall katsayıları sıraya dayandığından logaritmadan etkilenmez; iki satırın r'si aynıdır. İkinci test birinci testle aynı permütasyon düzenleriyle yapılır: rastgele sayı üreteci birinci testin başındaki duruma alınır, sonra birinci testin bıraktığı duruma döndürülür (320, 329–332); satırın varlığı öteki satırların ve korelogramın p değerlerini değiştirmez. Satır varken tablo adı iki ekseni de söyler ("coğrafi uzaklık dönüştürülmeden, 'ln(uzaklık)' satırında logaritmasıyla"; 350–351). Birey düzeyinde aynı noktadaki bireylerin uzaklığı sıfır olabildiğinden logaritma tanımsızdır; satır verilmez ve bu bir notla bildirilir. Popülasyon düzeyinde sıfır uzaklıklı bir çift varsa satır yine verilmez ve not yazılır (335–338). Tek boyutlu seçenekte model uzaklığın kendisiyle doğrusal olduğundan satır da not da yoktur.
Birim sayısı küçükken paket rastgele karıştırma yerine bütün düzenlemeleri sayar (tam sayım): beş popülasyonda 5!-1=119 düzen vardır, B=999 istenmiş olsa da 119 düzen kullanılır ve p en az 1/120'dir. Tablodaki permutasyon sütunu gerçekleşen sayıyı verir (119; satır 323) ve tam sayım bir notla bildirilir (340–342); özet satırı istenen sayıyı yazar.
92.4.5 Kısmi Mantel testi
Çevre değişkenleri verildiğinde değişkenlerin popülasyon ortalamaları standartlaştırılır ve çevre uzaklığı E_{kl} bunların Öklid uzaklığı olarak kurulur (satır 238). Dört test yapılır: genetik ~ coğrafi, genetik ~ çevre ve iki kısmi test (Smouse ve ark., 1986).
- r_{GD}, r_{GE}, r_{DE}: genetik–coğrafi, genetik–çevre ve coğrafi–çevre uzaklık vektörleri arasındaki korelasyonlar.
- r_{GD\cdot E}: çevre uzaklığı sabit tutulduğunda genetik ile coğrafi uzaklığın ilişkisi. "genetik ~ çevre | coğrafi" testi için D ile E yer değiştirir.
- p değeri: genetik matrisin karıştırılmasıyla, kısmi korelasyonun üst kuyruğundan (
vegan::mantel.partial, satır 345–346).
92.4.6 Regresyon ve komşuluk büyüklüğü
- a, b: en küçük karelerle kestirilen kesişim ve eğim (
stats::lm, satır 364); coğrafi uzaklığı sıfır olan çiftler dışarıda bırakılır. - 1/b: iki boyutta komşuluk büyüklüğü 4\pi D\sigma^2 (boyutsuz bir sayı: bir bireyin çiftleşme çevresindeki etkin birey sayısı mertebesinde); tek boyutta 4D\sigma^2 (uzunluk birimli).
- Eğim artı değilse komşuluk büyüklüğü yazılmaz; yerine not düşülür (378).
Komşuluk büyüklüğü yalnız F_{ST}/(1-F_{ST}) seçiliyken yazılır (372). İki boyutta eğim \ln d'nin katsayısı olduğundan uzaklığın birimi (km, m) eğimi değiştirmez; yalnız kesişim değişir. Çıktıdaki satır bunu belirtir (373–377): iki boyutlu seçenekte 1/b'nin yanında "(birimsiz; uzaklık biriminden bağımsız)", tek boyutlu seçenekte koordinat türüne göre "(km cinsinden)" ya da "(koordinat birimi cinsinden)" yazar.
92.4.7 Mantel korelogramı
Coğrafi uzaklıklar eşit genişlikte sınıflara ayrılır; her sınıf için, "bu çift bu sınıfta mı" sorusuna 1/0 ile cevap veren bir gösterge matrisi kurulur ve genetik uzaklıkla Mantel korelasyonu hesaplanır (Oden ve Sokal, 1986):
- Sınıf sayısı verilmezse Sturges kuralı: \lceil1+\log_2(\text{çift sayısı})\rceil. Sınıf genişliği (d_{\max}-d_{\min})/\text{sınıf sayısı}'dır; alt sınır sınıfa girmez, üst sınır girer (en küçük uzaklık birinci sınıftadır).
- İşaret çevrilir: r_M^{(c)}>0, o sınıftaki çiftlerin genetik olarak ortalamadan daha benzer olduğunu gösterir.
- p değeri tek yönlüdür ve yönü r'nin işaretidir: artı r için "benzerlik", eksi r için "farklılık" yönünde sınanır.
Koddaki tercih
vegan::mantel.correlog(Dgen, D.geo = Dgeo, n.class, nperm = B, r.type, mult, cutoff) (satır 385). Üç noktası çıktıyı okurken önemlidir. (1) "Yarıda kes" açıkken sınıfların ilk yarısı her zaman sınanır; ikinci yarıdaki bir sınıf yalnız bütün birimlerin o sınıfta en az bir çifti varsa sınanır, öteki sınıflar tabloya girmez. (2) Çoklu test düzeltmesi aşamalıdır: k. sınıfın düzeltilmiş p değeri, ilk k sınıfın p değerlerine düzeltme uygulandığında k. değerdir; birinci sınıfın p değeri düzeltilmez, sonraki sınıflar giderek daha çok test için düzeltilir; tablo adı düzeltmenin aşamalı olduğunu belirtir (396). Yalnız bir sınıf sınanmışsa düzeltilecek başka test yoktur ve düzeltilmiş p değeri ham p değerine eşittir (393). (3) n_cift sütunu sınıftaki çift sayısıdır: paket çiftleri iki yönde sayar, şablon bu sayıyı ikiye böler (390).
92.5 Kod adım adım
| Satırlar | Ne yapar | Neden / dikkat |
|---|---|---|
| 1–126 | Üstbilgi: kimlik, açıklama, örnek veri ve ayar, on altı parametre. | Form buradan kurulur (Bölüm 1.2). |
| 127–132 | Dil yardımcısı; genotip ayrıştırıcısının ortak yardımcıya bağlanması. | Ayrıştırıcı ve eksik kodları ortaktır (satır 124–125; Bölüm 1.5). |
| 135–160 | Parametrelerin okunması, düzey–uzaklık uyum denetimi, koordinat ve çevre sütunlarının değerleriyle okunması, eksik satırların atılması, boylam/enlem aralık denetimi, popülasyon etkeni. | Sayıya çevrilemeyen değer çalıştırmayı durdurur (149, 153; Bölüm 1.5). Popülasyon düzeyleri ad sırasına dizilir (160). |
| 162–173 | Her lokus için alel listesi ve alel indeksleri; eksik sayılan genotiplerin dökümü (171); tek biçimli lokusların dışlanması. | Tek biçimlilik, atılan satırlardan sonra kalan bireylerde değerlendirilir. |
| 175–186 | cog(): haversine ya da Öklid uzaklık matrisi. |
|
| 188–239 | Popülasyon düzeyi: koordinat ortalamaları; F_{ST} (197–209) ya da frekans tabanlı uzaklıklar (210–237); çevre uzaklığı (238). | Edwards/Nei'de eksik lokus ağırlık matrisiyle işlenir (223–225). |
| 240–276 | Birey düzeyi: Öklid (245–256) ya da paylaşılan alel (257–273); çevre uzaklığı (274). | En çok 2000 birey. Paylaşılan alelde eksik genotipli çift yalnız o lokusta atlanır (265–267). |
| 277–311 | Sabit uzaklık denetimleri; birey düzeyi için süre tahmini ve uyarısı. | Uyarı yalnız bilgi verir. |
| 313–323 | Özet satırı; Mantel testi (dönüştürülmemiş coğrafi uzaklıkla). | Rastgele sayı üretecinin testten önceki durumu saklanır (320). permutasyon sütunu gerçekleşen sayıdır (323). |
| 324–339 | İki boyutlu seçenekte ve popülasyon düzeyinde "Mantel, ln(uzaklık)" satırı; verilemediğinde not. | Aynı permütasyon düzenleri kullanılır; üreteç sonra birinci testin bıraktığı duruma döndürülür (329–332), sonraki testler etkilenmez. |
| 340–358 | Tam sayım notu; kısmi Mantel testleri; genetik uzaklık matrisi tablosu (en çok 150 birim) ve test tablosu. | Tablo adı hangi satırın hangi uzaklıkla hesaplandığını söyler (357–358). |
| 360–379 | Regresyon, regresyon tablosu, komşuluk büyüklüğü satırı. | Standart hatalar betimseldir; tablo başlığında yazar. |
| 380–397 | Mantel korelogramı ve tablosu. | Hata olursa korelogram atlanır ve not yazılır (385, 397). |
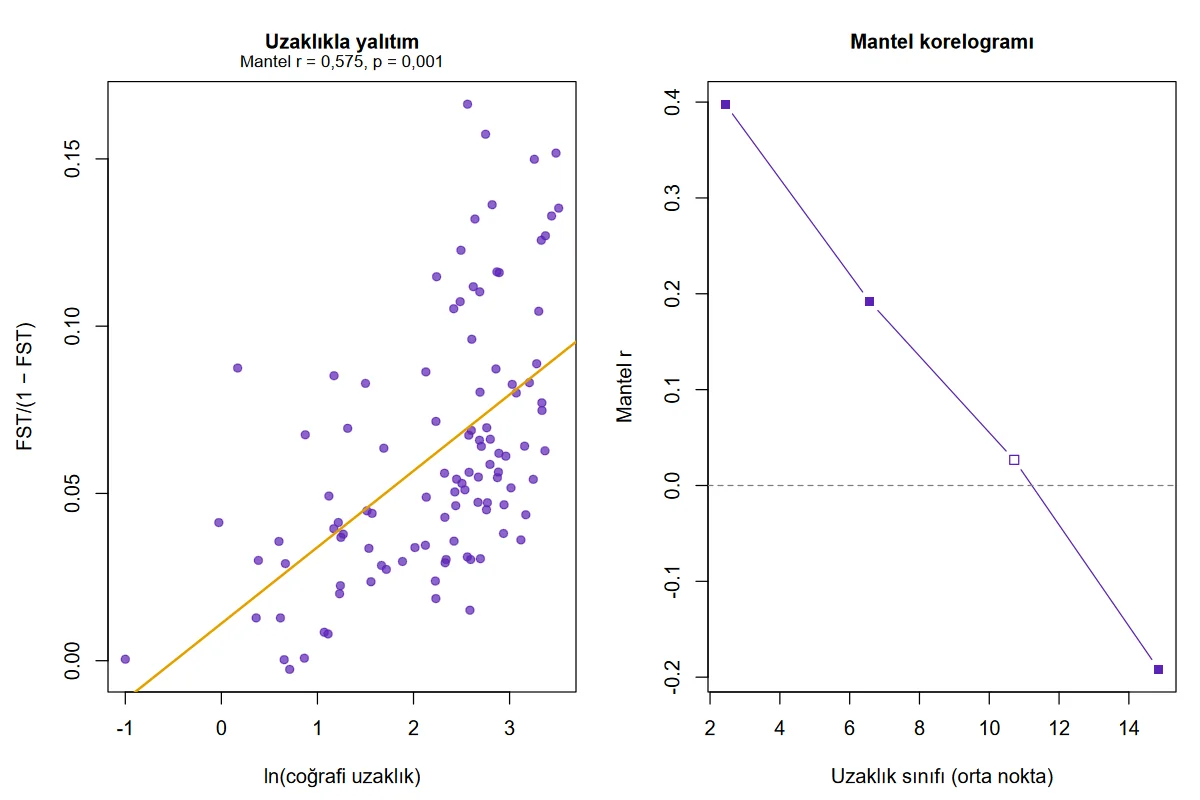
| 399–420 | Dağılım grafiği (regresyon doğrusuyla) ve korelogram. | Dolu kare: düzeltilmiş p<0{,}05. |
92.6 Elle hesap: örnek veride bağımsız yeniden hesap
Ara değerler dogrulama/uzaklikla_yalitim/elle_hesap.py ile, vegan, hierfstat ve adegenet kullanılmadan hesaplanmıştır: F_{ST} Weir ve Cockerham'ın a, b, c formüllerinden, coğrafi uzaklık haversine formülünden, Mantel ve korelogram doğrudan korelasyonlardan. R tarafında (r_dogrulama.R) F_{ST} varyans çözümlemesi biçimindeki açık formülle, coğrafi uzaklık geosphere::distHaversine ile, Mantel r ade4::mantel.randtest ile, Edwards ve Nei uzaklıkları adegenet::dist.genpop ile bulunmuştur. Permütasyon p değerleri için şablonun çekilişleri aynı tohumla (2026) ve aynı sırayla yeniden üretilmiş, istatistikler iki ayrı kodla hesaplanmıştır.
Adım 1 — Coğrafi uzaklık. BTJF (36,2774° D; 34,4955° K) ile CHIR (36,2422° D; 34,4965° K) arasındaki büyük çember uzaklığı 3{,}2246 km'dir. En yakın çift 0{,}368 km, en uzak çift 33{,}479 km uzaktadır.
Adım 2 — Bir çiftin F_{ST}'si. BTJF (30 ağaç) ve CHIR (28 ağaç) için on lokusun bileşenleri:
| Lokus | \sum a | \sum b | \sum c | Lokus \hat\theta |
|---|---|---|---|---|
| NFF3 | −0,0024 | −0,0428 | 0,3448 | −0,0081 |
| NFF7 | 0,0304 | −0,0228 | 0,8621 | 0,0349 |
| NFH15 | 0,0096 | −0,0162 | 0,7759 | 0,0124 |
| NFH3 | −0,0022 | 0,0468 | 0,8276 | −0,0026 |
| SF1 | −0,0038 | −0,0463 | 0,5517 | −0,0076 |
| SF333 | 0,0259 | 0,0308 | 0,4655 | 0,0496 |
| SF50 | 0,1156 | 0,0181 | 0,3621 | 0,2332 |
| SF78 | 0,0031 | 0,0639 | 0,7241 | 0,0039 |
| SFb4 | 0,0148 | 0,0468 | 0,7241 | 0,0188 |
| SFb5 | 0,0530 | 0,0648 | 0,4000 | 0,1024 |
| Toplam | 0,2439 | 0,1431 | 6,0379 |
Çok lokuslu değer lokus değerlerinin ortalaması (0{,}0437) değildir; çeşitliliği yüksek lokuslar toplamda daha çok ağırlık taşır.
Adım 3 — 105 çift. \hat F_{ST} değerleri -0{,}0026 (HNKF–HNKT) ile 0{,}1426 (KMHR–QARS) arasındadır; ortalama 0{,}0571. Tek eksi değer, aralarında 2 km bulunan iki popülasyona aittir ve sıfırdan ayırt edilemeyen bir farklılaşmayı gösterir. Rousset uzaklıklarının ortalaması 0{,}0619'dur.
Adım 4 — Mantel testi. 105 çiftin Rousset uzaklığı ile kilometre cinsinden uzaklığı arasındaki korelasyon:
Aynı 999 karıştırmada sıfır değerlerinin ortalaması 0{,}005, standart sapması 0{,}133, en büyüğü 0{,}444'tür; hiçbiri gözlenene ulaşmaz: p=(0+1)/(999+1)=0{,}001. Spearman katsayısıyla r_M=0{,}5935, Kendall ile 0{,}4260'tır.
Adım 5 — Regresyon ve komşuluk büyüklüğü. \ln d üzerine:
\ln d ile korelasyon \sqrt{0{,}3006}=0{,}5483'tür; bu, Mantel tablosunun "Mantel, ln(uzaklık)" satırındaki r'dir (p=0{,}001). "Mantel" satırının 0{,}5747'si ham uzaklıkladır (92.4.4). Tek boyutlu seçenekte (uzaklığın kendisi) eğim 0{,}0026208, R^2=0{,}3303=0{,}5747^2 ve 1/\hat b=381{,}6 km'dir.
Adım 6 — Korelogram. 105 çift için Sturges kuralı \lceil1+\log_2105\rceil=8 sınıf verir; sınıf genişliği (33{,}479-0{,}368)/8=4{,}139 km'dir.
| Sınıf | Aralık (km) | Çift | r_M^{(c)} | p | Aşamalı Holm |
|---|---|---|---|---|---|
| 1 | 0,37–4,51 | 24 | 0,3978 | 0,001 | 0,001 |
| 2 | 4,51–8,65 | 12 | 0,1918 | 0,042 | 0,042 |
| 3 | 8,65–12,78 | 17 | 0,0267 | 0,417 | 0,417 |
| 4 | 12,78–16,92 | 24 | −0,1919 | 0,010 | 0,030 |
| 5 | 16,92–21,06 | 11 | −0,0746 | ||
| 6 | 21,06–25,20 | 5 | 0,0030 | ||
| 7 | 25,20–29,34 | 9 | −0,2740 | ||
| 8 | 29,34–33,48 | 3 | −0,3508 |
Varsayılanda yalnız ilk dört sınıf sınanır ve tabloya girer. Aşamalı Holm: dördüncü sınıfta ilk dört p değeri (0{,}001; 0{,}042; 0{,}417; 0{,}010) sıralanır; 0{,}010 ikinci en küçüktür ve 3 ile çarpılır: 0{,}030. İkinci sınıfta yalnız iki p değeri vardır; 0{,}042 büyük olandır ve 1 ile çarpılır. Dört p değerine bir kerede uygulanan klasik Holm düzeltmesi 0{,}004; 0{,}084; 0{,}417; 0{,}030 verirdi: ikinci sınıf klasik düzeltmede anlamlılığını yitirir, aşamalı düzeltmede korur.
Adım 7 — Öteki popülasyon uzaklıkları. BTJF–CHIR için Edwards 0{,}2929, Nei 0{,}0945; KMHR–QARS için 0{,}4507 ve 0{,}2691. Mantel r: Edwards 0{,}4262 (p=0{,}001), Nei 0{,}6490 (p=0{,}001).
Adım 8 — Kısmi Mantel (kurgusal çevre değişkeni). r_{GD}=0{,}5747; r_{GE}=0{,}2561; r_{DE}=0{,}6416.
p değerleri: genetik ~ çevre 0{,}078; coğrafi | çevre 0{,}001; çevre | coğrafi 0{,}867. Çevre uzaklığı coğrafi uzaklıkla ilişkili olduğu için (0{,}64) genetik uzaklıkla da ilişkili görünür (0{,}26); coğrafya sabit tutulunca bu ilişki kaybolur.
Adım 9 — Az birim: bütün düzenlemeler (çalıştırma 10). Ad sırasındaki ilk beş popülasyonun 10 çiftinde r_M=0{,}6594'tür. 119 düzenin hiçbirinde korelasyon bu değere ulaşmaz: p=1/120=0{,}00833; tablonun permutasyon sütunu 119 yazar. Üç popülasyonda (çalıştırma 11) yalnız beş düzen vardır ve r_M=0{,}9988 için bile p=1/6=0{,}167'dir (permutasyon 5). Bu çalıştırmada korelogramın tek sınıfı sınanır ve düzeltilmiş p değeri ham p değerine eşittir (0{,}3333).
Adım 10 — Birey düzeyi (çalıştırma 9). 351 ağaç 61425 çift oluşturur; 4306 çift aynı popülasyondandır ve coğrafi uzaklığı sıfırdır. 109 alel sütunundaki Öklid uzaklığının ortalaması 5{,}116'dır. Sıfır uzaklıklı çiftler nedeniyle "Mantel, ln(uzaklık)" satırı verilmez ve bu bir notla bildirilir. Mantel r=0{,}1541; \ln d üzerine eğim 0{,}08857 (57119 çift). Paylaşılan alel uzaklığıyla Mantel r=0{,}1373 (p=0{,}005), eğim 0{,}011428 ve R^2=0{,}0102'dir.
92.6.1 Doğrulama: MerQuR+, Python ve R
MerQuR+ sütunu şablonun tablolarından tam hassasiyetle alınmıştır (çalıştırmalar 1–5 ve 7–10).
| Büyüklük | MerQuR+ | Python (bağımsız) | R (bağımsız) | En büyük fark | |
|---|---|---|---|---|---|
| F_{ST}/(1-F_{ST}) BTJF–CHIR | 0,03946135 | 0,03946135 | 0,03946135 | 2,8e−17 | ✓ |
| F_{ST}/(1-F_{ST}) HNKF–HNKT | −0,00259268 | −0,00259268 | −0,00259268 | 4,2e−17 | ✓ |
| F_{ST}/(1-F_{ST}) KMHR–QARS | 0,16633969 | 0,16633969 | 0,16633969 | 3,3e−16 | ✓ |
| Mantel r (Pearson) | 0,57474668 | 0,57474668 | 0,57474668 | 2,0e−15 | ✓ |
| Mantel p | 0,001 | 0,001 | 0,001 | 0 | ✓ |
| Mantel r, ln(uzaklık) | 0,5482918 | 0,5482918 | 0,5482918 | 1,6e−15 | ✓ |
| Regresyon, ln(uzaklık): kesişim | 0,01112671 | 0,01112671 | 0,01112671 | 2,0e−16 | ✓ |
| Regresyon, ln(uzaklık): eğim b | 0,02280624 | 0,02280624 | 0,02280624 | 1,0e−16 | ✓ |
| Regresyon, ln(uzaklık): SH(kesişim) | 0,00825549 | 0,00825549 | 0,00825549 | 1,1e−16 | ✓ |
| Regresyon, ln(uzaklık): SH(eğim) | 0,00342751 | 0,00342751 | 0,00342751 | 5,0e−17 | ✓ |
| Regresyon, ln(uzaklık): R^2 | 0,3006239 | 0,3006239 | 0,3006239 | 1,8e−15 | ✓ |
| 1/b (4\pi D\sigma^2) | 43,84765082 | 43,84765082 | 43,84765082 | 4,9e−15 | ✓ |
| Korelogram: 1. sınıf orta noktası (km) | 2,43742333 | 2,43742333 | 2,43742333 | 7,3e−16 | ✓ |
| Korelogram: 1. sınıf çift sayısı | 24 | 24 | 24 | 0 | ✓ |
| Korelogram: 2. sınıf çift sayısı | 12 | 12 | 12 | 0 | ✓ |
| Korelogram: 3. sınıf çift sayısı | 17 | 17 | 17 | 0 | ✓ |
| Korelogram: 4. sınıf çift sayısı | 24 | 24 | 24 | 0 | ✓ |
| Korelogram: 1. sınıf Mantel r | 0,39778713 | 0,39778713 | 0,39778713 | 1,0e−15 | ✓ |
| Korelogram: 2. sınıf Mantel r | 0,19178282 | 0,19178282 | 0,19178282 | 5,3e−16 | ✓ |
| Korelogram: 3. sınıf Mantel r | 0,02671614 | 0,02671614 | 0,02671614 | 8,0e−17 | ✓ |
| Korelogram: 4. sınıf Mantel r | −0,19186259 | −0,19186259 | −0,19186259 | 2,8e−17 | ✓ |
| Korelogram: 1. sınıf p | 0,001 | 0,001 | 0,001 | 0 | ✓ |
| Korelogram: 2. sınıf p | 0,042 | 0,042 | 0,042 | 0 | ✓ |
| Korelogram: 3. sınıf p | 0,417 | 0,417 | 0,417 | 0 | ✓ |
| Korelogram: 4. sınıf p | 0,01 | 0,01 | 0,01 | 0 | ✓ |
| Korelogram: 1. sınıf p (aşamalı Holm) | 0,001 | 0,001 | 0,001 | 0 | ✓ |
| Korelogram: 2. sınıf p (aşamalı Holm) | 0,042 | 0,042 | 0,042 | 0 | ✓ |
| Korelogram: 3. sınıf p (aşamalı Holm) | 0,417 | 0,417 | 0,417 | 0 | ✓ |
| Korelogram: 4. sınıf p (aşamalı Holm) | 0,03 | 0,03 | 0,03 | 0 | ✓ |
| Mantel r (Spearman) | 0,59348953 | 0,59348953 | 0,59348953 | 2,2e−16 | ✓ |
| Mantel r (Kendall) | 0,42600733 | 0,42600733 | 0,42600733 | 5,6e−17 | ✓ |
| Tek boyut (uzaklık): eğim | 0,00262079 | 0,00262079 | 0,00262079 | 6,1e−17 | ✓ |
| Tek boyut (uzaklık): R^2 | 0,33033375 | 0,33033375 | 0,33033375 | 1,6e−15 | ✓ |
| Altı sınıflı korelogram: 1. sınıf r | 0,45816359 | 0,45816359 | 0,45816359 | 2,8e−16 | ✓ |
| Altı sınıflı korelogram: 2. sınıf r | 0,12428468 | 0,12428468 | 0,12428468 | 2,8e−16 | ✓ |
| Altı sınıflı korelogram: 3. sınıf r | −0,21323346 | −0,21323346 | −0,21323346 | 2,8e−17 | ✓ |
| Edwards uzaklığı BTJF–CHIR | 0,29292821 | 0,29292821 | 0,29292821 | 1,7e−16 | ✓ |
| Edwards uzaklığı KMHR–QARS | 0,45065095 | 0,45065095 | 0,45065095 | 1,1e−16 | ✓ |
| Edwards: Mantel r | 0,42616166 | 0,42616166 | 0,42616166 | 1,0e−15 | ✓ |
| Edwards: regresyon eğimi | 0,02185828 | 0,02185828 | 0,02185828 | 9,0e−16 | ✓ |
| Nei uzaklığı BTJF–CHIR | 0,09447972 | 0,09447972 | 0,09447972 | 4,0e−16 | ✓ |
| Nei uzaklığı KMHR–QARS | 0,26907764 | 0,26907764 | 0,26907764 | 1,0e−15 | ✓ |
| Nei: Mantel r | 0,64900412 | 0,64900412 | 0,64900412 | 2,6e−15 | ✓ |
| Nei: regresyon eğimi | 0,03662422 | 0,03662422 | 0,03662422 | 6,9e−18 | ✓ |
| Çevreli: Mantel r genetik ~ çevre | 0,25612041 | 0,25612041 | 0,25612041 | 5,6e−17 | ✓ |
| Çevreli: kısmi r genetik ~ coğrafi | çevre | 0,55353577 | 0,55353577 | 0,55353577 | 0 |
| Çevreli: kısmi r genetik ~ çevre | coğrafi | −0,17945719 | −0,17945719 | −0,17945719 | 7,2e−15 |
| Çevreli: p genetik ~ çevre | 0,078 | 0,078 | 0,078 | 0 | ✓ |
| Çevreli: p kısmi (coğrafi | çevre) | 0,001 | 0,001 | 0,001 | 0 |
| Çevreli: p kısmi (çevre | coğrafi) | 0,867 | 0,867 | 0,867 | 0 |
| Beş popülasyon: Mantel r | 0,6594361 | 0,6594361 | 0,6594361 | 2,2e−16 | ✓ |
| Beş popülasyon: p (119 düzenlemenin tam sayımı) | 0,00833333 | 0,00833333 | 0,00833333 | 3,3e−17 | ✓ |
| Birey düzeyi (Öklid): Mantel r | 0,15405243 | 0,15405243 | 0,15405243 | 4,4e−16 | ✓ |
| Birey düzeyi (Öklid): regresyon eğimi | 0,08856653 | 0,08856653 | 0,08856653 | 1,7e−12 | ✓ |
Ölçütü karşılayan: 54/54. Python: Weir ve Cockerham (1984) eş. 2–4, haversine, Mantel ve korelogram açık formülle (numpy). R: F_{ST} varyans çözümlemesi biçiminde açık formülle, coğrafi uzaklık geosphere::distHaversine, Mantel r ade4::mantel.randtest, Edwards ve Nei adegenet::dist.genpop. p değerleri: aynı tohumla (2026) aynı sırada üretilen çekilişler üzerinde iki ayrı kodla sayım.
p değerlerindeki eşitlik aynı çekilişlerin kullanılmasına dayanır: çekilişler R'de şablonla aynı tohum ve aynı sırayla bir kez üretilmiş, korelasyonlar ve sayım Python ve R'de ayrı kodla yapılmıştır.
92.7 Çıktıyı okuma
Örnek ayarın konsol metni:
Genotip okuma: 10 lokusta 3510 genotipin 72 tanesi eksik sayıldı (boş hücre: 72; eksik kodu: 0; alellerinden yalnız biri eksik kodu: 0; başka neden: 0).
Eksik veri: FST, hierfstat::pairwise.WCfst ile eksik genotipler dışlanarak kestirildi (popülasyonda tamamen eksik lokus o çiftte bilgi taşımaz).
Uzaklıkla yalıtım (popülasyon düzeyi): 15 popülasyon, 105 çift, 10 lokus; genetik uzaklık: FST/(1 − FST); coğrafi uzaklık: büyük çember (km). İstenen permütasyon sayısı: 999.
Rousset (1997): eğim b = 0,022806; 4πDσ² ≈ 1/b = 43,85 (birimsiz; uzaklık biriminden bağımsız).
Tablolar (genetik uzaklık matrisi dışında):
Mantel testleri (Pearson; tek yanlı, H1: r > 0; coğrafi uzaklık dönüştürülmeden, 'ln(uzaklık)' satırında logaritmasıyla)
               test       r      p  permutasyon
             Mantel  0.5747  0.001          999
Mantel, ln(uzaklık)  0.5483  0.001          999

Regresyon: FST/(1 − FST) ~ ln(uzaklık) (çiftler bağımsız olmadığından SH yalnız betimseldir; anlamlılık için Mantel testi kullanılır)
      terim  kestirim        SH      R2  n_cift
    kesişim  0.011127  0.008255  0.3006     105
ln(uzaklık)  0.022806  0.003428     NaN     NaN

Mantel korelogramı (Pearson; uzaklık sınıfı göstergesine karşı; p Holm düzeltmeli, aşamalı: k. sınıf ilk k sınıfa göre düzeltilir)
 sinif  sinif_orta  n_cift  Mantel_r      p  p_Holm
     1      2.4374      24    0.3978  0.001   0.001
     2      6.5762      12    0.1918  0.042   0.042
     3     10.7151      17    0.0267  0.417   0.417
     4     14.8539      24   -0.1919  0.010   0.030
Çevre değişkeni verildiğinde (çalıştırma 8) test tablosu beş satırdır:
                                   test        r      p  permutasyon
                                 Mantel   0.5747  0.001          999
                    Mantel, ln(uzaklık)   0.5483  0.001          999
                Mantel: genetik ~ çevre   0.2561  0.078          999
Kısmi Mantel: genetik ~ coğrafi | çevre   0.5535  0.001          999
Kısmi Mantel: genetik ~ çevre | coğrafi  -0.1795  0.867          999
| Öğe | Ne yazar | Nasıl yorumlanır |
|---|---|---|
| "Genotip okuma" satırı | Okunan genotip sayısı ve eksik sayılanların nedenlerine göre dökümü | Sayılar beklenenle karşılaştırılır; eksik kuralı için Bölüm 1.5. |
| Özet satırı | Düzey, birim ve çift sayısı, kullanılan lokus sayısı, uzaklık tanımları, istenen permütasyon sayısı | Lokus sayısı tek biçimli lokuslar dışlandıktan sonraki sayıdır. |
| Genetik uzaklık matrisi | Simetrik matris (en çok 150 birim) | Birimler ad sırasındadır. Eksi değerler F_{ST}'nin eksi kestirimleridir. |
r |
Mantel korelasyonu | "Mantel" satırında ham (dönüştürülmemiş) coğrafi uzaklıkla, "Mantel, ln(uzaklık)" satırında logaritmasıyla hesaplanır; tablo adı bunu belirtir. Pearson katsayısında ikinci satırın r^2'si regresyonun R^2'sine eşittir. Büyüklüğü "açıklanan varyans" gibi okunmaz; matris korelasyonları olağan korelasyonlardan küçük olur. |
p |
Tek yönlü permütasyon p değeri | En küçük değer 1/(B+1); birim sayısı azsa 1/n! (92.4.4). |
| "Mantel, ln(uzaklık)" satırı | Genetik uzaklığın \ln d ile Mantel testi | Yalnız iki boyutlu seçenekte, popülasyon düzeyinde ve sıfır uzaklıklı çift yokken verilir; verilemediğinde not yazılır. Rousset modelinin ekseni budur; regresyon ve grafikle aynı eksendedir. |
permutasyon |
Gerçekleşen permütasyon sayısı | Olağan durumda istenen B'ye eşittir. Birim sayısı azsa bütün düzenler sayılır; sütun düzen sayısını verir (beş popülasyonda 119) ve tam sayım bir notla bildirilir. |
kestirim, SH, R2 |
Regresyon katsayıları, betimsel standart hataları, belirleme katsayısı | SH ve ona dayalı hiçbir test raporlanmaz. |
n_cift |
Regresyona giren çift sayısı | Coğrafi uzaklığı sıfır olan çiftler dışarıdadır. |
| "Rousset (1997)" satırı | Eğim ve tersi | İki boyutta 1/b komşuluk büyüklüğüdür ve birimsizdir; tek boyutta uzunluk birimindedir. Satırın sonundaki ayraç bunu yazar. |
sinif_orta |
Uzaklık sınıfının orta noktası | Coğrafi uzaklığın birimindedir. |
n_cift |
Sınıftaki çift sayısı | Örnek ayarda 24, 12, 17 ve 24 çift. |
Mantel_r |
Sınıf göstergesiyle Mantel korelasyonu (işareti çevrilmiş) | Artı: bu uzaklıktaki çiftler ortalamadan daha benzer; eksi: daha farklı. |
p, p_Holm |
Ham ve aşamalı düzeltilmiş p değerleri | İlk sınıfta ikisi aynıdır; yalnız bir sınıf sınanmışsa düzeltilmiş değer ham değere eşittir. Sütun adı seçilen düzeltmeye göre değişir (p_BH, …); düzeltme yoksa ikinci sütun yoktur. |
Şekil 92.1. Şablonun şekli (örnek ayar). Solda 105 popülasyon çiftinin Rousset uzaklığı \ln(km)'ye karşı ve regresyon doğrusu; alt başlıktaki r ham (dönüştürülmemiş) uzaklıkla hesaplanan Mantel korelasyonudur ve alt başlık bunu belirtir. Sağda Mantel korelogramı: dolu kareler aşamalı Holm düzeltmesiyle p<0{,}05 olan sınıflardır. 9 km'ye kadar olan çiftler ortalamadan daha benzer, 13–17 km arasındakiler daha farklıdır.
Rapor cümlesi (örnek ayar):
Lübnan'daki 15 Abies cilicica popülasyonunda (351 ağaç, 10 mikrosatellit lokusu) popülasyon çiftleri arasındaki genetik farklılaşma [F_{ST}/(1-F_{ST}); Weir ve Cockerham kestirimi] coğrafi uzaklıkla birlikte arttı (Mantel r = 0,575; 999 permütasyon, tek yönlü p = 0,001). Farklılaşmanın uzaklığın doğal logaritması üzerine regresyonunda eğim 0,0228 bulundu (R² = 0,30); eğimin tersi 43,9'dur (iki boyutlu yaşam alanı varsayımıyla komşuluk büyüklüğü). Mantel korelogramında 4,5 km'ye kadar olan çiftler ortalamadan daha benzerdi (r = 0,40; p = 0,001), 13–17 km arasındaki çiftler daha farklıydı (r = −0,19; aşamalı Holm düzeltmeli p = 0,030).
92.8 Sık hatalar ve tuzaklar
- Boylam/enlemi düzlem koordinatı olarak bırakmak. Koordinat türü varsayılanda düzlemdir; derece cinsinden koordinatta "Boylam/enlem" seçilir (92.4.1). Tersine, UTM gibi metre cinsinden koordinatta "Boylam/enlem" seçilirse aralık denetimi çalıştırmayı durdurur.
- x ile y'yi karıştırmak. Boylam x'e, enlem y'ye verilir. Türkiye'nin enlem ve boylam değerleri ikisi de 90'ın altında olduğundan yer değiştirme aralık denetimine takılmaz; uzaklıklar uyarı verilmeden yanlış hesaplanır. Korelogram tablosundaki sınıf orta noktaları (km) haritadaki uzaklık aralığıyla karşılaştırılarak denetlenir.
- Koordinat sütununda sayı olmayan değer bırakmak. Koordinat ve çevre sütunları değerleriyle okunur; sütunun Veri sekmesindeki türü sonucu değiştirmez (örnek veride koordinat sütunları hangi türde olursa olsun Mantel r=0{,}5747'dir). Hücrede sayıya çevrilemeyen bir değer (
36,28 D,yok) varsa çalıştırma, sütun adını ve örnek değerleri veren iletiyle durur (Bölüm 1.5); değer düzeltilir ya da hücre boş bırakılır. Koordinatı boş olan birey atılır ve sayısı not olarak yazılır. - Kümelenmiş yapıyı uzaklıkla yalıtım sanmak. İki ayrık küme (örneğin bir engelin iki yanı) varsa küme içi çiftler hem yakın hem benzer, kümeler arası çiftler hem uzak hem farklıdır; Mantel testi anlamlı çıkar, ama ilişki sürekli değildir (Meirmans, 2012). Dağılım grafiğinde iki ayrı bulut, korelogramda ilk sınıftan sonra keskin bir düşüş bu durumun işaretidir. Kümeler
populasyon_yapisiile aranır; küme içinde ayrıca uzaklıkla yalıtım sınanır. - Mantel r ile regresyonun R²'sini birbirine bağlamak. "Mantel" satırı ham uzaklıkla, regresyon iki boyutlu seçenekte \ln d ile hesaplanır; Pearson seçeneğinde bu satır için r^2\ne R^2'dir. Regresyonun R^2'siyle bağdaşan değer "Mantel, ln(uzaklık)" satırındadır (r^2=R^2); grafiğin alt başlığındaki r ise dönüştürülmemiş uzaklıkla hesaplanandır ve alt başlık bunu belirtir. Raporda hangi uzaklıkla hesaplandığı yazılır; tutarlılık isteniyorsa sıra tabanlı (Spearman) katsayı seçilir.
- Regresyonun standart hatasından güven aralığı ya da p değeri türetmek. Çiftler bağımsız değildir; tablo başlığı bunu belirtir. Eğimin belirsizliği için lokuslar üzerinden yeniden örnekleme gerekir; şablon bunu yapmaz.
- Komşuluk büyüklüğünü her uzaklıkta yorumlamak. 1/b=4\pi D\sigma^2 ilişkisi F_{ST}/(1-F_{ST}) için, dengeye ulaşmış bir popülasyonda ve \sigma'dan büyük, ama mutasyonun etkisinin ihmal edilebildiği kadar yakın uzaklıklarda geçerlidir (Rousset, 1997). Edwards, Nei ve birey düzeyi uzaklıklarında şablon bu satırı yazmaz; bireyler arası çözümlemede kuramın öngördüğü uzaklık ölçüsü başkadır (Rousset, 2000) ve şablonda yoktur. Yakın zamanda yayılmış ya da parçalanmış popülasyonlarda eğim demografik parametreleri yansıtmaz (Slatkin, 1993).
- Yarı eksik genotip bırakmak. Alellerinden yalnız biri eksik kodu olan genotip (
0/152) çalıştırmayı durdurur; eksik genotipte iki alel de eksik kodu olmalıdır (0/0) ya da hücre boş bırakılır (Bölüm 1.5). "Genotip okuma" satırındaki eksik sayısı beklenenle karşılaştırılır. - Paylaşılan alel uzaklığında az lokuslu çiftleri gözden kaçırmak. Eksik genotipli çift yalnız o lokusta atlanır; çok eksiği olan iki bireyin uzaklığı birkaç lokusa dayanır ve oynaktır. İki bireyin ikisinde de genotiplenmiş hiçbir lokus yoksa çalıştırma "Bazı birey çiftlerinin ortak genotipli lokusu yok." iletisiyle durur; genotiplerinin çoğu eksik olan bireyler veriden çıkarılır.
- Birey düzeyinde popülasyon koordinatı kullanmak. Bireyler popülasyonlarının koordinatını taşıyorsa (örnek veride olduğu gibi) aynı popülasyonun çiftleri sıfır uzaklıktadır; birey düzeyi çözümleme gerçekte popülasyon düzeyindeki bilgiyi yineler ve çift sayısını şişirir. Birey düzeyi, her bireyin kendi koordinatı varken anlamlıdır.
- Az popülasyonla Mantel testi. Üç popülasyonda p değeri 1/6'nın, dört popülasyonda 1/24'ün altına inemez. Birim sayısı altı ve altındayken (ya da istenen permütasyon sayısı olası düzen sayısını aşıyorsa) paket bütün düzenlemeleri sayar; tablodaki
permutasyonsütunu bu düzen sayısını verir (üç popülasyonda 5, beş popülasyonda 119) ve tam sayım bir notla bildirilir. Uzaklıkla yalıtım için en az 10–15 birim önerilir. - Korelogramın son sınıflarını yorumlamak. Uzak sınıflarda çift sayısı azdır (örnek veride son sınıfta 3 çift) ve yalnız birkaç uç popülasyon bu sınıfları doldurur. "Yarıda kes" seçeneği bu yüzden varsayılanda açıktır; kapatılırsa son sınıflardaki büyük |r| değerleri temkinle okunur. Mantel korelogramının gücü, özellikle kısa uzaklık sınıflarında, doyurucudur (Borcard ve Legendre, 2012).
- Korelogramda p değerlerinin hepsini düzeltilmiş sanmak. Aşamalı düzeltmede birinci sınıf düzeltilmez (92.4.7). Bütün sınıflar eşit önemdeyse ham p değerlerine klasik Holm ya da Benjamini–Hochberg düzeltmesi ayrıca uygulanır.
sifir_frekansseçeneğini gerekçesiz açmak. Bir popülasyonda okunamamış lokus, o popülasyonu herkesten yapay olarak uzaklaştırır (92.4.2).- Eksi F_{ST}'yi düzeltmeye çalışmak. Eksi kestirim sıfır farklılaşmanın örnekleme oynamasıdır; sıfıra çekilirse yakın çiftlerde yanlılık doğar ve eğim değişir. Şablon değeri olduğu gibi bırakır.
92.9 Uzman soruları
S1. Mantel testi mekânsal veride güvenilir mi?
Basit Mantel testi "iki matris ilişkisizdir" hipotezini doğru düzeyde sınar ve uzaklıkla yalıtım sorusu doğrudan bir matris–matris sorusudur; bu kullanım tartışmasızdır. Eleştiriler iki noktada toplanır. Birincisi güç: aynı veri ham değişkenler üzerinden çözümlenebiliyorsa (örneğin kısıtlı ordinasyon) Mantel testi daha güçsüzdür (Legendre ve ark., 2015). İkincisi kısmi Mantel: çevre değişkeni mekânsal olarak özilişkiliyse, genetikle hiçbir ilişkisi olmasa da kısmi test birinci tür hatayı adlandırılan düzeyin çok üstüne taşıyabilir (Guillot ve Rousset, 2013). Bu yüzden şablonun basit Mantel sonucu güvenle raporlanır; "çevre | coğrafi" kısmi testinin anlamlı çıkması tek başına çevreyle yalıtım kanıtı sayılmaz.
S2. İki boyutta neden logaritma, tek boyutta neden ham uzaklık?
İki bireyin (ya da popülasyonun) ortak ataya gitme olasılığı, soyların rastgele yürüyüşle birbirine ulaşma olasılığına bağlıdır. Tek boyutta bu olasılık uzaklıkla doğrusal azalır; iki boyutta yürüyüşün "kaçacak yeri" çoktur ve azalma logaritmiktir. Rousset (1997) bu yüzden iki boyutta F_{ST}/(1-F_{ST})\approx a+\ln d/(4\pi D\sigma^2), tek boyutta a+d/(4D\sigma^2) bulur. Yaşam alanı uzun ve dar ise (kıyı, vadi tabanı) tek boyutlu yaklaşım daha uygundur; şeridin genişliği \sigma'dan çok büyükse iki boyutlu yaklaşım geçerlidir.
S3. Mantel r neden hem ham uzaklıkla hem logaritmasıyla veriliyor; ikisi ne zaman ayrışır?
Pearson katsayısı doğrusal ilişkiyi ölçer; ilişki \ln d ile doğrusalsa ham uzaklıkla hesaplanan r ilişkiyi eksik yansıtır, tersi durumda fazla. Ham uzaklıkla test tek boyutlu modelin eksenidir ve genel amaçlı Mantel işlevlerinin, verilen matrisi dönüştürmeden kullandıkları için, kendiliğinden verdiği sonuçtur; logaritmayla test iki boyutlu modelin (Rousset, 1997) eksenidir ve regresyonla aynı ilişkiyi sınar (r^2=R^2). Şablon iki boyutlu seçenekte, popülasyon düzeyinde ikisini birlikte verir ("Mantel" ve "Mantel, ln(uzaklık)" satırları; aynı permütasyon düzenleriyle); birey düzeyinde sıfır uzaklıklı çiftlerde logaritma tanımsız olduğundan yalnız birincisi verilir. Örnek veride ham uzaklıkla 0{,}5747, logaritmayla 0{,}5483'tür (ikisinde de p=0{,}001); bu veride ilişki ham uzaklıkla biraz daha doğrusaldır (R^2: 0{,}330 ve 0{,}301) ve iki seçenek aynı karara varır. Geniş bir uzaklık aralığında (birkaç büyüklük mertebesi) fark büyüyebilir. Spearman seçeneği dönüşümden bağımsızdır (0{,}5935) ve hangi eksenin doğru olduğu bilinmediğinde sağlam bir seçimdir.
S4. Komşuluk büyüklüğü 43,9 ne demek; birey sayısı mı?
4\pi D\sigma^2, yarıçapı 2\sigma olan bir dairenin içindeki etkin birey sayısıdır (Wright, 1943): bir bireyin ebeveynlerinin büyük olasılıkla geldiği çevredeki üreyen birey sayısının mertebesi. Değer küçükse (onlar) farklılaşma kısa uzaklıkta hızla artar; büyükse (binler) uzaklıkla yalıtım zayıftır. Buradaki kestirim popülasyonlar arası F_{ST}'den gelir, geniş bir güven aralığı taşır (şablon aralık vermez) ve dengede olmayan popülasyonlarda yanlıdır. D ve \sigma^2 ayrı ayrı kestirilemez; biri bağımsız bir kaynaktan biliniyorsa öteki hesaplanabilir.
S5. Korelogramda "aşamalı Holm" neden kullanılıyor?
Korelogram yakın uzaklıktan uzağa doğru okunur: ilk sınıfın anlamlı olup olmadığı, kaç sınıf daha sınanacağından bağımsız bir sorudur. Aşamalı düzeltmede k. sınıf yalnız kendinden önceki sınıflarla birlikte düzeltilir; ilk sınıf hiç düzeltilmez, sonrakiler giderek daha sıkı sınanır (Legendre ve Legendre, 2012). Klasik Holm bütün sınıfları eşit sayar ve sınıf sayısı arttıkça ilk sınıfın gücünü de düşürür. Örnek veride ikinci sınıf aşamalı düzeltmeyle 0{,}042, klasik Holm ile 0{,}084'tür (92.6, Adım 6).
S6. Korelogramın sınıf sayısı sonucu ne kadar etkiler?
Sınıf sayısı azaldıkça her sınıftaki çift artar ve testler güçlenir, ama uzaklık çözünürlüğü düşer. Örnek veride sekiz sınıfla (genişlik 4,1 km) benzerlik ilk iki sınıfta anlamlıdır; altı sınıfla (5,5 km) yalnız ilk sınıfta (r=0{,}458; ikinci sınıf r=0{,}124, p=0{,}115). "Benzerliğin sürdüğü uzaklık" bu yüzden bir aralık olarak raporlanır (örnekte 6–9 km), tek bir sayı olarak değil. Sınıf sayısı sonuçlara bakılarak seçilmez.
S7. Edwards, Nei ve Rousset uzaklıklarından hangisi seçilmeli?
Rousset uzaklığı uzaklıkla yalıtım kuramının öngördüğü büyüklüktür ve örneklem büyüklüğü yanlılığı düzeltilmiştir; komşuluk büyüklüğü yalnız onunla kestirilir. Nei ve Edwards uzaklıkları alel frekanslarından doğrudan hesaplanır, küçük örneklemde yukarı yanlıdır (örneklem düzeltmesi içermezler) ve popülasyon büyüklükleri çok farklıysa bu yanlılık çiftten çifte değişir. Örnek veride Mantel r Rousset ile 0{,}575, Nei ile 0{,}649, Edwards ile 0{,}426'dır; üçü de aynı karara varır. Birincil sonuç olarak Rousset uzaklığı, duyarlılık denetimi olarak ötekiler raporlanır.
S8. Popülasyon koordinatı olarak bireylerin ortalaması uygun mu?
Popülasyon küçük bir alanda örneklenmişse evet. Bireyler popülasyonlar arası uzaklıkla karşılaştırılabilir bir alana yayılmışsa ortalama nokta bilgi kaybettirir ve yakın popülasyon çiftlerinin uzaklığını (dolayısıyla \ln d'yi) en çok etkiler. Boylam ve enlemin aritmetik ortalaması küçük alanlarda büyük çember ağırlık merkeziyle pratikte aynıdır; 180° boylam çizgisini kesen bir popülasyonda anlamsızlaşır.
S9. Eksik genotipler ve tek biçimli lokuslar nasıl işleniyor?
Hangi hücrenin eksik sayılacağını ortak ayrıştırıcı belirler (92.2; Bölüm 1.5): boş hücre, NA, 0, 00, 000, ?, -, . ve -9; alellerinden yalnız biri eksik kodu olan genotip çalıştırmayı durdurur ve eksik sayılanların dökümü çıktının başında yazılır. F_{ST}'de eksik genotip lokus bazında dışlanır; her lokus kendi okunmuş birey sayılarıyla hesaba girer. Edwards ve Nei'de popülasyon frekansları okunmuş bireylerden hesaplanır; popülasyonda tamamen eksik lokus için 92.4.2'deki seçenek geçerlidir. Birey düzeyinde Öklid uzaklığında eksik genotip alel ortalamasıyla doldurulur; bu, eksik genotipli bireyi "ortalama birey"e yaklaştırır ve uzaklıklarını küçültür. Paylaşılan alel uzaklığında eksik genotipli çift yalnız o lokusta atlanır; oran, iki bireyde de genotiplenmiş lokuslar üzerinden hesaplanır (92.4.3). Tek biçimli lokuslar bütün uzaklıklarda bilgi taşımaz ve baştan dışlanır; özet satırındaki lokus sayısı kalan lokuslardır. "Eksik genotip kodları" alanı doluysa bu liste yerine alandaki kodlar eksik sayılır (boş hücre ve NA her zaman eksik) ve yarı eksik genotip için durma kuralı yeni listeyle işler; VCF tarzı 0/1 kodlu veride alana yalnız . yazılınca 0 gerçek bir alel olarak okunur (satır 131–132).
92.10 Kaynaklar
- Awad, L., Fady, B., Khater, C., Roig, A., & Cheddadi, R. (2014). Genetic structure and diversity of the endangered fir tree of Lebanon (Abies cilicica Carr.): Implications for conservation. PLoS ONE, 9(2), e90086. https://doi.org/10.1371/journal.pone.0090086
- Borcard, D., & Legendre, P. (2012). Is the Mantel correlogram powerful enough to be useful in ecological analysis? A simulation study. Ecology, 93(6), 1473–1481. https://doi.org/10.1890/11-1737.1
- Bowcock, A. M., Ruiz-Linares, A., Tomfohrde, J., Minch, E., Kidd, J. R., & Cavalli-Sforza, L. L. (1994). High resolution of human evolutionary trees with polymorphic microsatellites. Nature, 368(6470), 455–457. https://doi.org/10.1038/368455a0
- Edwards, A. W. F. (1971). Distances between populations on the basis of gene frequencies. Biometrics, 27(4), 873–881. https://doi.org/10.2307/2528824
- Goudet, J. (2005). hierfstat, a package for R to compute and test hierarchical F-statistics. Molecular Ecology Notes, 5(1), 184–186. https://doi.org/10.1111/j.1471-8286.2004.00828.x
- Guillot, G., & Rousset, F. (2013). Dismantling the Mantel tests. Methods in Ecology and Evolution, 4(4), 336–344. https://doi.org/10.1111/2041-210x.12018
- Jombart, T. (2008). adegenet: A R package for the multivariate analysis of genetic markers. Bioinformatics, 24(11), 1403–1405. https://doi.org/10.1093/bioinformatics/btn129
- Legendre, P., Fortin, M.-J., & Borcard, D. (2015). Should the Mantel test be used in spatial analysis? Methods in Ecology and Evolution, 6(11), 1239–1247. https://doi.org/10.1111/2041-210X.12425
- Legendre, P., & Legendre, L. (2012). Numerical ecology (3rd English ed.). Elsevier.
- Mantel, N. (1967). The detection of disease clustering and a generalized regression approach. Cancer Research, 27(2), 209–220.
- Meirmans, P. G. (2012). The trouble with isolation by distance. Molecular Ecology, 21(12), 2839–2846. https://doi.org/10.1111/j.1365-294X.2012.05578.x
- Nei, M. (1972). Genetic distance between populations. The American Naturalist, 106(949), 283–292. https://doi.org/10.1086/282771
- Oden, N. L., & Sokal, R. R. (1986). Directional autocorrelation: An extension of spatial correlograms to two dimensions. Systematic Zoology, 35(4), 608–617. https://doi.org/10.2307/2413120
- Oksanen, J., Simpson, G. L., Blanchet, F. G., et al. (2026). vegan: Community ecology package (R package version 2.7-6). https://doi.org/10.32614/CRAN.package.vegan
- Rousset, F. (1997). Genetic differentiation and estimation of gene flow from F-statistics under isolation by distance. Genetics, 145(4), 1219–1228. https://doi.org/10.1093/genetics/145.4.1219
- Rousset, F. (2000). Genetic differentiation between individuals. Journal of Evolutionary Biology, 13(1), 58–62. https://doi.org/10.1046/j.1420-9101.2000.00137.x
- Slatkin, M. (1993). Isolation by distance in equilibrium and non-equilibrium populations. Evolution, 47(1), 264–279. https://doi.org/10.1111/j.1558-5646.1993.tb01215.x
- Smouse, P. E., Long, J. C., & Sokal, R. R. (1986). Multiple regression and correlation extensions of the Mantel test of matrix correspondence. Systematic Zoology, 35(4), 627–632. https://doi.org/10.2307/2413122
- Wang, I. J., & Bradburd, G. S. (2014). Isolation by environment. Molecular Ecology, 23(23), 5649–5662. https://doi.org/10.1111/mec.12938
- Weir, B. S., & Cockerham, C. C. (1984). Estimating F-statistics for the analysis of population structure. Evolution, 38(6), 1358–1370. https://doi.org/10.1111/j.1558-5646.1984.tb05657.x
- Wright, S. (1943). Isolation by distance. Genetics, 28(2), 114–138. https://doi.org/10.1093/genetics/28.2.114