90. Aile tabanlı iletim/dengesizlik testi (TDT)
Şablon kimliği: tdt · Kategori: genetik · Dil: R · Dosya: pro/sablonlar/genetik/tdt.R (satır 1–227; üstbilgi 1–100) · Örnek veri: _ornek/tdt_aileler.csv · Paketler: taban R (stats, graphics)
90.1 Ne işe yarar
Şablon, hasta çocuk ile annesi ve babasından oluşan üçlülerde (trio) iki alelli bir işaretleyicinin (SNP) hastalıkla birlikte aktarılıp aktarılmadığını sınar. Cevapladığı soru şudur: "Heterozigot ebeveynler belli bir aleli hasta çocuklarına yarı yarıya mı, yoksa şansın açıklayamayacağı kadar sık (ya da seyrek) mi veriyor?"
Heterozigot bir ebeveyn (genotipi A/B) çocuğuna iki alelinden birini verir. İşaretleyici hastalıkla ilgisizse hangisinin verileceği Mendel'in birinci yasasına göre yazı tura atışıdır:
- \tau: iletim olasılığı; H_0 altında tam 0{,}5'tir, kestirilmesi gereken bir popülasyon parametresi değildir.
- Test aleli: iletimi sayılan alel (0/1/2 kodlamasında B aleli). Öteki alel için \tau'=1-\tau'dur; test iki alel için aynı sonucu verir, yalnız yön değişir.
- H_0 ancak iki koşul birlikte sağlanınca bozulur: işaretleyici hastalık lokusuna bağlı (aynı kromozom bölgesinde) olmalı ve onunla bağlantı dengesizliği (popülasyon düzeyinde alel birlikteliği) içinde olmalıdır.
Karşılaştırma aile içinde yapıldığından popülasyon tabakalaşması testi bozmaz: farklı kökenlerden ailelerin karışması alel frekanslarını değiştirir ama bir heterozigot ebeveynin iki alelinden hangisini verdiğini etkilemez. Vaka–kontrol tasarımının en büyük zayıflığı bu tasarımda yoktur (Spielman ve ark., 1993).
Şablon her SNP için şunları verir: test alelinin iletilme (b) ve iletilmeme (c) sayıları; McNemar türü \chi^2 ve p; kesin binom p'si; iletim oranı \hat\tau ve Clopper–Pearson aralığı; iletim odds oranı b/c ve Wald aralığı; SNP'ler üzerinden düzeltilmiş p değerleri; Mendel kalıtımına aykırı üçlülerin sayısı.
Ne zaman kullanılır? Hasta çocuk ve iki ebeveynin genotiplendiği aday gen ya da bölge çalışmalarında; vaka–kontrol bulgusunun tabakalaşmadan gelip gelmediğini aile verisiyle sınamak için; genotipleme ve soy kütüğü kalitesini Mendel hatalarıyla denetlemek için.
Ne zaman kullanılmaz?
- Aile verisi yoksa, bağımsız vaka ve kontroller varsa:
vaka_kontrol_genetik(Bölüm 93). - Özellik sürekliyse (boy, kan basıncı) ve bireyler akraba değilse:
gwas(Bölüm 76). - İkiden çok alelli işaretleyiciler (mikrosatellit): şablon bu lokusları atlar; çok alelli genişletme (Sham ve Curtis, 1995) şablonda yoktur.
- Ebeveynlerden biri genotiplenmemişse ya da yalnız kardeşler varsa: şablon bu aileleri kullanmaz; kardeş tabanlı testler (Spielman ve Ewens, 1998) şablonda yoktur.
- X kromozomu işaretleyicileri: baba oğluna X vermez; şablon cinsiyeti hesaba katmaz.
Temel programla ilişki. Temel programda McNemar testi ve binom testi vardır; b ve c elle sayılabilirse aynı \chi^2 ve kesin p oradan da alınır. Temel programda olmayan, soy kütüğünden üçlülerin kurulması, iletimlerin genotiplerden çıkarılması ve Mendel hatası denetimidir; şablonun işi budur.
90.2 Şablonun girdileri
Form, üstbilgideki on üç [[param]] bloğundan kurulur (tdt.R:10–92).
| Alan (form etiketi) · ad | Tür · sekme | Varsayılan | Geçerli değerler | Kodda etkisi |
|---|---|---|---|---|
Aile kimliği · aile |
kategorik sütun · Değişkenler | boş (isteğe bağlı) | herhangi sütun | Ebeveyn kimlikleri aynı aile içinde aranır; boşsa bütün veri tek aile sayılır (110, 119, 121). |
Birey kimliği · birey |
sütun · Değişkenler | ilk uygun sütun | herhangi sütun | Aile içinde tekil olmalı (120–123). |
Baba kimliği · baba |
sütun · Değişkenler | ilk uygun sütun | boş, 0, NA = kurucu |
Babanın satırı bulunur (127). |
Ana kimliği · ana |
sütun · Değişkenler | ilk uygun sütun | boş, 0, NA = kurucu |
Ananın satırı bulunur (127). |
Hastalık durumu · durum |
sütun · Değişkenler | boş (isteğe bağlı) | herhangi sütun | Boşsa iki ebeveyni veride bulunan herkes hasta sayılır (111, 125). |
Etkilenmiş kodu · etkilenmis |
metin · Değişkenler | 2 |
virgülle ayrılmış kodlar | Durumu bu kodlardan biri olan bireyler çocuk adayıdır (124–125). |
SNP sütunları · lokuslar |
sütunlar · Değişkenler | yok (en az 1) | a1/a2 metni ya da sayısal 0/1/2 |
Her sütun ayrı sınanır (114, 149). |
Alel ayırıcısı · ayirici |
metin · Değişkenler | / |
boş olmayan metin | Metin genotipi iki alele böler (116, 150). |
Eksik genotip kodları · eksik_kodlar |
metin · Değişkenler | boş | virgülle ayrılmış kodlar | Boşsa varsayılan liste (boş hücre, NA, 0, 00, 000, ?, -, ., -9) eksik sayılır; doluysa alandaki kodlar bu listenin yerine geçer (boş hücre ve NA her zaman eksik); baş ve son boşluk kırpılır, boş kodlar atılır (satır 105–106; Bölüm 1.5). |
Çoklu test düzeltmesi · duzeltme |
seçim · Seçenekler | holm |
holm, BH, bonferroni, hochberg, hommel, BY, none |
p.adjust(method =); \chi^2 ve kesin p'ye ayrı ayrı (186–188). |
Güven düzeyi · guven |
ondalık · Seçenekler | 0,95 | 0,5–0,999 | İletim oranı ve odds oranı aralıkları (142, 177). |
\chi^2'de süreklilik düzeltmesi · sureklilik |
onay · Seçenekler | kapalı | açık / kapalı | Açıksa (\lvert b-c\rvert-1)^2/(b+c) (143, 176). |
Grafikte vurgulama eşiği · alfa |
ondalık · Çıktı | 0,05 | 0,0001–0,5 | Yalnız grafikte renk (144, 219). |
Grafikteki en çok SNP sayısı · grafik_snp |
tamsayı · Çıktı | 30 | 1–500 | En küçük p'li SNP'ler çizilir (145, 215). |
Örnek ayar (ornek_param, satır 9): beş kimlik ve durum sütunu adlarıyla, lokuslar 43 SNP sütununun tamamı; öteki alanlar varsayılandadır.
Şablonun kendi denetimleri.
| Koşul | İleti (özet) | Satır |
|---|---|---|
| Veri açık değil | "Önce Veri sekmesinde bir veri açın." | 108 |
| Aile, birey, baba, ana, durum için aynı sütun iki kez seçilmiş | "… farklı sütunlar seçilmeli." | 113 |
| Rol sütunları çıkarılınca SNP kalmadı | "En az bir SNP sütunu seçilmeli …" | 115 |
Birey kimliği boş, 0 ya da NA olan satır |
"Birey kimliği eksik satırlar var." | 122 |
| Aynı ailede aynı birey kimliği iki kez | "Birey kimliği aile içinde tekil olmalı (yinelenen: …)." | 123 |
| Durum sütununda etkilenmiş kodu yok | "Durum sütununda etkilenmiş kodu ('2') bulunamadı." | 126 |
| Hiç üçlü kurulamadı | "Hiç üçlü … kurulamadı. Baba/ana kimliklerinin … eşleştiğini denetleyin. (baba kimliği veride yok: …; ana kimliği veride yok: …; yalnız bir ebeveyn kimliği yazılı: …)" | 139 |
Sayısal SNP'de 0/1/2 dışında değer; metin SNP'de ayırıcısız ya da üç parçalı genotip; bütün değerler eksik; alellerinden yalnız biri eksik kodu olan genotip (0/1) |
ortak genotip ayrıştırıcısının iletileri (Bölüm 1.5) | 99 (çağrı 143) |
| Hiçbir SNP sınanamadı (hepsi ikiden çok alelli) | "Sınanabilecek iki alelli SNP kalmadı." | 185 |
Notlar ve uyarılar (durdurmaz). Ebeveyninden en az biri veride bulunmayan hasta sayısı ve nedeni (baba kimliği veride yok, ana kimliği veride yok, yalnız bir ebeveyn kimliği yazılı; bulunamayan kimliklerden örnekler) (141); ikiden çok alelli lokusun atlandığı (154); genotip okuma dökümü (189); eksik genotip nedeniyle bir SNP'nin testine alınmayan üçlüler (194); üçlü sayısı aile sayısını aşıyorsa bağımsızlık notu (197); Mendel hatası bulunan SNP sayısı ve toplam hata (205); b+c=0 olan SNP'ler (209); b+c<10 olan SNP varsa kesin p önerisi (212).
Eksik değer kuralı. Kimliklerde boş hücre, 0 ve NA "yok" demektir (satır 118). Genotiplerde boş hücre ile NA, na, 0, 00, 000, ?, -, . ve -9 eksik sayılır; iki alelin ikisi de eksik kodu olmalıdır (0/0, -9/-9), o zaman genotipin tamamı eksik olur (satır 105–106; ortak ayrıştırıcı, Bölüm 1.5). Alellerinden yalnız biri eksik kodu olan genotip (0/1) çalıştırmayı durdurur: 0 adlı gerçek bir alel varsa yeniden kodlanır. Üç bireyden birinin genotipi eksik olan üçlü yalnız o SNP'de kullanılmaz; kaç üçlünün bu yüzden dışarıda kaldığı çıktıda yazılır. "Eksik genotip kodları" alanı doluysa bu liste yerine alandaki kodlar eksik sayılır (boş hücre ve NA her zaman eksik) ve yarı eksik genotip için durma kuralı yeni listeyle işler; VCF tarzı 0/1 kodlu veride alana yalnız . yazılınca 0 gerçek bir alel olarak okunur (satır 105–106).
90.3 Örnek veri
Dosya: _ornek/tdt_aileler.csv; 3017 satır (birey), 49 sütun. snpStats paketinin families verisidir (Clayton, 2025): 733 aile, 43 SNP; genotipler B alelinin kopya sayısı olarak 0/1/2 kodludur.
| Değişken | Rol | Tür (veri sekmesi) | Özet |
|---|---|---|---|
aile |
Aile kimliği | kategorik | fam0005 … ; 733 aile; 678 aile dört kişilik (iki ebeveyn, iki çocuk). |
birey |
Birey kimliği | sayısal (tamsayı) | Aile içinde 1, 2, 3, … |
baba, ana |
Ebeveyn kimlikleri | sayısal (boşluklu) | Kurucularda boş. |
cinsiyet |
kullanılmaz | ikili | 1: 1541, 2: 1476. |
durum |
Hastalık durumu | ikili | 1 (sağlıklı): 1445; 2 (hasta): 1571; boş: 1. |
rs91126 … rs98918 |
43 SNP | sayısal | 0/1/2; SNP başına 53–275 eksik. |
Hasta 1571 bireyin 1466'sının iki ebeveyni de veridedir: 1466 üçlü, 733 ailede. Ailelerin çoğu iki hasta kardeş içerir ve iki üçlü verir; bunun yorumdaki sonucu 90.8'de ve S2'de ele alınır. Kategorik düzey sırası bu şablonda rol oynamaz; kimlikler ve durum kodu metin olarak karşılaştırılır.
Bu bölümde kullanılan çalıştırmalar: (1) örnek ayar; (2) dört SNP, süreklilik düzeltmesi açık, güven düzeyi 0,90, düzeltme BH; (3) durum sütunu boş; (4) ek sınama verisi dogrulama/tdt/tdt_kucuk.csv (ilk 60 aile, 239 birey; rs6699'un A/G, G/A ve T/C metin kodlu kopyaları, tek alelli bir sütun, üç alelli bir sütun); (5) satır sırası karıştırılmış örnek veri.
90.4 Yöntem: formüller ve hesap adımları
Hesap sırası: (1) soy kütüğünden üçlüleri kur; (2) her SNP'de genotipleri test aleli sayısına çevir; (3) eksik ve Mendel kalıtımına aykırı üçlüleri ayır; (4) heterozigot ebeveynlerin iletimlerini say; (5) \chi^2 ve kesin binom testi; (6) iletim oranı ve odds oranı aralıkları; (7) SNP'ler üzerinden düzeltme.
90.4.1 Üçlülerin kurulması
Her bireyin anahtarı "aile kimliği + birey kimliği"dir. Hasta bir birey, baba ve ana kimliklerinin ikisi de dolu ve ikisi de aynı ailede birey olarak bulunuyorsa bir üçlünün çocuğudur (satır 121–128). İki hasta kardeş aynı ebeveynlerle iki ayrı üçlü oluşturur; üç kuşaklı ailede hasta bir ebeveyn, kendi ebeveynleri veride ise ayrıca çocuk olarak da sayılır.
Koddaki tercih
Birey, baba, ana ve aile kimlikleri aynı biçimli metne çevrilir (mq_kimlik(), satır 117–120): baştaki ve sondaki boşluk kırpılır, sayısal kimlikte bilimsel gösterim ve .0 eki olmaz (100000 her sütunda "100000"), 0 kurucu kodu olarak eksik sayılır. Eşleşme match() ile yapılır; satırların sırası sonucu etkilemez (çalıştırma 5). Aile sütunu verilmezse aile anahtarı boş metindir ve birey kimlikleri bütün veride tekil olmalıdır. Durum sütunu da metin olarak karşılaştırılır: 2, 2.0 değil, tam olarak yazılan kod aranır.
90.4.2 Mendel denetimi
Genotipler test aleli sayısına (0{,}1{,}2) çevrilir: çocuk C, baba F, ana M. Bir ebeveyn test alelini, sayısı 2 ise kesinlikle, 1 ise belki, 0 ise hiç veremez. Çocuğun sayısı şu aralıkta olmalıdır:
- [\cdot]: koşul doğruysa 1, değilse 0.
- Sol yan: çocuğun en az alacağı test aleli sayısı (homozigot test aleli taşıyan ebeveyn sayısı).
- Sağ yan: en çok alabileceği sayı (test alelini taşıyan ebeveyn sayısı).
- Aralığın dışındaki üçlü Mendel hatasıdır: ör. F=0, M=0, C=1.
Hatalı üçlüler o SNP'nin sayımından çıkarılır ve ayrı tabloda raporlanır (satır 162–163, 170). Aralık denetimi iki alelli lokusta bütün aykırılıkları yakalar; tek istisna yoktur, çünkü 27 olası (F,M,C) birleşiminin 15'i aralığın içindedir ve bunların hepsi kalıtımla bağdaşır.
Neden hatalı üçlü atılıyor, düzeltilmiyor?
Mendel hatası üç genotipten en az birinin yanlış okunduğunu ya da soy kütüğünün yanlış olduğunu gösterir, ama hangisinin yanlış olduğunu göstermez. Şablon yaygın kuralı izler: üçlü o SNP'de kullanılmaz (Purcell ve ark., 2007). Hata sayısı az ise etkisi küçüktür; çok ise SNP'nin kendisi güvenilmezdir. Örnek veride 36 SNP'de toplam 211 hata vardır (SNP başına en çok 16; 1466 üçlünün %1,1'i).
90.4.3 İletimlerin sayılması
Yalnız heterozigot ebeveyn (F=1 ya da M=1) bilgi taşır. Üç durum vardır (satır 166–168):
- b: test alelinin heterozigot ebeveynden hasta çocuğa iletildiği durumların sayısı; c: iletilmediği durumların sayısı.
- Birinci toplam: yalnız baba heterozigot. Ana homozigottur ve M/2 kopya (0 ya da 1) verir; çocuğun geri kalan C-M/2 kopyası babadan gelmiştir.
- İkinci toplam: aynı hesap ana için.
- Üçüncü toplam: iki ebeveyn de heterozigot. Çocuktaki C kopya iki ebeveynin toplam iletimidir; bu üçlü b'ye C, c'ye 2-C ekler. Çocuk da heterozigotsa (C=1) hangi ebeveynin verdiği bilinmez ama sayım değişmez: bir iletim, bir iletmeme.
- b+c: bilgi veren (heterozigot) ebeveyn sayısıdır, üçlü sayısı değildir.
90.4.4 McNemar türü ki-kare
- \chi^2_{\text{TDT}}: H_0 altında b\sim\text{Binom}(b+c,\tfrac12)'dir; beklenen (b+c)/2, varyans (b+c)/4. (b-(b+c)/2)^2/((b+c)/4) sadeleşince bu ifade çıkar.
- \chi^2_{\text{düz}}: süreklilik (Yates) düzeltmeli biçim; yalnız onay kutusu açıksa kullanılır. \lvert b-c\rvert<1 ise sıfırdır (satır 176).
- Serbestlik derecesi 1'dir; istatistik eşleştirilmiş çiftler için McNemar (1947) testiyle aynıdır: çift, heterozigot ebeveynin "verdiği" ve "vermediği" alelidir.
Neden varsayılan süreklilik düzeltmesiz?
Düzeltme, kesikli binom dağılımını sürekli \chi^2 ile yaklaşıklarken kuyruk olasılığını kesin değere yaklaştırır; karşılığında testi tutucu yapar. TDT yazını ve bu alanın yazılımları düzeltmesiz istatistiği raporlar (Spielman ve ark., 1993); şablon yayımlanmış değerlerle karşılaştırılabilirlik için bunu varsayılan tutar ve kesin p'yi her zaman yan sütunda verir. Örnekte rs6699 için düzeltmesiz p=1{,}81\times10^{-4}, düzeltmeli p=2{,}10\times10^{-4}, kesin p=2{,}05\times10^{-4}'tür: düzeltmeli değer kesin değere daha yakındır.
90.4.5 Kesin binom testi
- P(k): b+c bilgi veren ebeveynden k'sinin test alelini iletme olasılığı (H_0 altında).
- Toplam, olasılığı gözlenen sonucunkinden büyük olmayan bütün k değerleri üzerindendir; p_0=\tfrac12 olduğunda dağılım simetriktir ve bu, iki kuyruğun toplamına eşittir.
Koddaki tercih
Hesap stats::binom.test(b, b + c, 0.5, conf.level = guven) çağrısıdır (satır 177). Fonksiyon "eşit olasılıklı" sonuçları karşılaştırırken 1+10^{-7} göreli payı kullanır; böylece P(k)=P(b) olan simetrik sonuç (k=c) kayan nokta yuvarlamasıyla dışarıda kalmaz. Aynı çağrı iletim oranının Clopper–Pearson aralığını da verir. Süreklilik seçeneği kesin p'yi değiştirmez.
b+c küçükken ki-kare p'si kullanılmaz
Ek veride rs77065 için b=1, c=3: \chi^2=1, p=0{,}317; kesin p=0{,}625. Şablon b+c<10 olan SNP varsa not yazar. Düzeltilmiş p sütunları ikisi için ayrı ayrı verilir; grafikteki renk \chi^2 tabanlı düzeltilmiş p'ye göredir.
90.4.6 İletim oranı ve odds oranı
- \hat\tau: iletim oranı; aralığı Clopper–Pearson (1934) kesin aralığıdır: alt sınır \text{Beta}(\alpha/2;\ b,\ c+1), üst sınır \text{Beta}(1-\alpha/2;\ b+1,\ c) kantilidir.
- \widehat{OR}=\hat\tau/(1-\hat\tau): iletim odds oranı. Çarpımsal modelde, test alelinin bir kopyasının hastalık riskine göreli etkisinin (genotip göreli riski) kestirimidir.
- \sqrt{1/b+1/c}: \ln(b/c)'nin büyük örneklem standart hatası; aralık log ölçekte simetriktir (Wald).
- b=0 ya da c=0 ise odds oranı ve aralığı boş bırakılır (satır 178–179); iletim oranı ve kesin aralığı yine verilir.
İki aralık farklı yöntemle kurulduğundan birbirine tam karşılık gelmez: iletim oranı aralığı kesin ve tutucudur, odds oranı aralığı yaklaşıktır. b+c küçükse birincisi esas alınır.
90.4.7 Çoklu test düzeltmesi
Çalıştırmadaki bütün SNP'lerin p değerleri tek aile sayılır; \chi^2 p'leri ve kesin p'ler ayrı ayrı düzeltilir (satır 187–188). b+c=0 olan SNP'nin p'si boştur ve aileye girmez. Holm ve Benjamini–Hochberg formülleri Bölüm 78.4.7'dedir.
Neden varsayılan Holm?
Şablon aday gen ölçeğindeki çalışmalar (onlarca SNP) için tasarlanmıştır; bu ölçekte tek bir yanlış bulgunun bedeli yüksektir ve ailece hata oranı uygun ölçüttür. Aynı bölgedeki SNP'ler bağlantı dengesizliği nedeniyle ilişkilidir; Holm her bağımlılık yapısında geçerlidir, ama ilişkili testlerde tutucudur. Binlerce SNP'de BH seçilir.
90.5 Kod adım adım
| Satırlar | Ne yapar | Neden / dikkat |
|---|---|---|
| 1–100 | Üstbilgi: on üç parametre, örnek veri ve ayar. | Form buradan kurulur (Bölüm 1.2). |
| 101–106 | .m() dil seçici; .gn_eksik ve .gn_genotip ortak yardımcılara (mq_genotip_eksik, mq_genotip) bağlanır. |
Genetik şablonlarının ortak ayrıştırıcısı (Bölüm 1.5). Sayısal sütun 0/1/2 → A/B. |
| 108–123 | Rol sütunları; SNP listesinden rollerin çıkarılması; kimliklerin mq_kimlik() ile metne çevrilmesi; tekillik denetimi. |
kim() boş, 0 ve NA kimlikleri eksik yapar (118). |
| 124–141 | Hasta bireyler; baba ve ana satırlarının match() ile bulunması; üçlü listesi; üçlü kurulamayan hastaların sayısı ve nedeni. |
Üçlüler SNP'den bağımsız, bir kez kurulur. |
| 142–145 | z kantili, süreklilik seçeneği, grafik ayarları. | |
| 149–157 | SNP döngüsü: ayrıştırma, alel listesi, ikiden çok alelde atlama, test alelinin seçimi. | Metin kodlamada test aleli ad sırasındaki ikinci aleldir (157). |
| 158–170 | Test aleli sayıları; eksiksizlik; Mendel denetimi; b ve c; Mendel tablosu. | ifelse ile üç durum ayrı toplanır (167–168). |
| 171–183 | b+c=0 satırı; \chi^2, binom testi, odds oranı; sonuç satırı. | |
| 185–212 | Düzeltme; genotip okuma dökümü; özet satırı; üçlü ve aile notları; iki tablo; uyarılar. | |
| 213–226 | En küçük p'li SNP'lerin odds oranı grafiği (log ölçek). | Odds oranı boş olan SNP çizilmez. |
Test alelinin seçimi kısa ama sonuçların yönünü belirleyen satırdır:
test_al <- if (identical(al, c("A", "B")) || length(al) < 2) "B" else al[2]
al, lokusta gözlenen alellerin ad sırasına dizilmiş listesidir. 0/1/2 kodlamada aleller A ve B'dir, test aleli B olur. Metin kodlamada ad sırasındaki ikinci alel alınır: A/G verisinde G, C/T verisinde T. Aynı SNP G/A yerine T/C harfleriyle yazılırsa test aleli değişmez gibi görünse de hangi biyolojik alelin "ikinci" olduğu harflere bağlıdır; \chi^2 ve p aynı kalır, b ile c yer değiştirir, \hat\tau yerine 1-\hat\tau, odds oranı yerine tersi yazılır (ek veride m_AG: b=22, c=44, OR =0{,}5; m_TC: b=44, c=22, OR =2). Sonuç tablosunun test_aleli sütunu her yorumdan önce okunur.
90.6 Elle hesap: örnek veride bağımsız yeniden hesap
Ara değerler dogrulama/tdt/elle_hesap.py ile hesaplanmıştır: üçlüler sözlükle kurulmuş, iletimler üçlü üçlü gamet izlenerek sayılmış, binom olasılıkları log-gama ile doğrudan toplanmıştır. R tarafında (r_dogrulama.R) üçlüler merge ile kurulmuş, sayım 3\times3\times3 genotip tablosundan yapılmıştır.
Adım 1 — Üçlüler. 1571 hasta bireyden 1507'sinin en az bir ebeveyn kimliği doludur; 1466'sının iki ebeveyni de aynı ailede bulunur, 41'inin bulunmaz. Üçlü sayısı 1466, aile sayısı 733'tür.
Adım 2 — rs6699: genotip tablosu. 1466 üçlünün 146'sında üç genotipten en az biri eksiktir; kalan 1320 üçlü (baba, ana, çocuk test aleli sayılarına göre):
| F | M | C=0 | C=1 | C=2 |
|---|---|---|---|---|
| 0 | 0 | 643 | 2 | 0 |
| 0 | 1 | 146 | 101 | 0 |
| 0 | 2 | 0 | 20 | 0 |
| 1 | 0 | 146 | 128 | 0 |
| 1 | 1 | 28 | 41 | 12 |
| 1 | 2 | 0 | 5 | 3 |
| 2 | 0 | 2 | 33 | 0 |
| 2 | 1 | 0 | 5 | 3 |
| 2 | 2 | 0 | 0 | 2 |
Kalın yazılan dört üçlü Mendel hatasıdır: iki ebeveyn de test alelini taşımazken çocukta bir kopya (0{,}0{,}1) ve baba iki kopya taşırken çocukta hiç kopya yok (2{,}0{,}0). Kullanılan üçlü sayısı 1320-4=1316.
Adım 3 — İletim sayıları.
| Durum | İletildi | İletilmedi |
|---|---|---|
| Yalnız baba heterozigot: (1{,}0,\cdot) ve (1{,}2,\cdot) | 128+3=131 | 146+5=151 |
| Yalnız ana heterozigot: (0{,}1,\cdot) ve (2{,}1,\cdot) | 101+3=104 | 146+5=151 |
| İkisi de heterozigot: (1{,}1,\cdot) | 41+2\cdot12=65 | 41+2\cdot28=97 |
| Toplam | b=300 | c=399 |
Bilgi veren ebeveyn sayısı b+c=699'dur; 1316 üçlünün 2632 ebeveyninden yalnız 699'u heterozigottur.
Adım 4 — Ki-kare.
Süreklilik düzeltmesiyle (99-1)^2/699=9604/699=13{,}7396280, p=2{,}099771\times10^{-4}.
Adım 5 — Kesin binom. \text{Binom}(699,\tfrac12) dağılımında olasılığı P(300)'den büyük olmayan sonuçlar k\le300 ve k\ge399'dur; toplamları p_{\text{kesin}}=2{,}053272\times10^{-4}.
Adım 6 — İletim oranı ve odds oranı.
Clopper–Pearson %95 aralığı [0{,}3921424;\ 0{,}4668269]; odds oranı aralığı \exp(\ln0{,}7518797\pm1{,}959964\cdot0{,}0764173)=[0{,}6472944;\ 0{,}8733631].
Adım 7 — Holm düzeltmesi. 43 SNP'nin hepsinde b+c>0'dır, m=43. En küçük p rs6699'undur: 43\cdot1{,}807362\times10^{-4}=0{,}0077717. İkinci en küçük rs99786'nındır (b=212, c=271, p=0{,}0072618): 42\cdot0{,}0072618=0{,}3049964. Öteki 41 SNP'nin düzeltilmiş p'si 0,65 ve üzeridir.
90.6.1 Doğrulama: MerQuR+, Python ve R
MerQuR+ sütunu şablonun "TDT sonuçları" tablosundan tam hassasiyetle alınmıştır (çalıştırmalar 1–5).
| Büyüklük | MerQuR+ | Python (bağımsız) | R (bağımsız) | En büyük fark | |
|---|---|---|---|---|---|
| Üçlü sayısı | 1466 | 1466 | 1466 | 0 | ✓ |
| Mendel hatası (43 SNP toplamı) | 211 | 211 | 211 | 0 | ✓ |
| rs6699: b | 300 | 300 | 300 | 0 | ✓ |
| rs6699: c | 399 | 399 | 399 | 0 | ✓ |
| rs6699: \chi^2 | 14,02145923 | 14,02145923 | 14,02145923 | 8,9e−16 | ✓ |
| rs6699: p | 1,807362·10−4 | 1,807362·10−4 | 1,807362·10−4 | 2,4e−19 | ✓ |
| rs6699: kesin p | 2,053272·10−4 | 2,053272·10−4 | 2,053272·10−4 | 6,4e−17 | ✓ |
| rs6699: \hat\tau | 0,42918455 | 0,42918455 | 0,42918455 | 1,7e−16 | ✓ |
| rs6699: \tau alt | 0,39214239 | 0,39214239 | 0,39214239 | 4,2e−15 | ✓ |
| rs6699: \tau üst | 0,46682691 | 0,46682691 | 0,46682691 | 4,6e−15 | ✓ |
| rs6699: OR | 0,7518797 | 0,7518797 | 0,7518797 | 2,2e−16 | ✓ |
| rs6699: OR alt | 0,64729442 | 0,64729442 | 0,64729442 | 4,4e−16 | ✓ |
| rs6699: OR üst | 0,87336314 | 0,87336314 | 0,87336314 | 2,2e−16 | ✓ |
| rs6699: düzeltilmiş p | 0,00777166 | 0,00777166 | 0,00777166 | 1,1e−17 | ✓ |
| rs6699: düzeltilmiş kesin p | 0,00882907 | 0,00882907 | 0,00882907 | 4,0e−15 | ✓ |
| rs99786: b | 212 | 212 | 212 | 0 | ✓ |
| rs99786: c | 271 | 271 | 271 | 0 | ✓ |
| rs99786: \chi^2 | 7,20703934 | 7,20703934 | 7,20703934 | 0 | ✓ |
| rs99786: p | 0,00726182 | 0,00726182 | 0,00726182 | 9,5e−18 | ✓ |
| rs99786: kesin p | 0,00824616 | 0,00824616 | 0,00824616 | 3,5e−15 | ✓ |
| rs99786: \hat\tau | 0,4389234 | 0,4389234 | 0,4389234 | 3,9e−16 | ✓ |
| rs99786: \tau alt | 0,39412349 | 0,39412349 | 0,39412349 | 4,7e−15 | ✓ |
| rs99786: \tau üst | 0,48447545 | 0,48447545 | 0,48447545 | 4,3e−15 | ✓ |
| rs99786: OR | 0,78228782 | 0,78228782 | 0,78228782 | 2,2e−16 | ✓ |
| rs99786: OR alt | 0,65361209 | 0,65361209 | 0,65361209 | 0 | ✓ |
| rs99786: OR üst | 0,93629577 | 0,93629577 | 0,93629577 | 1,1e−16 | ✓ |
| rs99786: düzeltilmiş p | 0,30499638 | 0,30499638 | 0,30499638 | 5,6e−17 | ✓ |
| rs99786: düzeltilmiş kesin p | 0,34633889 | 0,34633889 | 0,34633889 | 1,5e−13 | ✓ |
| rs77065 (b+c=32): b | 15 | 15 | 15 | 0 | ✓ |
| rs77065 (b+c=32): c | 17 | 17 | 17 | 0 | ✓ |
| rs77065 (b+c=32): \chi^2 | 0,125 | 0,125 | 0,125 | 0 | ✓ |
| rs77065 (b+c=32): kesin p | 0,86005007 | 0,86005007 | 0,86005007 | 9,5e−15 | ✓ |
| rs77065 (b+c=32): \tau alt | 0,29093982 | 0,29093982 | 0,29093982 | 7,8e−16 | ✓ |
| rs77065 (b+c=32): \tau üst | 0,65256319 | 0,65256319 | 0,65256319 | 4,4e−16 | ✓ |
| rs77065 (b+c=32): OR alt | 0,44066406 | 0,44066406 | 0,44066406 | 2,8e−16 | ✓ |
| 43 SNP toplamı: b | 13479 | 13479 | 13479 | 0 | ✓ |
| 43 SNP toplamı: c | 13990 | 13990 | 13990 | 0 | ✓ |
| 43 SNP toplamı: \chi^2 | 94,5241715 | 94,5241715 | 94,5241715 | 3,0e−16 | ✓ |
| 43 SNP toplamı: p | 13,86965883 | 13,86965883 | 13,86965883 | 2,6e−16 | ✓ |
| 43 SNP toplamı: kesin p | 14,79661668 | 14,79661668 | 14,79661668 | 1,8e−13 | ✓ |
| 43 SNP toplamı: OR | 40,95779511 | 40,95779511 | 40,95779511 | 1,7e−16 | ✓ |
| 43 SNP toplamı: düzeltilmiş p | 40,85860136 | 40,85860136 | 40,85860136 | 0 | ✓ |
| 43 SNP toplamı: düzeltilmiş kesin p | 41,06605356 | 41,06605356 | 41,06605356 | 1,1e−14 | ✓ |
rs91126: p (R sütunu: snpStats tdt.snp) |
0,30348366 | 0,30348366 | 0,30348366 | 2,8e−16 | ✓ |
rs6699: p (R sütunu: snpStats tdt.snp) |
1,807362·10−4 | 1,807362·10−4 | 1,807362·10−4 | 2,4e−19 | ✓ |
| Süreklilik düzeltmeli, %90, BH — rs6699: \chi^2 | 13,73962804 | 13,73962804 | 13,73962804 | 1,8e−15 | ✓ |
| Süreklilik düzeltmeli, %90, BH — rs6699: p | 2,099771·10−4 | 2,099771·10−4 | 2,099771·10−4 | 8,7e−17 | ✓ |
| Süreklilik düzeltmeli, %90, BH — rs6699: \tau alt | 0,39794074 | 0,39794074 | 0,39794074 | 5,7e−15 | ✓ |
| Süreklilik düzeltmeli, %90, BH — rs6699: \tau üst | 0,46087329 | 0,46087329 | 0,46087329 | 5,6e−15 | ✓ |
| Süreklilik düzeltmeli, %90, BH — rs6699: OR alt | 0,66307036 | 0,66307036 | 0,66307036 | 0 | ✓ |
| Süreklilik düzeltmeli, %90, BH — rs6699: OR üst | 0,85258385 | 0,85258385 | 0,85258385 | 1,1e−16 | ✓ |
| Süreklilik düzeltmeli, %90, BH — rs6699: düzeltilmiş p | 8,399083·10−4 | 8,399083·10−4 | 8,399083·10−4 | 4,7e−17 | ✓ |
| Süreklilik düzeltmeli, %90, BH — rs77065: \chi^2 | 0,03125 | 0,03125 | 0,03125 | 0 | ✓ |
| Süreklilik düzeltmeli, %90, BH — rs77065: p | 0,8596838 | 0,8596838 | 0,8596838 | 2,2e−16 | ✓ |
| Süreklilik düzeltmeli, %90, BH — rs77065: \tau alt | 0,31544127 | 0,31544127 | 0,31544127 | 8,9e−16 | ✓ |
| Süreklilik düzeltmeli, %90, BH — rs77065: \tau üst | 0,62660911 | 0,62660911 | 0,62660911 | 4,4e−16 | ✓ |
| Süreklilik düzeltmeli, %90, BH — rs77065: OR alt | 0,4927044 | 0,4927044 | 0,4927044 | 1,7e−16 | ✓ |
| Süreklilik düzeltmeli, %90, BH — rs77065: OR üst | 1,58014972 | 1,58014972 | 1,58014972 | 2,2e−15 | ✓ |
| Süreklilik düzeltmeli, %90, BH — rs77065: düzeltilmiş p | 1 | 1 | 1 | 0 | ✓ |
metin G/A, test aleli G: b |
44 | 44 | 44 | 0 | ✓ |
metin G/A, test aleli G: c |
22 | 22 | 22 | 0 | ✓ |
metin G/A, test aleli G: kesin p |
0,00921049 | 0,00921049 | 0,00921049 | 1,2e−16 | ✓ |
metin G/A, test aleli G: \tau alt |
0,53986134 | 0,53986134 | 0,53986134 | 6,7e−16 | ✓ |
metin G/A, test aleli G: \tau üst |
0,77796924 | 0,77796924 | 0,77796924 | 2,2e−16 | ✓ |
metin G/A, test aleli G: OR |
2 | 2 | 2 | 0 | ✓ |
metin G/A, test aleli G: düzeltilmiş kesin p |
0,01151311 | 0,01151311 | 0,01151311 | 9,9e−17 | ✓ |
| küçük veri rs77065, b+c=4: b | 1 | 1 | 1 | 0 | ✓ |
| küçük veri rs77065, b+c=4: c | 3 | 3 | 3 | 0 | ✓ |
| küçük veri rs77065, b+c=4: kesin p | 0,625 | 0,625 | 0,625 | 1,1e−16 | ✓ |
| küçük veri rs77065, b+c=4: \tau alt | 0,00630946 | 0,00630946 | 0,00630946 | 9,3e−17 | ✓ |
| küçük veri rs77065, b+c=4: \tau üst | 0,80587955 | 0,80587955 | 0,80587955 | 3,3e−16 | ✓ |
| küçük veri rs77065, b+c=4: OR | 0,33333333 | 0,33333333 | 0,33333333 | 3,3e−16 | ✓ |
| küçük veri rs77065, b+c=4: düzeltilmiş kesin p | 0,625 | 0,625 | 0,625 | 1,1e−16 | ✓ |
| Durum sütunsuz (1487 üçlü) — rs6699: b | 302 | 302 | 302 | 0 | ✓ |
| Durum sütunsuz (1487 üçlü) — rs6699: c | 405 | 405 | 405 | 0 | ✓ |
| Durum sütunsuz (1487 üçlü) — rs6699: \chi^2 | 15,00565771 | 15,00565771 | 15,00565771 | 3,6e−16 | ✓ |
| Durum sütunsuz (1487 üçlü) — rs6699: p | 1,071893·10−4 | 1,071893·10−4 | 1,071893·10−4 | 5,4e−18 | ✓ |
| Satır sırası karıştırılmış — rs6699: \chi^2 | 14,02145923 | 14,02145923 | 14,02145923 | 8,9e−16 | ✓ |
Ölçütü karşılayan: 78/78. Python: üçlüler sözlükle kurulmuş, iletimler üçlü üçlü sayılmış, kesin p ve Clopper–Pearson sınırları binom olasılıklarının doğrudan toplamından (kök bulma ile) elde edilmiştir. R: üçlüler merge ile kurulmuş, iletimler 3 × 3 × 3 genotip tablosundan sayılmış; \chi^2 mcnemar.test, sınırlar qbeta, düzeltmeler elle; iki satırda R sütunu snpStats paketinin tdt.snp fonksiyonudur.
snpStats paketinin tdt.snp fonksiyonu 43 SNP'nin 27'sinde aynı p değerini verir. Öteki 16 SNP'nin hepsinde Mendel hatası vardır ve fark hatalı üçlülerin işlenişinden gelir: şablon hatalı üçlüyü o SNP'de bütünüyle atar, snpStats bu üçlüleri sayımdan aynı biçimde çıkarmaz. Örneğin rs79960'ta (6 hata) şablon p=0{,}672, snpStats p=0{,}694 verir. Mendel hatası bulunan 36 SNP'nin 20'sinde iki tanım yine de aynı sonuca varır; hatasız 7 SNP'nin hepsinde sonuç aynıdır.
90.7 Çıktıyı okuma
Örnek ayarın konsol metni:
Not: ebeveyninden en az biri veride bulunmayan 41 etkilenmiş birey üçlü oluşturmadı (baba kimliği veride yok: 12; ana kimliği veride yok: 34; yalnız bir ebeveyn kimliği yazılı: 0 (bulunamayan kimlikler, ör.: 1, 2)).
Genotip okuma: 43 lokusta 129731 genotipin 6031 tanesi eksik sayıldı (boş hücre: 6031; eksik kodu: 0; alellerinden yalnız biri eksik kodu: 0; başka neden: 0).
İletim/dengesizlik testi: 1466 üçlü (733 aile), 43 SNP; düzeltme: holm
Not: 43 SNP'de bazı üçlüler (çocuk ya da ebeveyn genotipi eksik) o SNP'nin testine alınmadı; SNP başına en çok 306 üçlü (toplam 1466 üçlü).
Not: 1466 üçlü 733 aileden geliyor; aynı aileden birden çok etkilenmiş çocuk varsa üçlüler bağımsız değildir. TDT bağlantı testi olarak geçerlidir; bağlantı varken ilişkilendirme testi olarak yorumlanırsa p değeri olduğundan küçük çıkabilir (Martin, Kaplan ve Weir, 1997).
Uyarı: 36 SNP'de toplam 211 Mendel hatası bulundu; genotipleme ya da soy kütüğü hatası olabilir.
"TDT sonuçları" tablosundan dört satır (değerler kısaltılmış, sütunlar iki parçada):
snp      test_aleli  uclu  mendel_hatasi    b    c     chi2          p    p_kesin
rs91126  B           1358              0   62   74   1.0588  0.3034837  0.3455926
rs99786  B           1278              2  212  271   7.2070  0.0072618  0.0082462
rs6699   B           1316              4  300  399  14.0215  0.0001807  0.0002053
rs77065  B           1299              0   15   17   0.1250  0.7236736  0.8600501

snp      iletim_orani  io_alt  io_ust      OR  OR_alt  OR_ust  p_duzeltilmis  p_kesin_duzeltilmis
rs91126        0.4559  0.3703  0.5434  0.8378  0.5979  1.1741      1.0000000            1.0000000
rs99786        0.4389  0.3941  0.4845  0.7823  0.6536  0.9363      0.3049964            0.3463389
rs6699         0.4292  0.3921  0.4668  0.7519  0.6473  0.8734      0.0077717            0.0088291
rs77065        0.4688  0.2909  0.6526  0.8824  0.4407  1.7668      1.0000000            1.0000000
| Öğe | Ne yazar | Nasıl yorumlanır |
|---|---|---|
| Özet satırı | Üçlü sayısı, üçlü veren aile sayısı (aile sütunu yoksa baba + ana çiftlerinin sayısı), sınanan SNP sayısı, düzeltme | Üçlü sayısı beklenenden azsa önceki nota bakılır: üçlü kurulamayan hastaların sayısı ve nedeni (baba ya da ana kimliği veride yok, yalnız bir ebeveyn kimliği yazılı) orada yazar (90.8). |
test_aleli |
İletimi sayılan alel | b, \hat\tau ve OR bu alele göredir. |
uclu |
O SNP'de üç genotipi de dolu ve Mendel'e uygun üçlü sayısı | SNP'den SNP'ye değişir. |
mendel_hatasi |
Çıkarılan aykırı üçlü sayısı | Üçlülerin %1'ini aşıyorsa SNP'nin genotiplemesi sorgulanır. |
b, c |
İletim ve iletmeme sayıları | Toplamları bilgi veren ebeveyn sayısıdır; testin gücünü bu belirler. |
chi2, p |
(b-c)^2/(b+c) ve 1 sd p'si | Tablo başlığı hangi biçimin (düzeltmeli ya da düzeltmesiz) kullanıldığını yazar. |
p_kesin |
İki yanlı kesin binom p'si | b+c küçükken esas alınır. |
iletim_orani, io_alt, io_ust |
\hat\tau ve Clopper–Pearson aralığı | 0,5 "ilişki yok"; aralık 0,5'i içermiyorsa test seçilen düzeyde anlamlıdır. |
OR, OR_alt, OR_ust |
b/c ve Wald aralığı | <1: test aleli hasta çocuklara seyrek geçer (koruyucu yön); >1: sık geçer. |
p_duzeltilmis, p_kesin_duzeltilmis |
Seçilen yöntemle düzeltilmiş iki p | Raporlanacak değerler. |
| "Mendel hataları" | SNP, hata sayısı, en çok beş örnek aile | Aynı aile birçok SNP'de görülüyorsa sorun soy kütüğündedir (örnekte fam0174, fam1245). |
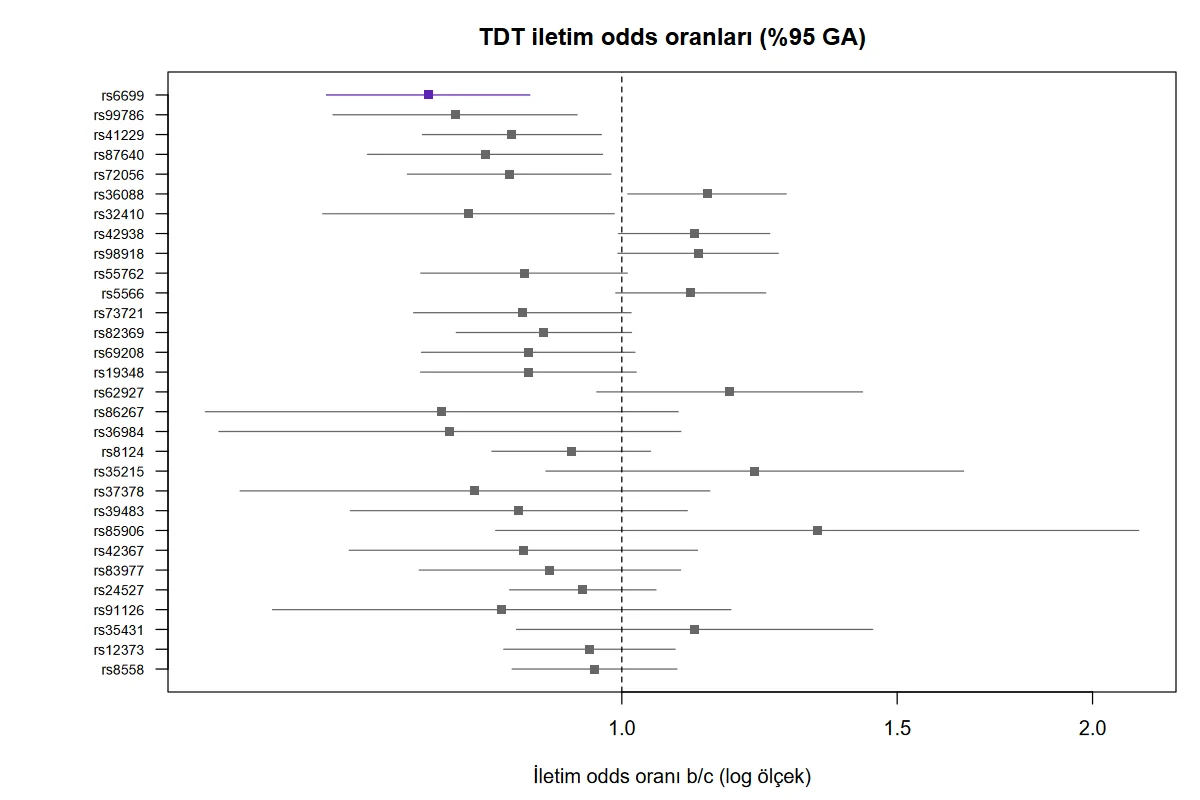
Şekil 90.1. Şablonun çizdiği iletim odds oranı grafiği (örnek veri; en küçük p'li 30 SNP, yukarıdan aşağıya artan p). Yatay çizgiler %95 Wald aralığıdır; mor, Holm düzeltmesinden sonra p<0{,}05 olan tek SNP'dir (rs6699).
Rapor cümlesi (örnek ayar):
733 ailedeki 1466 hasta çocuk–anne–baba üçlüsünde 43 SNP iletim/dengesizlik testiyle sınandı; Mendel kalıtımına aykırı üçlüler ilgili SNP'de çözümleme dışı bırakıldı (toplam 211) ve p değerleri Holm yöntemiyle düzeltildi. rs6699'un B aleli heterozigot ebeveynlerden hasta çocuklara beklenenden seyrek iletildi (b = 300, c = 399; iletim oranı 0,429, %95 GA [0,392; 0,467]; iletim odds oranı 0,75, %95 GA [0,65; 0,87]; \chi^2_1 = 14{,}02, düzeltilmiş p = 0{,}008; kesin binom düzeltilmiş p = 0{,}009). Öteki SNP'lerin hiçbiri düzeltmeden sonra anlamlı değildir (en küçük düzeltilmiş p = 0{,}305).
90.8 Sık hatalar ve tuzaklar
- Ebeveyn kimliklerinin birey kimlikleriyle birebir aynı yazılmaması. Eşleşme metin üzerindendir: birey sütununda
12, baba sütunundaB12ya da012yazıyorsa üçlü kurulmaz. Sayısal kimlikler her sütunda aynı biçimli metne çevrilir (100000hem birey hem ebeveyn sütununda"100000"); eşleşmeyen kimlik varsa "ebeveyni veride bulunmayan … birey" notu kaç hastanın hangi nedenle (baba ya da ana kimliği veride yok, yalnız bir ebeveyn kimliği yazılı) üçlü oluşturmadığını ve bulunamayan kimliklerden örnekler yazar. Özet satırındaki üçlü sayısı yine veriden beklenen sayıyla karşılaştırılır. - Kimlik ya da durum sütununu veri sekmesinde "kategorik" yapmak. Boşluklu sayısal sütun kategorik türe çevrilirse değerler
1.0,2.0biçiminde düzey adlarına dönüşür; ebeveyn kimlikleri bireylerle, durum kodu2ile eşleşmez ve çalıştırma "üçlü kurulamadı" ya da "etkilenmiş kodu bulunamadı" iletisiyle durur. Bu sütunlar sayısal türde bırakılır. - Alelleri 0 ve 1 diye adlandırmak. Metin genotipte
0eksik simgesidir;0/0eksik genotip sayılır,0/1ise iki alelin yalnız biri eksik kodu olduğundan çalıştırmayı "alellerinden yalnız biri eksik kodu ('0'; ör. '0/1')" iletisiyle durdurur. Bu kodlama önce 0/1/2 sayısal sütuna ya da harf adlarına çevrilir. - Eksik genotipi tanınmayan bir kodla yazmak. Tanınan eksik simgeleri sınırlıdır (90.2;
-9dahil). Listede olmayan bir kod (ör.NN) üçüncü alel sayılır ve lokus "3 alelli" notuyla atlanır; eksik genotip boş bırakılır ya da tanınan bir kodla yazılır. - İki hasta kardeşli ailelerde p'yi ilişkilendirme kanıtı saymak. Aynı ebeveynlerin iki hasta çocuğa iletimleri, işaretleyici hastalık lokusuna bağlıysa bağımsız değildir. Test bağlantının sınanması için geçerli kalır, ama bağlantı varken ilişkilendirme (bağlantı dengesizliği) testi olarak p değeri olduğundan küçük çıkar (Martin ve ark., 1997). Örnek veri bu yapıdadır (S2); üçlü sayısı aile sayısını aştığında çıktı bu uyarıyı kendisi yazar.
- Durum sütununu boş bırakmak. Bu durumda iki ebeveyni veride bulunan herkes hasta sayılır; sağlıklı kardeşler de üçlü oluşturur (örnekte 1466 yerine 1487 üçlü) ve test sulanır.
- Yönü
test_alelisütununa bakmadan yorumlamak. Metin kodlamada test aleli ad sırasındaki ikinci aleldir; risk aleli olmak zorunda değildir. - SNP listesine genotip olmayan bir sütun eklemek. 0, 1, 2 değerlerinden başka değer içermeyen her sayısal sütun (cinsiyet 1/2, sigara 0/1) geçerli bir SNP gibi sınanır.
- Mendel hatalarını görmezden gelmek. Hatalı üçlüler atılır, ama saptanamayan genotipleme hataları kalır ve yaygın alelin fazla iletilmiş görünmesine yol açar (Mitchell ve ark., 2003). Hata oranı yüksek SNP'lerdeki bulgu doğrulanmadan raporlanmaz.
- Anlamsız sonucu "ilişki yok" diye okumak. Güç bilgi veren ebeveyn sayısına bağlıdır; nadir alelde b+c çok küçük kalır (
rs77065: 1299 üçlüde yalnız 32 heterozigot ebeveyn).
90.9 Uzman soruları
S1. TDT bağlantıyı mı, ilişkilendirmeyi mi sınar?
İkisini birlikte. \tau\ne\tfrac12 olması için işaretleyici hastalık lokusuna bağlı olmalı ve onunla bağlantı dengesizliği içinde olmalıdır; biri yoksa \tau=\tfrac12'dir. Spielman ve ark. (1993) testi "ilişkilendirme varken bağlantının sınanması" olarak sundu; tek hasta çocuklu ailelerde aynı istatistik "bağlantı varken ilişkilendirmenin" de geçerli testidir (Ewens ve Spielman, 1995). Tabakalaşmaya karşı korunma birinci yorumdan gelir: tabakalaşma bağlantı olmadan iletimi çarpıtamaz.
S2. Aynı aileden iki hasta kardeş iki bağımsız üçlü sayılabilir mi?
Sıfır hipotezine bağlıdır. H_0 "bağlantı yok" ise bir ebeveynin iki çocuğuna iletimleri bağımsızdır ve istatistik geçerlidir. H_0 "bağlantı var ama ilişkilendirme yok" ise iki hasta kardeş hastalık lokusunu ve ona bağlı işaretleyici alelini ebeveynden birlikte alma eğilimindedir; iletimler pozitif ilişkilidir, b-c'nin varyansı b+c'den büyüktür ve \chi^2 şişer. Martin ve ark. (1997) bu durumda aileyi birim alan bir istatistik önerdi. Şablon her hasta çocuğu ayrı üçlü sayar ve aile düzeyinde düzeltme yapmaz. Örnek veride 733 aile 1466 üçlü verir; rs6699 bulgusu bağlantı kanıtı olarak okunur, ilişkilendirme kanıtı olarak kullanılacaksa aile başına tek hasta çocukla yinelenir.
S3. İletim odds oranı vaka–kontrol odds oranıyla aynı şey mi?
Aynı parametrenin iki kestirimidir, ama yalnız çarpımsal modelde. Hastalık riski alel kopyası başına sabit bir \psi çarpanıyla artıyorsa heterozigot ebeveynin test alelini hasta çocuğa verme olasılığı \psi/(1+\psi)'dir ve b/c, \psi'yi kestirir; bu, vaka_kontrol_genetik şablonunun log-eklemeli modelindeki alel başına odds oranının karşılığıdır. Baskın ya da çekinik etkide b/c tek bir genotip riskine karşılık gelmez; karışım, ebeveynlerin genotip dağılımına bağlıdır. Farkı, TDT kestiriminin tabakalaşmadan etkilenmemesidir.
S4. Mendel hatalı üçlüleri atmak sonucu yanlı kılar mı?
Hatalar genotipten bağımsız ve seyrekse hayır; yalnız güç azalır. Sorun saptanamayan hatalardadır: heterozigotun homozigot okunması çoğu zaman Mendel'e aykırı düşmez ve nadir alelin iletimini eksik, yaygın alelin iletimini fazla saydırır (Mitchell ve ark., 2003). Gordon ve ark. (2001) hata olasılığını modele katan bir test önerdi. Şablon yalnız saptanabilen hataları ayıklar; hata sayısı tablosu SNP kalitesinin göstergesi olarak okunur.
S5. Şablonun sonucu başka bir paketle neden farklı çıkabilir?
Üç tanım farkı vardır. (1) Mendel hatalı üçlü: şablon bütünüyle atar; snpStats farklı işler (örnekte 16 SNP'de p farklı). (2) Süreklilik düzeltmesi: şablonda varsayılan kapalıdır. (3) Üçlü tanımı: şablon her hasta çocuğu sayar; bazı araçlar aile başına tek üçlü alır ya da ebeveyni eksik aileleri yeniden kurulan genotiplerle kullanır. Dördüncü olası fark belirlenimci değildir, veridendir: kimlik eşleşmesi (90.8).
S6. Kesin p ile ki-kare p'si hangi büyüklükte ayrışır?
Fark, binom dağılımının kesikliliğinden gelir ve b+c ile azalır. b+c=699'da iki değer 1{,}81\times10^{-4} ve 2{,}05\times10^{-4}'tür (%14 göreli fark, karar aynı); b+c=32'de 0,724 ve 0,860; b+c=4'te 0,317 ve 0,625. Kesin p her zaman geçerlidir ama tutucudur. Çok sayıda test düzeltilirken düzeltme kesin p'ler üzerinden yapılır; şablon iki düzeltilmiş sütunu birlikte verir.
S7. Düzeltmede bütün SNP'ler tek aile sayılıyor; aynı bölgedeki ilişkili SNP'lerde bu aşırı mı?
Evet, tutucudur. Bağlantı dengesizliği içindeki SNP'lerin test istatistikleri ilişkilidir ve etkin test sayısı SNP sayısından küçüktür. Holm ve Bonferroni her bağımlılık yapısında ailece hata oranını korur ama gücü düşürür. Seçenekler: önce ld_budama_ibd (Bölüm 81) ile bağımsıza yakın bir SNP kümesi seçmek ya da BH kullanmak (pozitif bağımlılıkta geçerlidir). Şablon iletimleri karıştırarak (her heterozigot ebeveynin verdiği aleli rastgele çevirerek) deneysel eşik üretmez.
S8. Yalnız bir ebeveyni genotiplenmiş aileler neden kullanılmıyor?
Tek ebeveynle iletim sayılabilir gibi görünür, ama yanlıdır: heterozigot ebeveyn ile heterozigot çocukta hangi alelin bu ebeveynden geldiği bilinmez ve yalnız çözülebilen üçlülerin alınması iletimi sistematik olarak kaydırır (Curtis ve Sham, 1995). Geçerli çözümler eksik ebeveyn genotipinin olabilirlik içinde toplanmasını gerektirir; şablon iki ebeveyni de veride bulunan ve o SNP'de üç genotipi de dolu üçlülerle sınırlıdır.
90.10 Kaynaklar
- Benjamini, Y., & Hochberg, Y. (1995). Controlling the false discovery rate: A practical and powerful approach to multiple testing. Journal of the Royal Statistical Society: Series B, 57(1), 289–300. https://doi.org/10.1111/j.2517-6161.1995.tb02031.x
- Clayton, D. (2025). snpStats: SnpMatrix and XSnpMatrix classes and methods (R paketi, sürüm 1.60.0). Bioconductor.
- Clopper, C. J., & Pearson, E. S. (1934). The use of confidence or fiducial limits illustrated in the case of the binomial. Biometrika, 26(4), 404–413. https://doi.org/10.1093/biomet/26.4.404
- Curtis, D., & Sham, P. C. (1995). A note on the application of the transmission disequilibrium test when a parent is missing. American Journal of Human Genetics, 56(3), 811–812.
- Ewens, W. J., & Spielman, R. S. (1995). The transmission/disequilibrium test: History, subdivision, and admixture. American Journal of Human Genetics, 57(2), 455–464.
- Gordon, D., Heath, S. C., Liu, X., & Ott, J. (2001). A transmission/disequilibrium test that allows for genotyping errors in the analysis of single-nucleotide polymorphism data. American Journal of Human Genetics, 69(2), 371–380. https://doi.org/10.1086/321981
- Holm, S. (1979). A simple sequentially rejective multiple test procedure. Scandinavian Journal of Statistics, 6(2), 65–70.
- Martin, E. R., Kaplan, N. L., & Weir, B. S. (1997). Tests for linkage and association in nuclear families. American Journal of Human Genetics, 61(2), 439–448. https://doi.org/10.1086/514860
- McNemar, Q. (1947). Note on the sampling error of the difference between correlated proportions or percentages. Psychometrika, 12(2), 153–157. https://doi.org/10.1007/BF02295996
- Mitchell, A. A., Cutler, D. J., & Chakravarti, A. (2003). Undetected genotyping errors cause apparent overtransmission of common alleles in the transmission/disequilibrium test. American Journal of Human Genetics, 72(3), 598–610. https://doi.org/10.1086/368203
- Purcell, S., Neale, B., Todd-Brown, K., Thomas, L., Ferreira, M. A. R., Bender, D., Maller, J., Sklar, P., de Bakker, P. I. W., Daly, M. J., & Sham, P. C. (2007). PLINK: A tool set for whole-genome association and population-based linkage analyses. American Journal of Human Genetics, 81(3), 559–575. https://doi.org/10.1086/519795
- Sham, P. C., & Curtis, D. (1995). An extended transmission/disequilibrium test (TDT) for multi-allele marker loci. Annals of Human Genetics, 59(3), 323–336. https://doi.org/10.1111/j.1469-1809.1995.tb00751.x
- Spielman, R. S., & Ewens, W. J. (1998). A sibship test for linkage in the presence of association: The sib transmission/disequilibrium test. American Journal of Human Genetics, 62(2), 450–458. https://doi.org/10.1086/301714
- Spielman, R. S., McGinnis, R. E., & Ewens, W. J. (1993). Transmission test for linkage disequilibrium: The insulin gene region and insulin-dependent diabetes mellitus (IDDM). American Journal of Human Genetics, 52(3), 506–516.