78. Alel ve genotip frekansları, Hardy-Weinberg kesin testi (lokus × popülasyon, çoklu test düzeltmesi)
Şablon kimliği: hardy_weinberg · Kategori: genetik · Dil: R · Dosya: pro/sablonlar/genetik/hardy_weinberg.R (satır 1–188; üstbilgi 1–74) · Örnek veri: _ornek/hw_mn_tri.csv · Paketler: HardyWeinberg 1.7.9, taban R (stats, graphics)
78.1 Ne işe yarar
Şablon, diploit bireylerin genotiplerinden her lokus ve (varsa) her popülasyon için alel ve genotip frekanslarını çıkarır ve genotip sayılarının Hardy–Weinberg dengesine (HWD) uyup uymadığını sınar. Cevapladığı soru şudur: "Bu örnekte gözlediğim genotip sayıları, aleller rastgele birleşseydi beklenecek sayılardan şansın açıklayamayacağı kadar farklı mı?"
Bir lokusta k alel ve bunların popülasyondaki frekansları p_1,\dots,p_k olsun. Denge altında genotip frekansları yalnız alel frekanslarına bağlıdır:
- A_i: lokusun i. aleli; p_i: frekansı, \sum_i p_i=1.
- P(A_iA_i): iki kopyası da A_i olan (homozigot) bireylerin payı; P(A_iA_j): bir A_i, bir A_j taşıyan (heterozigot) bireylerin payı.
- 2 çarpanı: heterozigot iki yoldan oluşur (A_i anneden, A_j babadan ya da tersi).
Denge; rastgele çiftleşme, büyük popülasyon ve seçilim, göç, mutasyonun ihmal edilebilir olması koşullarında tek kuşakta kurulur. Sapma bu koşullardan birinin bozulduğunu ya da verinin kusurlu olduğunu gösterir: akrabalar arası çiftleşme, birbirinden farklı alt popülasyonların tek örnekte karışması (Wahlund etkisi), seçilim, okunamayan (boş) alel, genotipleme hatası.
Şablon her lokus × popülasyon için şunları verir: alel sayıları ve frekansları; gözlenen (H_o) ve beklenen (H_e) heterozigotluk; Wright'ın sabitleme indeksi F=1-H_o/H_e; gözlenen ve beklenen genotip sayıları; Pearson \chi^2 testi; kesin test p değeri (iki alelli lokusta Haldane–Wigginton, çok alelli lokusta tam sayım ya da Monte Carlo); bütün kesin p değerleri üzerinde çoklu test düzeltmesi.
Ne zaman kullanılır? Eş baskın (kodominant) işaretleyicilerle (SNP, mikrosatellit, allozim) yapılan her popülasyon genetiği çalışmasının ilk adımında; ilişkilendirme çalışmalarında kontrol grubunun kalite denetiminde; boş alel ya da okuma hatası şüphesinde.
Ne zaman kullanılmaz?
- Popülasyonlar arası farklılaşma (F_{ST}, F_{IS}, F_{IT}) ve güven aralıkları isteniyorsa:
f_istatistikleri(Bölüm 71). - Örneklem büyüklüğüne göre düzeltilmiş çeşitlilik ölçüleri, alel zenginliği ve özel aleller isteniyorsa:
genetik_cesitlilik(Bölüm 73). Bu şablondaki H_e düzeltmesizdir (78.4.2). - İki lokus arasındaki bağımlılık (bağlantı dengesizliği) sorulacaksa:
bag_dengesizligi(Bölüm 65). - Vaka ve kontrol genotip dağılımları karşılaştırılacaksa:
vaka_kontrol_genetik(Bölüm 93); bu şablon öncesinde yalnız kontrol grubunun kalite denetimi için kullanılır. - Baskın işaretleyici (AFLP, RAPD), poliploit ya da haploit veri, X kromozomu: şablon bunları çözümlemez (78.8).
Temel programla ilişki. Temel programda Hardy–Weinberg testi ve genotip ayrıştırması yoktur. Genotip sayıları elle sayılıp bir uyum iyiliği \chi^2'si kurulsa bile serbestlik derecesi kestirilen alel frekansları için düzeltilmez ve kesin test elde edilmez. Bu şablon genotip sütunlarını doğrudan okur ve küçük beklenen sayılarda geçerli olan kesin testi verir.
78.2 Şablonun girdileri
Form, üstbilgideki dokuz [[param]] bloğundan kurulur (hardy_weinberg.R:10–73).
| Alan (form etiketi) · ad | Tür · sekme | Varsayılan | Geçerli değerler | Kodda etkisi |
|---|---|---|---|---|
Lokus sütunları · lokuslar |
sütunlar · Değişkenler | yok (en az 1 sütun) | herhangi sütun; metin a1/a2 ya da sayısal 0/1/2 |
Her sütun ayrı lokus (83, 113, 117). |
Popülasyon · populasyon |
kategorik sütun · Değişkenler | boş | herhangi sütun ya da boş | Testler her popülasyonda ayrı; boşsa tek popülasyon "Tümü"; adların baş ve son boşluğu kırpılır (84–90, 119). |
Alel ayırıcısı · ayirici |
metin · Değişkenler | / |
boş olmayan metin | Metin genotipi iki alele böler (86, 113; ortak ayrıştırıcı, Bölüm 1.5). |
Eksik genotip kodları · eksik_kodlar |
metin · Değişkenler | boş | virgülle ayrılmış kodlar | Boşsa varsayılan liste (boş hücre, NA, 0, 00, 000, ?, -, ., -9) eksik sayılır; doluysa alandaki kodlar bu listenin yerine geçer (boş hücre ve NA her zaman eksik); baş ve son boşluk kırpılır, boş kodlar atılır (satır 79–80; Bölüm 1.5). |
Çoklu test düzeltmesi · duzeltme |
seçim · Seçenekler | holm |
holm, BH, bonferroni, hochberg, hommel, BY, none |
p.adjust(method =) (165–166). |
Çok alelli lokusta kesin test · kesin_yontem |
seçim · Model | otomatik |
otomatik, mc |
otomatik: 3–4 alelde, sayılacak tablo sayısı sınırın altındaysa ağ algoritması; aksi hâlde ya da mc: Monte Carlo (109–111, 148–159). |
Monte Carlo tekrar sayısı · B |
tamsayı · Seçenekler | 999 | 99–20000 | Karıştırma sayısı (91, 103). |
İki alelli kesin test p türü · p_turu |
seçim · Model | selome |
selome, dost, midp |
HWExact(pvaluetype =); tür yöntem sütununa yazılır (92–93, 112, 145, 147). |
Anlamlılık düzeyi · alfa |
ondalık · Çıktı | 0,05 | 0,0001–0,5 | Yalnız grafikte renk ve eşik çizgisi (94–95, 182–184). |
Örnek ayar (ornek_param, satır 9): lokuslar = ["MN", "TRI"]; öteki alanlar varsayılandadır.
Şablonun kendi denetimleri. Biçimsel denetimden (Bölüm 1.2) sonra kod şunları durdurur:
| Koşul | İleti (özet) | Satır |
|---|---|---|
| Veri açık değil | "Önce Veri sekmesinde bir veri açın." | 82 |
| Popülasyon sütunu lokus olarak da seçilmiş | "Popülasyon sütunu lokus olarak da seçilemez." | 85 |
| p türü üç değerden biri değil | "Geçersiz p değeri türü." | 93 |
alfa sonlu değil ya da (0{,}1) dışında |
"Anlamlılık düzeyi 0 ile 1 arasında olmalı." | 95 |
| Lokusun bütün değerleri eksik | "'…' lokusunda hiç genotip yok" | 113 |
| Sayısal lokusta 0/1/2 dışında değer | "sayısal genotip yalnız 0/1/2 … olabilir" | 113 |
| Ayırıcı boş | "Alel ayırıcısı boş olamaz." | 113 |
Metin genotipte ayırıcı yok (ör. A) |
"ayırıcı ('/') içermeyen genotip var … haploit veri … çözümlenemez" | 113 |
Metin genotipte ikiden çok parça (ör. A/B/C) |
"ikiden çok alelli genotip var … yalnız diploit veri" | 113 |
Alellerinden yalnız biri eksik kodu olan genotip (ör. 0/1) |
"'…' lokusunda … genotipte alellerden yalnız biri eksik kodu ('0'; ör. '0/1'). '0' verinizde gerçek bir alelin adıysa … yeniden kodlayın …" | 113 |
| Hiçbir lokus × popülasyon satırı oluşmadı | "Çözümlenecek genotip bulunamadı." | 164 |
Genotip okuma denetimlerini (satır 113'da çağrılan altı satır) genetik şablonlarının ortak ayrıştırıcısı yapar; iletiler ve kural Bölüm 1.5'tedir.
Eksik değer kuralı. Genotipler ortak ayrıştırıcıyla okunur (satır 79–80, 113; Bölüm 1.5). Eksik genotip boş hücredir ya da NA, na, 0, 00, 000, ?, -, ., -9 kodlarından biridir. Ayırıcılı yazımda iki alelin ikisi de eksik kodu olmalıdır (0/0, -9/-9). Alellerinden yalnız biri eksik kodu olan genotip (0/1, 0/143) çalıştırmayı durdurur: 0 verideki gerçek bir alelin adıysa alel başka bir adla yeniden kodlanır (78.8). Eksik genotip kodları alanı doluysa (virgülle ayrılmış, ör. .) alandaki kodlar bu listenin yerine eksik sayılır; boş hücre ve NA her zaman eksiktir ve yarı eksik durma kuralı yeni listeye göre işler: VCF tarzı 0/1 kodlu veride alana yalnız . yazılırsa 0 gerçek alel olur (satır 79–80). Eksik genotipli birey yalnız o lokusta atılır; öteki lokuslarda kalır. Popülasyonu boş olan bireyler bütün lokuslardan çıkarılır ve sayıları not olarak yazılır (88–90).
Alan örneği. Ek veride vcf sütunu 0/0 (36), 0/1 (28), 1/0 (25), 1/1 (26) genotiplerinden oluşur (n=115). Alan boşken çalıştırma 0/1 genotipleri yüzünden, alanın adını da söyleyen iletiyle durur. Alana yalnız . yazılırsa 0 ve 1 gerçek alel olur: n=115, kesin p=0{,}4551, F=0{,}0712; sonuç, aynı verinin A/B adlarıyla çalıştırılmasıyla aynıdır.
Notlar ve uyarılar (durdurmaz). Bütün lokuslar okunduktan sonra, eksik sayılan genotip varsa, okuma dökümü yazılır (satır 114): "Genotip okuma: … lokusta … genotipin … tanesi eksik sayıldı (boş hücre: …; eksik kodu: …; …)". "Otomatik" seçenekte ağ algoritması yerine Monte Carlo kullanılan üç ve dört alelli testler adlarıyla bildirilir (169–171; 78.4.5). Tek alelli lokus × popülasyon için "HWD testi yapılamaz" (175–176); genotipli birey sayısı 10'dan az olan testler için "gücü çok düşüktür" (177–178).
78.3 Örnek veri
Dosya: _ornek/hw_mn_tri.csv; 1000 satır, 3 sütun. İki lokusun ikisi de HardyWeinberg paketinin belgesindeki örneklerdir (Graffelman, 2015): MN kan grubu sayıları Hedrick'in (2005) Tablo 2.4'ünden, üç alelli lokus paketin üç alelli kesin test örneğinden gelir.
| Değişken | Rol | Tür (veri sekmesi) | Özet |
|---|---|---|---|
birey |
kullanılmaz | metin | B0001–B1000. |
MN |
Lokus | kategorik (3 düzey) | M/M 298, M/N 489, N/N 213; eksik yok (n=1000). |
TRI |
Lokus | kategorik (5 düzey) | A/A 20, A/B 31, A/C 26, B/B 15, B/C 12, C/C 0; ilk 104 satır dolu, 896 satır boş (n=104); boş hücreler okuma dökümünde sayılır (78.7). |
Arayüzdeki düzey sırası (ilk görülme) bu şablonda sonucu etkilemez: kod genotip metnini alellerine ayırır ve alelleri adlarına göre kendisi sıralar (alel_sirala, satır 107–108, 124). Bir lokusun bütün alel adları sayıysa sıra sayısaldır: mikrosatellit boyları "98, 100, 102" sırasıyla listelenir ve genotip etiketi küçük boydan büyüğe yazılır (98/100). Adlardan biri sayı değilse sıra alfabetiktir. Sıra yalnız tabloların satır sırasını ve genotip etiketini belirler, hiçbir sayıyı değiştirmez.
Bu bölümde kullanılan çalıştırmalar: (1) örnek ayar; (2) MN, p türü DOST; (3) MN, p türü orta-p; (4) TRI, "Her zaman Monte Carlo", B=999, tohum 2026; (5) ek sınama verisi dogrulama/hardy_weinberg/hw_cok.csv (üç popülasyon: Kuzey 60, Guney 45, Ada 8 birey; 0/1/2 kodlu snp1, altı alelli mikrosatellit ms1, dört alelli L4, tek alelli sabit; düzeltme BH, B=999, tohum 11); (6) aynı dosyanın alelleri 0, 1, 2 diye adlandırılmış vcf ve vcf3 sütunları.
78.4 Yöntem: formüller ve hesap adımları
Hesap sırası, her lokus ve o lokus içinde her popülasyon için: (1) genotipleri iki alele ayır, eksikleri at; (2) alel sayılarını ve frekanslarını bul; (3) H_o, H_e, F; (4) bütün olası genotipler için gözlenen ve beklenen sayılar, Pearson \chi^2; (5) alel sayısına göre kesin test; son olarak (6) bütün kesin p değerlerini birlikte düzelt.
78.4.1 Genotiplerin okunması ve alel frekansları
Metin genotip ayırıcıdan bölünür; sayısal sütunda 0, 1, 2 değerleri "B alelinin kopya sayısı" olarak A/A, A/B, B/B genotiplerine çevrilir (ortak ayrıştırıcı, satır 113; Bölüm 1.5). n genotipli bireyde A_i alelinin sayısı ve frekansı:
- n_{ii}: A_iA_i homozigotlarının, n_{ij}: A_iA_j heterozigotlarının sayısı (sıra gözetilmez:
M/NileN/Maynıdır). - a_i: örnekteki A_i kopyalarının sayısı; 2n: toplam alel kopyası (her birey iki kopya taşır).
- n: o lokusta genotipi eksik olmayan, o popülasyondaki birey sayısı; lokustan lokusa değişebilir.
78.4.2 Heterozigotluk ve sabitleme indeksi
- H_o: heterozigot bireylerin gözlenen oranı.
- H_e: denge altında beklenen heterozigot oranı; rastgele seçilen iki alel kopyasının farklı olma olasılığı (Nei'nin gen çeşitliliği).
- F: heterozigotların beklenene göre göreli eksikliği. F>0 eksiklik, F<0 fazlalık, F=0 tam uyum. Tek popülasyonda F_{IS}'nin kestirimidir.
Neden H_e burada 2n/(2n-1) ile düzeltilmiyor?
1-\sum\hat p_i^2 popülasyon değerini biraz küçük kestirir; yansız kestirici \frac{2n}{2n-1}\big(1-\sum\hat p_i^2\big)'dir (Nei, 1978). Şablon düzeltmesiz biçimi kullanır (satır 127), çünkü \chi^2 testinin beklenen sayıları da aynı \hat p_i'lerden kurulur ve n\,H_e beklenen heterozigot sayılarının toplamına eşit kalır. n=1000'de fark 2{,}5\times10^{-4}'tür; n=8'de H_e düzeltmeyle %6,7 büyür. Popülasyonların çeşitliliği karşılaştırılacaksa düzeltmeli değer genetik_cesitlilik şablonundan alınır.
78.4.3 Beklenen genotip sayıları ve Pearson ki-kare
- Toplam, gözlenmemiş olanlar dahil bütün k(k+1)/2 olası genotip üzerinden alınır (satır 136–141);
C/Chiç gözlenmese de E_{CC} toplamda yer alır. - sd: genotip sınıfı sayısı k(k+1)/2, eksi bir (toplam sabit), eksi kestirilen bağımsız alel frekansı sayısı k-1; sonuç k(k-1)/2.
- p_{\chi^2}=P(\chi^2_{\text{sd}}>\chi^2); süreklilik düzeltmesi uygulanmaz.
Ki-kare yaklaşımı küçük beklenen sayıda güvenilmez
\chi^2 dağılımı büyük örneklem yaklaşığıdır. Nadir alelin homozigotunda beklenen sayı çoğu zaman 5'in, hatta 1'in altındadır (örnek veride E_{CC}=3{,}47) ve tek bir gözlem istatistiği büyütür. Şablon \chi^2'yi bilgi için verir; karar ve çoklu test düzeltmesi kesin test p'si üzerinden yapılır (satır 166). \chi^2 p'leri düzeltilmez.
78.4.4 İki alelli lokusta kesin test
Alel sayıları (a_A, a_B) veri olarak alındığında, denge altında heterozigot sayısının dağılımı bilinmeyen hiçbir parametre içermez (Levene, 1949; Haldane, 1954):
- n_{AB} yalnız a_A ile aynı tek/çiftlikteki değerleri alır: a_A \bmod 2,\ \dots,\ \min(a_A,a_B), ikişer artarak.
- Pay ve payda: 2n alel kopyasının n bireye rastgele dağıtılmasında bu genotip sayılarını veren düzenlemelerin oranı.
- Koşullama alel sayıları üzerinedir; p_A'nın gerçek değeri sadeleşir. Test bu yüzden "kesin"dir: örneklem büyüklüğü ne olursa olsun yaklaşıklık içermez.
Gözlenen heterozigot sayısına h_0, olasılığına P_0=P(h_0) densin. Şablonun sunduğu üç iki yönlü p değeri:
- SELOME ("sum of equally likely or more extreme"): olasılığı gözlenenden büyük olmayan bütün sonuçların toplamı; Wigginton ve ark.'nın (2005) tanımı.
- Orta-p: gözlenen sonucun olasılığının yalnız yarısını sayar; kesikli dağılımdan gelen tutuculuğu azaltır (Graffelman ve Moreno, 2013).
- DOST ("double one-sided tail"): küçük olan tek yönlü kuyruğun iki katı.
Koddaki tercih
İki alelli lokusta hesap HardyWeinberg::HWExact(x, pvaluetype = p_turu) çağrısıdır (satır 144–146); x genotip sayılarının AA, AB, BB adlı vektörüdür. Fonksiyon dağılımı beklenen heterozigot sayısından başlayıp iki yöne doğru özyinelemeyle kurar, sonra toplamı 1'e ölçekler (Wigginton algoritması). p_kesin sütunu seçilen türü taşır; p_orta sütunu seçimden bağımsız olarak ikinci bir HWExact(…, "midp") çağrısıyla her zaman doldurulur. Seçilen tür yontem sütununa yazılır (satır 112, 147): "kesin (Haldane–Wigginton; SELOME)", "…; DOST)" ya da "…; orta-p)". \min(a_A,a_B)<2 ise (nadir alel tek kopya) fonksiyon p=1 döndürür: tek olası tablo vardır.
Neden varsayılan SELOME?
Üç tanım aynı dağılımı farklı toplar. SELOME alan yazınının ölçütüdür ve yayımlanmış p değerleriyle karşılaştırılabilir; ancak tutucudur (gerçek I. tip hata nominal düzeyin altında kalır). Orta-p nominal düzeye daha yakındır ama kesin anlamda düzeyi garanti etmez. DOST, dağılım çarpık olduğunda (düşük küçük alel frekansı) SELOME'den ayrışır. Şablon varsayılanı yazınla uyumlu tutar ve orta-p'yi yan sütunda verir.
78.4.5 Çok alelli lokusta tam kesin test
k>2 alelde aynı koşullu olasılık bütün genotip tablosu için yazılır:
- \{n_{ij}\}: k(k+1)/2 genotip sayısından oluşan tablo; h: toplam heterozigot sayısı.
- p değeri, alel sayıları gözlenenle aynı olan bütün tablolar içinde olasılığı gözlenen tablonunkinden büyük olmayanların toplamıdır (SELOME'nin çok alelli karşılığı).
- Tablo sayısı n ve k ile çok hızlı büyür: örnek verinin üç alelli lokusunda 12246, ek verideki dört alelli lokusta n=60 için 355720 tablo vardır.
Koddaki tercih
"Otomatik" seçili, alel sayısı 3 ya da 4 ve sayılacak tablo sayısı sınırın altındaysa şablon HardyWeinberg::HWNetwork(ma = 0, fe = tri) çağırır (satır 148–154). Fonksiyon erkek ve dişi sayılarını birlikte alan genel bir ağ algoritmasıdır (Aoki, 2003; Engels, 2009); şablon bütün bireyleri "dişi" genotip matrisine (fe, alt üçgen) koyar ve erkek alel sayılarını sıfır verir, böylece otozomal test elde edilir. Bu dalda p_turu etkisizdir ve p_orta boş kalır.
Ağ algoritmasının sınırı. Ağ algoritmasının süresi sayılacak tablo sayısıyla, o da birey sayısıyla dik artar. Şablon tablo sayısı için kaba bir ölçü hesaplar (ag_uygun, satır 109–111): en sık alel dışındaki alellerin sayılarının birer fazlasının çarpımı.
- a_i: A_i alelinin örnekteki kopya sayısı; i^{*}: en sık alel (çarpıma girmez).
- Sınırlar tek testte yaklaşık yarım dakikalık süreye karşılık gelir. Örnek verinin TRI lokusunda T=(73+1)(38+1)=2886; ek verinin dört alelli
L4lokusunda, Kuzey popülasyonunda T=40\cdot18\cdot15=10800'dür. - Ölçülen süreler: üç alelde n=1000 için 0,9 saniye, n=2000 için 8–12 saniye; dört alelde (frekanslar 0,4; 0,3; 0,2; 0,1) n=100 için 0,3 saniye, n=150 için 2 saniye, n=200 için 14 saniye. Sınır, bu frekanslarda dört alelde yaklaşık 200, eşit frekanslı üç alelde yaklaşık 2000 bireye denk gelir; alellerden biri çok sıksa sınır daha büyük örneklemde aşılır.
T sınırı aşarsa o test için Monte Carlo kesin test (78.4.6) çalışır (satır 155–158). yontem sütununda "Monte Carlo kesin (B = …)" yazar ve çıktıya şu not eklenir (169–171): "Not: … testte sayılacak genotip tablosu sayısı ağ algoritması için çok büyük; bu testlerde Monte Carlo kesin test (B = …) kullanıldı: …". Not, testleri lokus (ve varsa popülasyon) adıyla sayar. Bu testlerde p bir Monte Carlo kestirimidir; çözünürlüğü formdaki B ile belirlenir.
78.4.6 Monte Carlo kesin test
Beş ve daha çok alelde, "Her zaman Monte Carlo" seçildiğinde ya da "Otomatik" seçenekte tablo sayısı ağ algoritmasının sınırını aştığında (78.4.5) tabloların hepsi sayılmaz; dağılımdan rastgele tablolar çekilir (Guo ve Thompson, 1992):
- P^{(b)}: b. karıştırmada oluşan tablonun olasılığı. Karıştırma: 2n alel kopyası tek havuza konur, rastgele sıralanır; ilk n kopya bireylerin birinci, son n kopya ikinci aleli olur (satır 101–103). Bu, alel sayılarını sabit tutarak H_0 altındaki dağılımdan tam bağımsız çekimdir.
- \log P'nin tablodan tabloya değişmeyen terimleri (n!, a_i!, (2n)!) atılır (satır 97–99); karşılaştırma için gerekmezler.
- 10^{-9}: aynı olasılıklı tabloların kayan nokta yuvarlamasıyla farklı sayılmasını önleyen pay.
- Pay ve paydadaki +1: gözlenen tablo da H_0 altında bir çekim sayılır; p hiçbir zaman sıfır olmaz ve test geçerli kalır (Phipson ve Smyth, 2010).
Monte Carlo p'sinin çözünürlüğü 1/(B+1)'dir
B=999 ile alınabilecek en küçük değer 0,001, standart hata p=0{,}05 çevresinde \sqrt{0{,}05\cdot0{,}95/999}=0{,}0069'dur. Çok sayıda test düzeltilecekse en küçük p düzeltmeden sonra eşiğin altına inemeyebilir: 60 testte Holm'un ilk çarpanı 60'tır ve 60\times0{,}001=0{,}06. Böyle durumlarda B 9999 ya da 19999 yapılır.
Tohum. Karıştırmalar R'nin rastgele sayı üretecini kullanır. Kod panelindeki Tohum alanı boşsa arayüz her çalıştırmaya yeni bir tohum atar; kullanılan tohum künyeye ve betik adımına yazılır (Bölüm 1.3). Aynı tohum girildiğinde ya da betik yeniden oynatıldığında aynı tohum kullanılır ve Monte Carlo p'si aynen yinelenir (Bölüm 57). Yeni bir çalıştırmada p standart hatası kadar oynar.
78.4.7 Çoklu test düzeltmesi
Bütün lokus × popülasyon kesin p değerleri tek aile sayılır; m bunların (boş olmayanların) sayısıdır.
- p_{(1)}\le\dots\le p_{(m)}: küçükten büyüğe sıralı kesin p değerleri.
- Holm ailece hata oranını (en az bir yanlış ret olasılığı) denetler; BH yanlış keşif oranını (retler içindeki yanlışların beklenen payı) denetler.
- Tek alelli ve genotipsiz satırların p'si boştur;
p.adjustbunları m'ye saymaz.
Neden varsayılan Holm?
HWD testi çoğu zaman bir kalite süzgecidir: az sayıda lokus (10–20 mikrosatellit) sınanır ve tek bir yanlış "sapma" kararı bir lokusun atılmasına yol açar. Bu ölçekte ailece hata oranı uygun ölçüttür ve Holm, Bonferroni'den her zaman en az onun kadar güçlüdür. Binlerce SNP'nin taranmasında BH tercih edilir.
78.5 Kod adım adım
| Satırlar | Ne yapar | Neden / dikkat |
|---|---|---|
| 1–74 | Üstbilgi: kimlik, açıklama, örnek veri ve ayar, sekiz parametre. | Form buradan kurulur (Bölüm 1.2). |
| 75–80 | .m() dil seçici; ortak genotip ayrıştırıcısına bağlama (.gn_eksik, .gn_genotip). |
Ayrıştırıcının gövdesi şablonda değildir. Ayrıştırıcı n\times2 karakter matrisi döndürür, eksikte iki hücre de NA; sayısal sütun 0/1/2 → A/B. Okuma kuralı ve iletiler Bölüm 1.5'tedir. |
| 82–95 | Girdiler: lokus listesi, popülasyon vektörü, B, p türü, alfa; denetimler. |
Popülasyon yoksa herkes "Tümü"; popülasyon adları kırpılır (87). |
| 97–105 | lpr() log-olasılık çekirdeği; mc_kesin() Monte Carlo testi. |
sample(havuz) tek çağrıyla 2n kopyayı karıştırır (103). |
| 107–114 | alel_sirala(); ag_uygun(); p türünün adı; bütün lokusların okunması (GL, 106); okuma dökümü (mq_genotip_notu(), 107). |
Lokusların hepsi döngüden önce okunur: biçim hatası ya da yarı eksik genotip, hiçbir test yapılmadan çalıştırmayı durdurur. |
| 115–134 | Lokus ve popülasyon döngüsü; eksikleri at; alel tablosu, frekanslar, H_o, H_e; tek alelli satır. | Popülasyonlar sort(unique()) ile ad sırasında işlenir (119). Aleller alel_sirala sırasındadır (124); genotipin iki aleli bu sıraya göre dizilir (128–129). |
| 135–142 | Bütün olası genotipler (upper.tri sırası), gözlenen ve beklenen sayı, \chi^2, sd, p. |
Genotip sırası: A/A, A/B, B/B, A/C, B/C, C/C (sütun sütun üst üçgen). |
| 143–161 | Kesin test dalı: k=2 HWExact; otomatik, k\le4 ve ag_uygun doğruysa HWNetwork; aksi hâlde mc_kesin; satır testler tablosuna eklenir. |
yontem sütunu hangi dalın çalıştığını ve iki alelde p türünü yazar. Sınırı aşan 3–4 alelli testler ag_buyuk listesine eklenir (158). |
| 164–178 | p.adjust; özet satırı; ağ algoritması notu (169–171); üç tablo; tek alelli ve küçük örneklem uyarıları. |
Düzeltme yalnız p_kesin üzerinde. |
| 179–187 | -\log_{10}p çubuk grafiği; mq_sekil. |
Renk düzeltilmiş p'ye, kesikli çizgi ham p ölçeğinde alfa'ya göre. |
Döngünün iç içe sırası (önce lokus, sonra popülasyon) Monte Carlo sonuçlarını belirler: rastgele sayı akışı tek olduğundan, lokus listesinin sırası değişirse aynı tohumla aynı lokus farklı karıştırmalar görür.
78.6 Elle hesap: örnek veride bağımsız yeniden hesap
Ara değerler dogrulama/hardy_weinberg/elle_hesap.py ile, HardyWeinberg paketi kullanılmadan hesaplanmıştır: dağılımlar log-gama fonksiyonuyla doğrudan kurulmuş, çok alelli tablolar özyinelemeyle tek tek sayılmıştır. R tarafında (r_dogrulama.R) aynı büyüklükler açık formülle, tablo sayımıyla ve genetics paketinin HWE.exact fonksiyonuyla yeniden elde edilmiştir.
Adım 1 — MN: alel frekansları. n=1000; n_{MM}=298, n_{MN}=489, n_{NN}=213.
Adım 2 — MN: heterozigotluk.
Adım 3 — MN: beklenen sayılar ve ki-kare.
| Genotip | Gözlenen | Beklenen | Katkı |
|---|---|---|---|
| M/M | 298 | 1000\cdot0{,}5425^2=294{,}30625 | 0,04636 |
| M/N | 489 | 2000\cdot0{,}5425\cdot0{,}4575=496{,}38750 | 0,10995 |
| N/N | 213 | 1000\cdot0{,}4575^2=209{,}30625 | 0,06518 |
\chi^2=0{,}2214896, sd =1, p=0{,}6379073.
Adım 4 — MN: kesin test. a_M=1085 tek olduğundan heterozigot sayısı 1{,}3,\dots,915 değerlerini alır: 458 olası tablo. Gözlenen tablonun olasılığı P_0=P(489)=0{,}0451339. Olasılığı bundan büyük olmayan tabloların toplamı:
Tek yönlü kuyruklar P(h\le489)=0{,}3361678 ve P(h\ge489)=0{,}7089661; p_{\text{DOST}}=2\cdot0{,}3361678=0{,}6723356. Üç değer birbirine yakındır çünkü n büyük, dağılım neredeyse simetriktir.
Adım 5 — TRI: frekanslar ve ki-kare. n=104; a_A=2\cdot20+31+26=97, a_B=2\cdot15+31+12=73, a_C=26+12=38; \hat p=(0{,}46635;\ 0{,}35096;\ 0{,}18269). H_o=69/104=0{,}6634615, H_e=0{,}6259708, F=-0{,}0598922.
| Genotip | Gözlenen | Beklenen | Katkı |
|---|---|---|---|
| A/A | 20 | 22,61779 | 0,30298 |
| A/B | 31 | 34,04327 | 0,27205 |
| B/B | 15 | 12,81010 | 0,37437 |
| A/C | 26 | 17,72115 | 3,86766 |
| B/C | 12 | 13,33654 | 0,13394 |
| C/C | 0 | 3,47115 | 3,47115 |
\chi^2=8{,}4221520, sd =3\cdot2/2=3, p=0{,}0380471. İstatistiğin %87'si iki hücreden gelir: A/C fazlalığı ve C/C yokluğu.
Adım 6 — TRI: tam kesin test. Alel sayıları (97{,}73{,}38) olan 12246 tablo vardır; olasılıklarının toplamı 1'dir (hesapta 1+2{,}4\times10^{-13}). Gözlenen tablonun olasılığı P_0=1{,}12209\times10^{-4}; olasılığı bundan büyük olmayan tabloların toplamı p=0{,}0337069.
Adım 7 — Holm düzeltmesi. m=2; sıralı p'ler 0{,}0337069 (TRI) ve 0{,}6556635 (MN):
Adım 8 — TRI: Monte Carlo. Tohum 2026 ile B=999 karıştırmanın 40'ında tablonun olasılığı gözlenenden büyük değildir: p_{\text{MC}}=(40+1)/1000=0{,}041. Tam değerden (0{,}0337) farkı 0{,}0073, Monte Carlo standart hatası \sqrt{0{,}0337\cdot0{,}9663/999}=0{,}0057'dir. Python tarafında R'nin rastgele sayı üreteci yeniden kurulmuş, aynı 999 karıştırma üretilmiş ve aynı sayım (40) bulunmuştur.
78.6.1 Doğrulama: MerQuR+, Python ve R
MerQuR+ sütunu şablonun "Hardy–Weinberg testleri" ve "Alel frekansları" tablolarından tam hassasiyetle alınmıştır (çalıştırmalar 1–5). Python ve R sütunlarında şablonun çağırdığı HWExact ve HWNetwork kullanılmamıştır.
| Büyüklük | MerQuR+ | Python (bağımsız) | R (bağımsız) | En büyük fark | |
|---|---|---|---|---|---|
| MN: p_M | 0,5425 | 0,5425 | 0,5425 | 0 | ✓ |
| MN: H_o | 0,489 | 0,489 | 0,489 | 0 | ✓ |
| TRI: H_o | 0,66346154 | 0,66346154 | 0,66346154 | 4,4e−16 | ✓ |
| MN: H_e | 0,4963875 | 0,4963875 | 0,4963875 | 0 | ✓ |
| TRI: H_e | 0,62597078 | 0,62597078 | 0,62597078 | 3,3e−16 | ✓ |
| MN: F | 0,01488253 | 0,01488253 | 0,01488253 | 1,7e−18 | ✓ |
| TRI: F | −0,05989218 | −0,05989218 | −0,05989218 | 4,9e−17 | ✓ |
| MN: \chi^2 | 0,22148959 | 0,22148959 | 0,22148959 | 2,0e−15 | ✓ |
| TRI: \chi^2 | 8,42215198 | 8,42215198 | 8,42215198 | 2,1e−16 | ✓ |
| MN: p_{\chi^2} | 0,63790726 | 0,63790726 | 0,63790726 | 1,0e−15 | ✓ |
| TRI: p_{\chi^2} | 0,0380471 | 0,0380471 | 0,0380471 | 3,5e−17 | ✓ |
| MN: kesin p (SELOME) | 0,65566349 | 0,65566349 | 0,65566349 | 1,1e−12 | ✓ |
| MN: orta-p | 0,63309653 | 0,63309653 | 0,63309653 | 1,1e−12 | ✓ |
| MN: kesin p (DOST) | 0,67233562 | 0,67233562 | 0,67233562 | 1,3e−12 | ✓ |
| MN: kesin p (orta-p seçimi) | 0,63309653 | 0,63309653 | 0,63309653 | 1,1e−12 | ✓ |
| TRI: kesin p (ağ algoritması) | 0,03370688 | 0,03370688 | 0,03370688 | 8,5e−15 | ✓ |
| MN: Holm p | 0,65566349 | 0,65566349 | 0,65566349 | 1,1e−12 | ✓ |
| TRI: Holm p | 0,06741376 | 0,06741376 | 0,06741376 | 1,7e−14 | ✓ |
| TRI: Monte Carlo p (B=999, tohum 2026) | 0,041 | 0,041 | 0,041 | 0 | ✓ |
| snp1, Ada (n=7, k=2): \chi^2 | 0,63 | 0,63 | 0,63 | 1,1e−16 | ✓ |
| snp1, Ada (n=7, k=2): kesin p | 0,44055944 | 0,44055944 | 0,44055944 | 1,3e−15 | ✓ |
| snp1, Ada (n=7, k=2): BH p | 0,83731727 | 0,83731727 | 0,83731727 | 1,9e−13 | ✓ |
| snp1, Guney (n=44, k=2): \chi^2 | 0,12718233 | 0,12718233 | 0,12718233 | 3,1e−16 | ✓ |
| snp1, Guney (n=44, k=2): kesin p | 0,74483261 | 0,74483261 | 0,74483261 | 1,5e−14 | ✓ |
| snp1, Guney (n=44, k=2): BH p | 0,83793669 | 0,83793669 | 0,83793669 | 1,7e−14 | ✓ |
| snp1, Kuzey (n=59, k=2): \chi^2 | 2,7292442 | 2,7292442 | 2,7292442 | 1,6e−16 | ✓ |
| snp1, Kuzey (n=59, k=2): kesin p | 0,14747229 | 0,14747229 | 0,14747229 | 1,1e−14 | ✓ |
| snp1, Kuzey (n=59, k=2): BH p | 0,63543124 | 0,63543124 | 0,63543124 | 1,0e−15 | ✓ |
| ms1, Ada (n=8, k=4): \chi^2 | 6,64399093 | 6,64399093 | 6,64399093 | 6,7e−16 | ✓ |
| ms1, Ada (n=8, k=4): kesin p | 0,21181041 | 0,21181041 | 0,21181041 | 1,0e−15 | ✓ |
| ms1, Ada (n=8, k=4): BH p | 0,63543124 | 0,63543124 | 0,63543124 | 1,0e−15 | ✓ |
| ms1, Guney (n=43, k=6): \chi^2 | 11,31047628 | 11,31047628 | 11,31047628 | 1,1e−15 | ✓ |
| ms1, Guney (n=43, k=6): kesin p | 0,566 | 0,566 | 0,566 | 0 | ✓ |
| ms1, Guney (n=43, k=6): BH p | 0,83731727 | 0,83731727 | 0,83731727 | 1,9e−13 | ✓ |
| ms1, Kuzey (n=58, k=6): \chi^2 | 18,18399493 | 18,18399493 | 18,18399493 | 1,6e−15 | ✓ |
| ms1, Kuzey (n=58, k=6): kesin p | 0,083 | 0,083 | 0,083 | 0 | ✓ |
| ms1, Kuzey (n=58, k=6): BH p | 0,63543124 | 0,63543124 | 0,63543124 | 1,0e−15 | ✓ |
| L4, Ada (n=8, k=4): \chi^2 | 3,11111111 | 3,11111111 | 3,11111111 | 4,3e−16 | ✓ |
| L4, Ada (n=8, k=4): kesin p | 1 | 1 | 1 | 2,7e−15 | ✓ |
| L4, Ada (n=8, k=4): BH p | 1 | 1 | 1 | 2,0e−15 | ✓ |
| L4, Guney (n=45, k=4): \chi^2 | 6,30289343 | 6,30289343 | 6,30289343 | 5,6e−16 | ✓ |
| L4, Guney (n=45, k=4): kesin p | 0,54138323 | 0,54138323 | 0,54138323 | 3,3e−14 | ✓ |
| L4, Guney (n=45, k=4): BH p | 0,83731727 | 0,83731727 | 0,83731727 | 1,9e−13 | ✓ |
| L4, Kuzey (n=60, k=4): \chi^2 | 5,16821985 | 5,16821985 | 5,16821985 | 0 | ✓ |
| L4, Kuzey (n=60, k=4): kesin p | 0,65124676 | 0,65124676 | 0,65124676 | 1,5e−13 | ✓ |
| L4, Kuzey (n=60, k=4): BH p | 0,83731727 | 0,83731727 | 0,83731727 | 1,9e−13 | ✓ |
Ölçütü karşılayan: 46/46. Python: heterozigot sayısının koşullu dağılımı ve çok alelli tabloların tam sayımı (log-gama); Monte Carlo satırlarında R'nin rastgele sayı üreteci Python'da yeniden kurulmuştur. R: açık dağılım formülü, özyinelemeli tablo sayımı ve aynı tohumla tam log-olasılık ölçütü; HardyWeinberg::HWExact ve HWNetwork kullanılmamıştır. hw_cok.csv satırları ek sınama verisindendir (3 popülasyon; ms1 Guney ve Kuzey Monte Carlo, B=999, tohum 11).
Kesin p değerlerindeki 10^{-12} düzeyindeki fark, HWExact'in dağılımı özyinelemeli çarpımla, bağımsız hesapların log-gama ile kurmasından gelir. Monte Carlo satırları tam eşleşir: üç hesap aynı rastgele sayı dizisini kullanır ve ölçütü farklı yoldan (şablon sabitsiz çekirdekle, bağımsız hesaplar tam log-olasılıkla) hesaplar.
78.7 Çıktıyı okuma
Örnek ayarın konsol metni iki satırdır; ilki okuma dökümüdür (TRI sütununun 896 hücresi boştur):
Genotip okuma: 2 lokusta 2000 genotipin 896 tanesi eksik sayıldı (boş hücre: 896; eksik kodu: 0; alellerinden yalnız biri eksik kodu: 0; başka neden: 0).
Hardy–Weinberg dengesi: 2 lokus, 1 popülasyon; 2 test (düzeltme: holm)
"Hardy–Weinberg testleri" tablosu (örnek ayar; değerler dört–beş ondalığa kısaltılmış, sütunlar iki parçada verilmiştir):
lokus  populasyon     n  alel_sayisi      Ho      He         F    chi2  sd  p_chi2
MN     Tümü        1000            2  0.4890  0.4964   0.01488  0.2215   1  0.6379
TRI    Tümü         104            3  0.6635  0.6260  -0.05989  8.4222   3  0.0380

lokus  p_kesin  p_orta  yontem                             p_kesin_duzeltilmis
MN      0.6557  0.6331  kesin (Haldane–Wigginton; SELOME)               0.6557
TRI     0.0337     NaN  kesin (ağ algoritması)                          0.0674
Ek sınama verisinde (çalıştırma 5) konsol notları ve uyarıları da görülür:
Not: popülasyonu eksik 2 birey çıkarıldı.
Genotip okuma: 4 lokusta 460 genotipin 7 tanesi eksik sayıldı (boş hücre: 3; eksik kodu: 4; alellerinden yalnız biri eksik kodu: 0; başka neden: 0).
Hardy–Weinberg dengesi: 4 lokus, 3 popülasyon; 9 test (düzeltme: BH)
Uyarı: tek biçimli (monomorfik) lokus/popülasyon için HWD testi yapılamaz: sabit
Uyarı: 10'dan az genotipli birey içeren testlerin gücü çok düşüktür.
Aynı çalıştırmada altı alelli ms1 lokusunun alelleri sayısal sıradadır; "Alel frekansları" ve "Gözlenen ve beklenen genotip sayıları" tablolarından Ada popülasyonu (dört alel gözlenmiş):
lokus  populasyon  alel  sayi  frekans        genotip  gozlenen  beklenen
ms1    Ada           98     7   0.4375        98/98           2    1.5313
ms1    Ada          100     3   0.1875        98/100          0    1.3125
ms1    Ada          102     2   0.1250        100/100         1    0.2813
ms1    Ada          106     4   0.2500        98/102          2    0.8750
                                              …
                                              106/106         1    0.5000
Çalıştırma 6'da (vcf, vcf3) çalıştırma hiçbir test yapılmadan durur:
'vcf' lokusunda 53 genotipte alellerden yalnız biri eksik kodu ('0'; ör. '0/1'). '0' verinizde gerçek bir alelin adıysa (ör. 0/1 kodlaması) o aleli başka bir adla yeniden kodlayın (ör. 0 → A, 1 → B) ya da 'Eksik genotip kodları' alanından eksik kodlarını belirleyin; eksik genotipse iki aleli de eksik yazın ya da hücreyi boş bırakın. Eksik sayılan kodlar: NA, na, 0, 00, 000, ?, -, ., -9.
| Öğe | Ne yazar | Nasıl yorumlanır |
|---|---|---|
| Okuma dökümü | Kaç lokusta kaç genotipin eksik sayıldığı ve nedeni (boş hücre, eksik kodu) | Eksik genotip yoksa satır yazılmaz. Beklenmeyen sayıda "eksik kodu" varsa veri kodlaması denetlenir; genotiplerinin yarısından çoğu eksik kodu taşıyan lokuslar ayrıca uyarılır (Bölüm 1.5). |
| Özet satırı | Lokus sayısı, popülasyon sayısı, yapılan test sayısı, düzeltme | Test sayısı düzeltmedeki m'dir; tek alelli ve genotipsiz satırlar sayılmaz (ek veride 4 lokus ve 3 popülasyonun 12 satırından 9'u test). |
| Ağ algoritması notu | "Otomatik" seçenekte Monte Carlo'ya geçilen üç ve dört alelli testler | Bu testlerin p'si Monte Carlo kestirimidir; daha ince çözünürlük için B artırılır (78.4.5). |
n |
O lokusta, o popülasyonda genotipi eksik olmayan birey sayısı | Lokuslar arasında farklıysa eksik genotip vardır. Kaç genotipin neden eksik sayıldığı okuma dökümünde yazar. |
alel_sayisi |
Gözlenen farklı alel sayısı k | Hangi kesin testin çalışacağını belirler. |
Ho, He, F |
Gözlenen ve beklenen heterozigotluk, 1-H_o/H_e | F>0 heterozigot eksikliği (akrabalı çiftleşme, Wahlund etkisi, boş alel); F<0 fazlalık. |
chi2, sd, p_chi2 |
Pearson \chi^2, k(k-1)/2, düzeltilmemiş p | Bilgi içindir; beklenen sayı küçükse güvenilmez. |
p_kesin |
Kesin test p'si (iki alelde seçilen türde) | Karar ölçütü; düzeltmeden önceki değer. |
p_orta |
İki alelli lokusta orta-p | Yalnız iki alelde dolu. SELOME'den her zaman küçük ya da eşittir. |
yontem |
"kesin (Haldane–Wigginton; SELOME)" (ya da "DOST", "orta-p"), "kesin (ağ algoritması)", "Monte Carlo kesin (B = …)", "tek biçimli (monomorfik): test yok", "genotip yok" | Monte Carlo satırlarında p'nin çözünürlüğü 1/(B+1)'dir. |
p_kesin_duzeltilmis |
Seçilen düzeltmeyle p | Raporlanacak değer; aile bütün lokus × popülasyon testleridir. |
| "Alel frekansları" | Lokus, popülasyon, alel, sayı, frekans | Alel adına göre sıralı: adların hepsi sayıysa sayısal, değilse alfabetik. |
| "Gözlenen ve beklenen genotip sayıları" | Her olası genotip için iki sayı | Sapmanın hangi genotipten geldiği buradan okunur. Bütün homozigotlarda fazlalık boş alele ya da akrabalı çiftleşmeye işaret eder. |
Ek veride kesin p'ler ve BH düzeltmeleri: snp1 Kuzey 0,1475 → 0,6354; ms1 Kuzey (Monte Carlo) 0,083 → 0,6354; ms1 Ada (dört alel gözlenmiş, ağ algoritması) 0,2118 → 0,6354; L4 Ada 1,0000 → 1,0000. ms1 lokusu %20 sabitleme indeksiyle üretildiği hâlde hiçbir popülasyonda anlamlı değildir (F kestirimleri 0,10–0,28): 8–58 bireyle altı alelli bir lokusta testin gücü düşüktür.
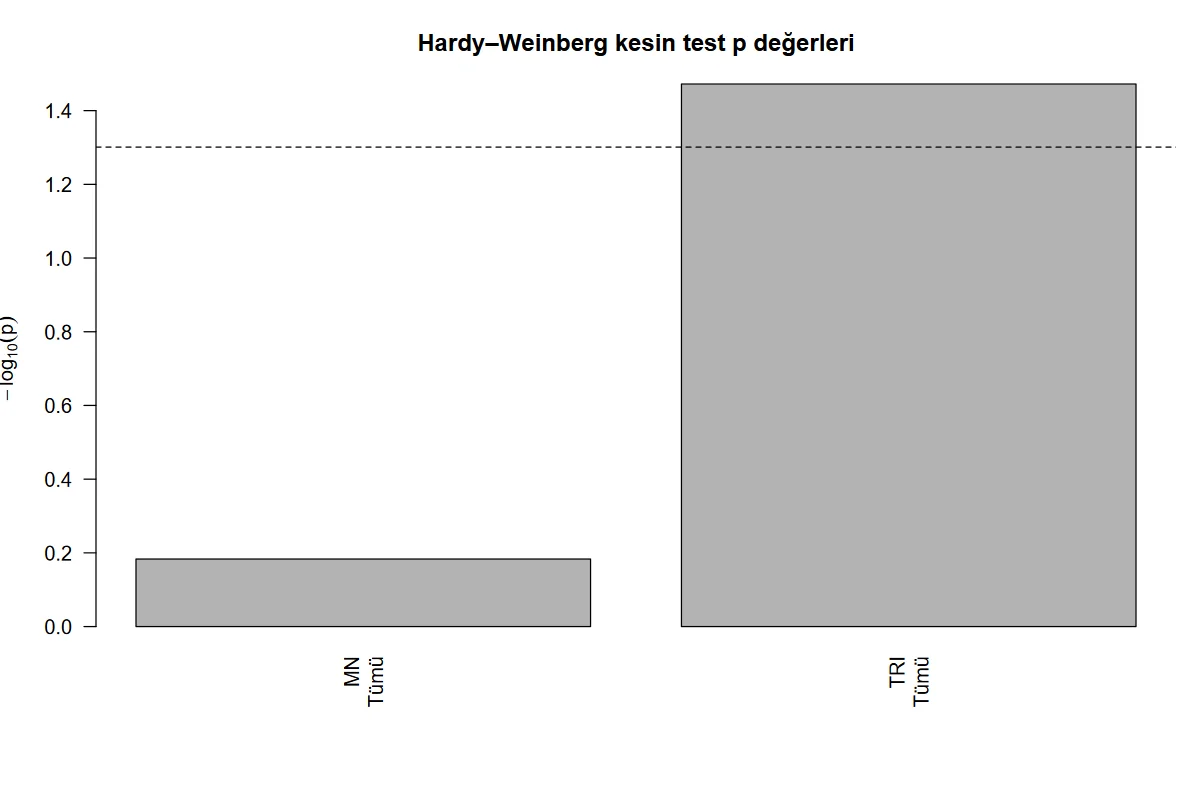
Şekil 78.1. Şablonun çizdiği kesin test grafiği (örnek veri). Çubuk yüksekliği -\log_{10}p (ham kesin p), kesikli çizgi p=0{,}05. TRI çubuğu çizgiyi aşar ama gridir: Holm düzeltmesinden sonra p=0{,}067'dir. Renk düzeltilmiş p'ye, çizgi ham p'ye göredir.
Rapor cümlesi (örnek ayar):
Hardy–Weinberg dengesi her lokusta kesin testle sınandı ve p değerleri Holm yöntemiyle düzeltildi. MN lokusu dengededir (n = 1000; H_o = 0{,}489, H_e = 0{,}496, F = 0{,}015; kesin p = 0{,}656). Üç alelli TRI lokusunda (n = 104; H_o = 0{,}663, H_e = 0{,}626, F = -0{,}060) düzeltilmemiş kesin p = 0{,}034 iken düzeltmeden sonra sapma anlamlı değildir (p = 0{,}067); sapma A/C heterozigotlarının fazlalığından (26 gözlenen, 17,7 beklenen) ve C/C homozigotlarının yokluğundan (0 gözlenen, 3,5 beklenen) gelir.
78.8 Sık hatalar ve tuzaklar
- Alel adı olarak 0 kullanmak.
0,00ve000eksik kodudur. Alelleri 0 ve 1 (ya da 0, 1, 2) diye adlandıran kodlamada0/1gibi genotipler "bir aleli eksik" görünür; şablon bunları eksik saymaz, gerçek alel de saymaz: çalıştırma lokusu, genotip sayısını ve örnek genotipi veren iletiyle durur (ek veridevcf: 53 genotip). Bu kodlamadaki veri önce harf ya da sıfırdan farklı sayı adlarına çevrilir (0 → A, 1 → B).0/0yazımı her zaman eksik genotiptir; okuma dökümündeki "eksik kodu" sayısı beklenenden büyükse 0 homozigotlarının eksik sayılıp sayılmadığı denetlenir. Sayısal 0/1/2 sütunu bu kuralın dışındadır. Alana Eksik genotip kodları yalnız veride gerçekten eksik olan kodu (ör..) yazmak yeniden kodlamayı gereksiz kılar:0o zaman gerçek alel sayılır. - Popülasyonları tek grupta sınamak. Alel frekansları farklı popülasyonlar birleştirilince, her biri dengede olsa bile heterozigot eksikliği görülür (Wahlund etkisi). Örnekleme birimi popülasyon sütununa verilir.
- 0/1/2 sütununu kategorik türde bırakmak. Sayısal kodlama yalnız sütun sayısal türdeyse tanınır. Veri sekmesinde sütun kategorik ya da metin yapılırsa değerler metin genotip sayılır ve çalıştırma "ayırıcı içermeyen genotip" iletisiyle durur. Çözüm, sütun türünü sayısala çevirmektir.
- Ayırıcıyı yanlış bırakmak. Genotipler
A|Gya daA:Gbiçimindeyse ayırıcı alanı değiştirilir. Ayırıcısız iki harfli yazım (AG) ve tek alelli yazım (A) hata verir;A/biçimi de ayırıcısız sayılır. - \chi^2 sütununa göre karar vermek. Nadir alellerde \chi^2 p'si kesin p'den çok küçük ya da çok büyük çıkabilir. Düzeltme de yalnız kesin p'ye uygulanır.
- Çok testte küçük B. Monte Carlo p'si 1/(B+1)'in altına inemez; düzeltmeden sonra anlamlılık olanaksızlaşabilir (78.4.6).
- Büyük örneklemli üç ve dört alelli lokusta kesin p beklemek. "Otomatik" seçenek, sayılacak tablo sayısı sınırı aşınca Monte Carlo'ya geçer ve bunu
yontemsütununda ve bir notta bildirir (78.4.5). Bu testlerde p'nin çözünürlüğü 1/(B+1)'dir; çok test düzeltilecekse B büyütülür. Sınırın altındaki büyük tablolarda ağ algoritması test başına yarım dakikaya kadar sürebilir ve süre her lokus × popülasyon için yinelenir; çok sayıda böyle lokus varsa "Her zaman Monte Carlo" daha hızlıdır. - Anlamsız p'yi dengenin kanıtı saymak. Küçük örneklemde test güçsüzdür; şablon 10'dan az bireyde uyarır, ama 30–50 bireyde de orta büyüklükte sapmalar çoğu zaman yakalanmaz. F ve gözlenen/beklenen tablo birlikte okunur.
- Anlamlı sapmayı biyolojiye bağlamadan önce veriyi denetlememek. Tek lokusta, bütün popülasyonlarda homozigot fazlalığı genellikle boş alel ya da okuma hatasıdır; bütün lokuslarda birlikte görülen eksiklik popülasyon yapısına ya da akrabalı çiftleşmeye işaret eder.
- Akraba bireyleri ya da aile örneklerini birlikte sınamak. Test bireylerin bağımsız örneklendiğini varsayar.
- Cinsiyet kromozomu işaretleyicileri. Erkekler X üzerindeki lokusta tek kopya taşır; şablonda cinsiyet girdisi yoktur ve bütün bireyler iki kopyalı sayılır. X kromozomu işaretleyicileri bu şablonla sınanmaz.
78.9 Uzman soruları
S1. SELOME, DOST ve orta-p'den hangisi raporlanmalı?
Üçü de aynı koşullu dağılımın iki yönlü özetidir. Yazındaki "kesin test" çoğu zaman SELOME'dir (Wigginton ve ark., 2005) ve yayımlanmış değerlerle karşılaştırma için o kullanılır. SELOME tutucudur: kesikli dağılım yüzünden gerçek ret oranı nominal düzeyin altında kalır, küçük alel frekansı düştükçe fark büyür. Graffelman ve Moreno (2013) orta-p'nin ret oranını nominal düzeye en çok yaklaştırdığını gösterdi. Şablon SELOME'yi varsayılan tutar, orta-p'yi her zaman yan sütunda verir. MN lokusunda üç değer 0,6557, 0,6331 ve 0,6723'tür; fark küçük örneklemde ve nadir alelde büyür (ek veride snp1 Ada, n=7: SELOME 0,4406, orta-p 0,2308).
S2. Ki-kare testinin serbestlik derecesi neden k(k-1)/2?
k alelde k(k+1)/2 genotip sınıfı vardır. Toplamın n olması bir kısıt, veriden kestirilen k-1 bağımsız alel frekansı k-1 kısıt getirir: k(k+1)/2-1-(k-1)=k(k-1)/2. İki alelde 1, üç alelde 3, altı alelde 15'tir. Sınıf sayısı arttıkça beklenen sayılar küçülür (ek veride altı alelli lokusun 21 sınıfından çoğunda beklenen 3'ün altındadır) ve \chi^2 yaklaşımı bozulur; çok alelli lokusta kesin test bu yüzden zorunludur.
S3. Monte Carlo ölçütü neden örneklem olasılığı? Başka ölçütler ne verir?
Şablon tabloları koşullu olasılıklarına göre sıralar: gözlenenden daha az olası her tablo "daha uç" sayılır. Bu, tam kesin testle aynı ölçüttür ve B\to\infty'de ağ algoritmasının p'sine yakınsar (TRI: 0,041 ile 0,0337). Yazında başka sıralamalar da vardır: olabilirlik oranı istatistiği, Pearson \chi^2 ve yalnız heterozigot eksikliğine (ya da fazlalığına) duyarlı tek yönlü U puanı. Farklı ölçütler aynı veride farklı p verebilir; özellikle tek yönlü test, yönü önceden belli bir sapmada (boş alel) daha güçlüdür. Şablon yalnız olasılık ölçütünü ve iki yönlü testi sunar.
S4. Guo ve Thompson'ın Markov zinciri ile bu şablonun karıştırması aynı şey mi?
Hayır. Guo ve Thompson (1992) iki yöntem verir: alel kopyalarının tam karıştırılmasına dayanan doğrudan Monte Carlo ve tabloyu küçük adımlarla değiştiren Markov zinciri. Şablon birincisini kullanır: her tekrar H_0 altındaki dağılımdan bağımsız bir çekimdir, ısınma dönemi ya da zincir bağımlılığı sorunu yoktur ve p'nin standart hatası binom formülüyle bulunur. Bedeli, her tekrarda 2n kopyanın karıştırılmasıdır; binlerce bireyde Markov zinciri daha hızlıdır.
S5. "Otomatik" seçeneği üç ve dört alelde ne zaman Monte Carlo'ya geçer, neden?
Ağ algoritması tabloları tek tek sayar; sayı n ile yaklaşık n^{k(k-1)/2} hızında büyür. Üç alelde n=104 için 12246 tablo vardır ve hesap anlıktır; dört alelde n=60 için 355720 tablo, n=200'de 14 saniye sürer, n=300'de bir dakikayı aşar. Şablon bu yüzden yalnız alel sayısına bakmaz: en sık alel dışındaki alel sayılarının birer fazlasının çarpımı üç alelde 2\cdot10^{6}'yı, dört alelde 4\cdot10^{5}'i aşarsa o testte Monte Carlo kullanır ve bunu bildirir (satır 109–111, 148, 155–158). Sınır tek testte yaklaşık yarım dakikaya ayarlıdır; daha yüksek bir sınır daha çok lokusu tam kesin testte bırakır, ama çok lokuslu ve çok popülasyonlu çalıştırmayı uzatır. Monte Carlo'ya geçilen testte B=19999 ile p=0{,}05 çevresinde standart hata 0,0015'tir.
S6. Düzeltme hangi aile üzerinde yapılıyor ve bu doğru aile mi?
Aile, çalıştırmadaki bütün lokus × popülasyon kesin testleridir; tek alelli ve genotipsiz satırlar aileye girmez. Bu, "herhangi bir lokus herhangi bir popülasyonda sapıyor mu" sorusunun ailesidir. Soru lokus temelliyse (boş alel taraması) ya da popülasyon temelliyse (akrabalı çiftleşme) sonuçlar lokus içinde ya da popülasyon içinde ayrıca birleştirilmelidir; şablon popülasyonlar arası birleşik test (Fisher yöntemi) vermez. Aileyi daraltmak için şablon popülasyon ya da lokus alt kümeleriyle ayrı ayrı çalıştırılır.
S7. F neden güven aralıksız veriliyor ve negatif çıkabilir mi?
F=1-H_o/H_e bir oran kestirimidir; [-1{,}1] aralığında değer alır ve heterozigot fazlalığında negatiftir (TRI: −0,060). Örnekleme dağılımı küçük n'de çarpıktır; şablon aralık vermez, anlamlılığı kesin testle değerlendirir. Lokuslar üzerinden birleşik F_{IS} ve bootstrap güven aralığı için f_istatistikleri kullanılır. İki alelli lokusta \chi^2=n\,F^2 eşitliği vardır (MN: 1000\cdot0{,}0148825^2=0{,}22149); F ile \chi^2 aynı bilgiyi taşır.
S8. Koşullu test alel frekanslarındaki belirsizliği yok mu sayıyor?
Tersine, onu ortadan kaldırır. Alel sayıları H_0 altında alel frekansları için yeterli istatistiktir; onlara koşullanınca dağılım bilinmeyen parametre içermez ve test her örneklem büyüklüğünde tam düzeylidir. Bedeli kesikliliktir: nadir alelde olası tablo sayısı çok azdır (snp1 Ada: üç tablo) ve ulaşılabilen p değerleri seyrektir; SELOME'nin tutuculuğu buradan gelir.
S9. Aynı veri başka bir yazılımda farklı p verirse ilk neye bakılır?
Sırasıyla: (1) p türü (SELOME, orta-p, DOST); (2) çok alelli lokusta ölçüt (olasılık, olabilirlik oranı, U puanı) ve yöntem (tam sayım, Markov zinciri, karıştırma); (3) \chi^2'de süreklilik düzeltmesi (şablon uygulamaz); (4) eksik genotip kuralı ve dolayısıyla n; (5) Monte Carlo'da tekrar sayısı ve tohum. İlk dört madde belirlenimci farktır ve giderilebilir; beşincisi standart hata büyüklüğünde bir oynamadır.
78.10 Kaynaklar
- Aoki, S. (2003). Network algorithm for the exact test of Hardy–Weinberg proportion for multiple alleles. Biometrical Journal, 45(4), 471–490. https://doi.org/10.1002/bimj.200390026
- Benjamini, Y., & Hochberg, Y. (1995). Controlling the false discovery rate: A practical and powerful approach to multiple testing. Journal of the Royal Statistical Society: Series B, 57(1), 289–300. https://doi.org/10.1111/j.2517-6161.1995.tb02031.x
- Engels, W. R. (2009). Exact tests for Hardy–Weinberg proportions. Genetics, 183(4), 1431–1441. https://doi.org/10.1534/genetics.109.108977
- Graffelman, J. (2015). Exploring diallelic genetic markers: The HardyWeinberg package. Journal of Statistical Software, 64(3), 1–23. https://doi.org/10.18637/jss.v064.i03
- Graffelman, J., & Moreno, V. (2013). The mid p-value in exact tests for Hardy–Weinberg equilibrium. Statistical Applications in Genetics and Molecular Biology, 12(4), 433–448. https://doi.org/10.1515/sagmb-2012-0039
- Guo, S. W., & Thompson, E. A. (1992). Performing the exact test of Hardy–Weinberg proportion for multiple alleles. Biometrics, 48(2), 361–372. https://doi.org/10.2307/2532296
- Haldane, J. B. S. (1954). An exact test for randomness of mating. Journal of Genetics, 52(3), 631–635. https://doi.org/10.1007/BF02985085
- Hedrick, P. W. (2005). Genetics of populations (3rd ed.). Jones and Bartlett.
- Holm, S. (1979). A simple sequentially rejective multiple test procedure. Scandinavian Journal of Statistics, 6(2), 65–70.
- Levene, H. (1949). On a matching problem arising in genetics. The Annals of Mathematical Statistics, 20(1), 91–94. https://doi.org/10.1214/aoms/1177730093
- Nei, M. (1978). Estimation of average heterozygosity and genetic distance from a small number of individuals. Genetics, 89(3), 583–590. https://doi.org/10.1093/genetics/89.3.583
- Phipson, B., & Smyth, G. K. (2010). Permutation p-values should never be zero: Calculating exact p-values when permutations are randomly drawn. Statistical Applications in Genetics and Molecular Biology, 9(1), Article 39. https://doi.org/10.2202/1544-6115.1585
- Wahlund, S. (1928). Zusammensetzung von Populationen und Korrelationserscheinungen vom Standpunkt der Vererbungslehre aus betrachtet. Hereditas, 11(1), 65–106. https://doi.org/10.1111/j.1601-5223.1928.tb02483.x
- Wigginton, J. E., Cutler, D. J., & Abecasis, G. R. (2005). A note on exact tests of Hardy–Weinberg equilibrium. American Journal of Human Genetics, 76(5), 887–893. https://doi.org/10.1086/429864