66. DNA barkodlama ve tür sınırlandırma
Şablon kimliği: barkod_tur_sinirlandirma · Kategori: genetik · Dil: R · Dosya: pro/sablonlar/genetik/barkod_tur_sinirlandirma.R (satır 1–354; üstbilgi 1–127) · Örnek veri: _ornek/barkod_tur_sinirlandirma_dolomedes.csv · Paketler: ape 5.8-1, spider 1.5.3; isteğe bağlı splits 1.0-20
66.1 Ne işe yarar
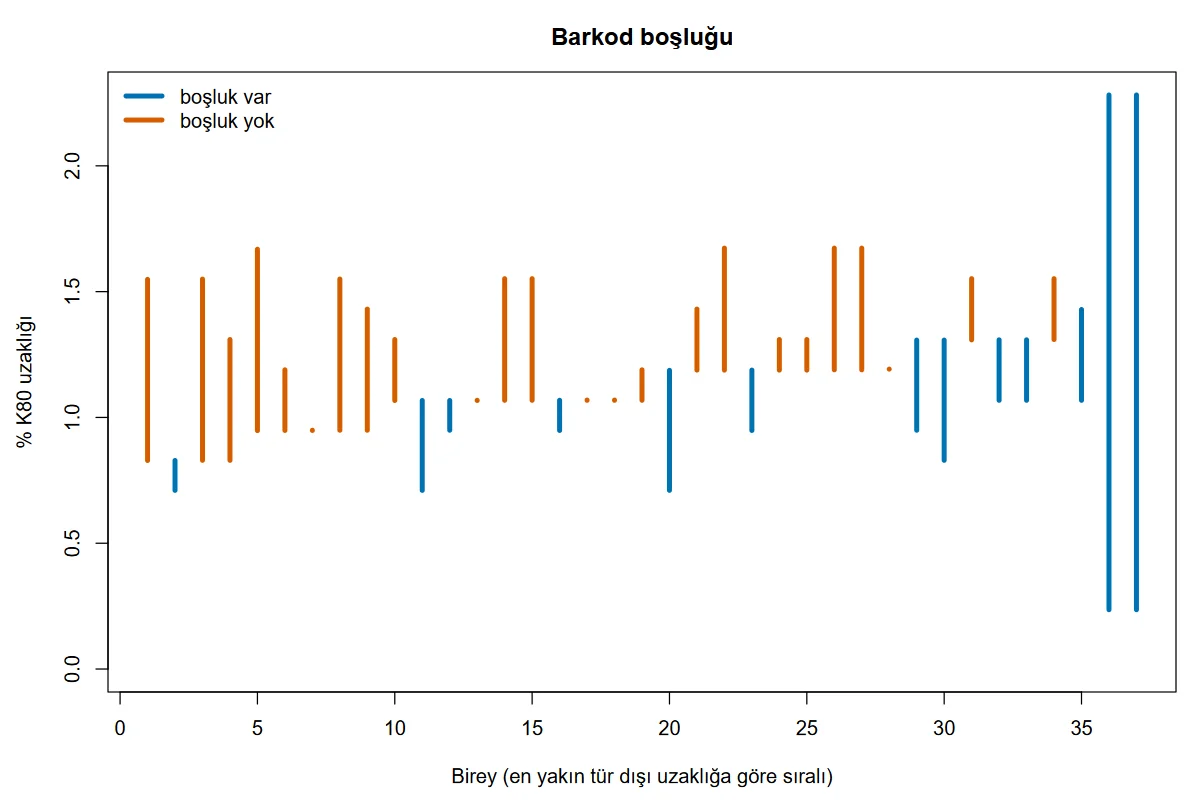
Şablon, kısa ve standart bir gen bölgesinin (hayvanlarda çoğunlukla COI) hizalanmış dizileriyle iki soruyu cevaplar: "Bu dizilerle, ön tanımı yapılmış türler birbirinden ne ölçüde ayırt edilebiliyor?" ve "Tür adlarına bakmadan, diziler kaç gruba ayrılıyor?" Birincisi tür tanımlama (barkodlama) başarısıdır; ikincisi tür sınırlandırmadır. İkisinin de dayandığı varsayım aynıdır: aynı türün bireyleri arasındaki dizi uzaklığı, farklı türlerin bireyleri arasındaki uzaklıktan küçüktür. Bu fark varsa uzaklık dağılımında bir barkod boşluğu oluşur.
- d_{ij}: i. ve j. dizi arasındaki evrimsel uzaklık (varsayılan: Kimura'nın iki parametreli modeli).
- t_i: i. bireyin ön tür tanımı.
- İlk terim bireyin en yakın tür dışı komşusuna, ikinci terim en uzak tür içi komşusuna uzaklığıdır.
- g_i>0: birey için barkod boşluğu vardır; g_i\le 0: yoktur (bir yabancı tür bireyi, kendi türünün en uzak bireyinden daha yakındır ya da onunla aynı uzaklıktadır).
Şablon altı iş yapar: (1) tür içi ve türler arası uzaklıkları özetler; (2) her birey için barkod boşluğunu hesaplar; (3) her bireyi sırayla "bilinmeyen" sayıp üç ölçütle tanımlar (en yakın komşu, en iyi yakın eşleşme, eşik ölçütü); (4) bir eşik aralığını tarayıp hatayı en küçük yapan eşiği ve uzaklık yoğunluğunun yerel minimumlarını bulur; (5) seçilen eşikte dizileri tek bağlantılı kümelemeyle moleküler birimlere (MOTU) ayırır; (6) istenirse GMYC modeliyle bir ağaç üzerinde tür sınırı arar.
Ne zaman kullanılır? Bir başvuru kütüphanesinin (ön tanımlı türlerin barkod dizileri) tanımlama gücü ölçülecekse; bir takson grubunda %1 gibi genel bir eşiğin uygun olup olmadığı sorgulanıyorsa; morfolojik tür tanımlarının dizi verisiyle tutarlılığı (bölünen ya da birleşen türler) taranacaksa.
Ne zaman kullanılmaz?
- Diziler hizalanmamışsa (uzunluklar farklı): önce
dizi_hizalama(Bölüm 70). - Amaç türler arası akrabalık ağacıysa:
dizi_filogeni(Bölüm 69) ya dabayes_filogeni(Bölüm 67). GMYC için gereken zaman ölçekli ağaç da orada ya da dış bir programda kestirilir. - Tek bir türün içindeki haplotiplerin ilişkisi soruluyorsa:
haplotip_agi(Bölüm 77); tür içi çeşitlilik ve demografi içinnotralite_testleri(Bölüm 82). - Popülasyonlar arası farklılaşmanın payı isteniyorsa:
dizi_amova(Bölüm 68). - Veri çok lokuslu genotipse (mikrosatellit, SNP): uzaklık için
genetik_uzaklik(Bölüm 74), gruplama içinpopulasyon_yapisi(Bölüm 84). - Tür sütunu yoksa: şablon tür sütununu zorunlu tutar. Yalnız kümeleme isteniyorsa bütün dizilere iki keyfî etiket verilerek çalıştırılabilir; o durumda yalnız yerel minimumlar, MOTU sayısı ve GMYC tabloları anlamlıdır.
Temel programla ilişki. Temel programda DNA dizisinden uzaklık hesaplayan bir analiz yoktur. Oradaki Hiyerarşik Kümeleme, sayısal değişkenlerden kurulan bir uzaklıkla çalışır; dizi sütununu okuyamaz, tür etiketine dayalı tanımlama ölçütleri ve eşik taraması içermez.
66.2 Şablonun girdileri
Form, üstbilgideki on beş [[param]] bloğundan kurulur (barkod_tur_sinirlandirma.R:11–126).
| Alan (form etiketi) · ad | Tür · sekme | Varsayılan | Geçerli değerler | Kodda etkisi |
|---|---|---|---|---|
Dizi sütunu (hizalanmış DNA) · dizi |
sütun · Değişkenler | ilk sütun | herhangi bir sütun | Diziler; boşluk karakterleri atılır, harfler büyütülür, U → T (142–143, 156). |
Tür (ön tanımlama) · tur |
kategorik sütun · Değişkenler | ilk kategorik sütun | herhangi bir sütun; en az 2 tür | Tür vektörü (144, 160–161). |
Örnek adı (isteğe bağlı) · kimlik |
sütun · Değişkenler | boş | boş olabilir | Birey tablosundaki adlar; boşsa S1, S2 … (145–146, 162). |
Uzaklık modeli · uzaklik |
seçim · Model | K80 |
K80, raw, JC69, TN93 |
ape::dist.dna(model =) (166–168). |
İkili silme · ikili_silme |
onay · Model | açık | açık, kapalı | pairwise.deletion (168). |
Tanımlama eşiği · esik |
ondalık · Seçenekler | 0,01 | 0,0001–0,5 | En iyi yakın eşleşme ve eşik ölçütü (175, 216–217); histogramdaki kesikli çizgi (338). |
Eşik optimizasyonu: en küçük eşik · esik_en_az |
ondalık · Seçenekler | 0,001 | 0,0001–0,5 | Taramanın alt ucu (244, 246). |
Eşik optimizasyonu: en büyük eşik · esik_en_cok |
ondalık · Seçenekler | 0,02 | 0,0002–0,5 | Taramanın üst ucu (244–246). |
Eşik optimizasyonu: adım · esik_adim |
ondalık · Seçenekler | 0,001 | 0,0001–0,1 | Taramanın adımı; en çok 500 eşik (246–247). |
Eşik kümelemesinde (MOTU) kullanılacak eşik · kume_esigi |
seçim · Model | yerel |
yerel, opt, esik |
Kümeleme eşiğinin kaynağı (264–266). |
Tanımlama başarısını tekil türler çıkarılarak da ver · tekil_haric |
onay · Çıktı | açık | açık, kapalı | Tanımlama tablosuna üç sütun ekler (233–238). |
GMYC tür sınırlandırması · gmyc |
onay · Model | kapalı | açık, kapalı | GMYC bloğu (279–317). |
GMYC yöntemi · gmyc_yontem |
seçim · Gelişmiş | single |
single, multiple |
splits::gmyc(method =) (302). |
GMYC ölçekleme parametreleri üst sınırı · gmyc_ust |
ondalık · Gelişmiş | 5 | 0,5–50 | interval = c(0, üst) (302). |
GMYC için ultrametrik ağaç · agac |
metin · Model | boş | Newick metni ya da dosya yolu | Kullanıcı ağacı (uç adları verideki örnek adlarıyla aynı olmalıdır); boşsa UPGMA (285–299). |
Örnek ayar (ornek_param, satır 9): dizi = dizi, tur = tur, kimlik = ornek. Öteki alanlar varsayılandadır.
Dizilerin biçimi. A, C, G, T (ve U), IUPAC belirsizlik kodları (R, Y, K, M, S, W, B, D, H, V), N, ? ve - kabul edilir (satır 153). Bütün diziler aynı uzunlukta olmalıdır. Dizisi ya da türü boş olan satırlar çıkarılır ve sayıları not olarak yazılır (147–149).
Şablonun kendi denetimleri.
| Koşul | İleti | Satır |
|---|---|---|
| Veri açık değil | "Önce Veri sekmesinde bir veri açın." | 130 |
ape ya da spider kurulu değil |
"'…' R paketi kurulu değil." | 131–132 |
| Dizi ya da tür sütunu boş | "Dizi ve tür sütunları seçilmeli." | 139 |
| Dizi ve tür aynı sütun | "Dizi sütunu tür olarak da seçilemez." | 141 |
| 4'ten az dizi | "En az 4 dizi gerekli (… var)." | 151 |
| 3000'den çok dizi | "… dizi var; bu şablon en çok 3000 diziyle çalışır." | 152 |
| DNA dışı karakter | "… dizide DNA dışı karakter var ('…') …" | 153–155 |
| Uzunluklar farklı | "Diziler hizalanmamış: uzunluklar farklı … Önce hizalayın …" | 158–159 |
| Tek tür | "En az iki tür gerekli (tür sütunu tek düzeyli) …" | 161 |
| Tanımsız uzaklık | "'…' modelinde bazı uzaklıklar tanımsız (doygunluk ya da ortak konum yok) …" | 170–171 |
| Bütün diziler aynı | "Bütün diziler aynı (tek haplotip); uzaklıklar sıfır …" | 172 |
| En büyük eşik en küçükten büyük değil | "Eşik optimizasyonunda en büyük eşik en küçükten büyük olmalı." | 245 |
| 500'den çok eşik | "Eşik optimizasyonu en çok 500 eşikle yapılır; adımı büyütün." | 247 |
| GMYC ağacı okunamıyor | "GMYC ağacı okunamadı; Newick metni ya da geçerli bir dosya yolu verin." | 289 |
| GMYC ağacı ultrametrik değil | "GMYC ağacı ultrametrik değil; zaman ölçekli (ör. BEAST) bir ağaç verin." | 290 |
| GMYC ağacının uç adları verideki örneklerle uyuşmuyor | "GMYC ağacının uç adları verideki örnek adlarıyla uyuşmuyor (ağaçta … uç, veride … örnek; …)." | 291–294 |
Çalıştırmayı durdurmayan notlar: bütün türler tek bireyliyse tür içi uzaklık ve barkod boşluğu hesaplanamaz (179); yerel minimum bulunamazsa kümelemede tanımlama eşiği kullanılır (265); splits paketi kurulu değilse GMYC yapılmaz ve kurulum komutu yazılır (281–282); GMYC uydurulamazsa bildirilir (303); UPGMA ağacı kullanıldıysa zaman ölçekli olmadığı hatırlatılır (313–314); ASAP ve bPTP yöntemlerinin şablonda olmadığı her çalıştırmada yazılır (318).
66.3 Örnek veri
Dosya: _ornek/barkod_tur_sinirlandirma_dolomedes.csv. Yeni Zelanda'nın Dolomedes (balıkçı örümcekler) cinsine ait 37 COI dizisi (Vink ve Dupérré, 2010); spider paketindeki dolomedes veri kümesinin düz tablo biçimidir. Dizi uzunluğu 850 bazdır; eksik değer yoktur. Yalnız bir dizide (9. satır, minorD027) iki konumda (181 ve 265) belirsizlik kodu Y (C ya da T) bulunur.
| Değişken | Rol | Tür (veri sekmesi) | Özet |
|---|---|---|---|
ornek |
Örnek adı | metin | 37 ad; tür kısaltması ve örnek numaraları (minorD003 …). |
tur |
Tür | kategorik | minor 16, aquat 12, donda 7, schau 2 birey. |
dizi |
Dizi | metin | 850 karakter; A, C, G, T ve iki Y. |
Arayüzdeki düzey sırası (ilk görülme) minor, aquat, donda, schau'dur. Şablon türleri kendi içinde harf sırasına dizer (satır 160) ve tür tablosunu bu sırayla yazar; hiçbir sayısal sonuç düzey sırasına bağlı değildir. Tek bireyli (tekil) tür yoktur.
Tekil türlerin etkisini göstermek için ikinci bir veri kullanılır: _ornek/barkod_tur_sinirlandirma_anoteropsis.csv, Anoteropsis (kurt örümcekleri) cinsinden 33 COI dizisi, 409 baz, 22 tür; türlerin 15'i tek bireylidir.
Bu bölümde kullanılan çalıştırmalar: (1) örnek ayar; (2) GMYC açık (UPGMA ağacı); (3) GMYC çok eşikli; (4) p uzaklığı ve tam silme; (5) K2P ve tam silme; (6) kümeleme eşiği "en küçük birikimli hatalı eşik"; (7) tanımlama eşiği 0,02 ve kümeleme eşiği "tanımlama eşiği"; (8) Anoteropsis verisi, örnek ayar.
66.4 Yöntem: formüller ve hesap adımları
Hesap sırası: (1) dizi çiftleri arasındaki uzaklık matrisi; (2) tür içi ve türler arası uzaklıkların özeti; (3) birey düzeyinde barkod boşluğu; (4) üç tanımlama ölçütü; (5) eşik taraması ve uzaklık yoğunluğunun yerel minimumları; (6) eşik kümelemesi; (7) istenirse GMYC.
66.4.1 Uzaklık: Kimura'nın iki parametreli modeli
- L: iki dizide de bilinen baz (A, C, G, T) bulunan konum sayısı.
- n_{\text{geçiş}}: geçiş (transition) türünden farkların sayısı: A↔G (pürinler arası) ya da C↔T (pirimidinler arası).
- n_{\text{dönüşüm}}: dönüşüm (transversion) türünden farkların sayısı: bir pürin ile bir pirimidin arasındaki fark.
- d: konum başına beklenen yer değiştirme sayısı. Farklar azken d\approx P+Q, yani farklı konumların oranıdır.
Neden düzeltmeli bir uzaklık ve neden K2P?
İki dizi arasında sayılan fark, gerçekleşen yer değiştirmelerin alt sınırıdır: aynı konum iki kez değişmişse ya tek fark görülür ya da hiç görülmez. Logaritma bu gizli değişimleri düzeltir. Kimura'nın (1980) modeli geçişlerin dönüşümlerden daha sık olmasına izin verir; iki oran ayrı sayıldığı için "iki parametreli" denir. Barkodlama yazını bu modelle başlamıştır (Hebert ve ark., 2003) ve yayımlanmış eşikler (%1, %2, %3) K2P uzaklığı cinsindendir; şablonun varsayılanı bu yüzden K2P'dir. Tür düzeyindeki küçük uzaklıklarda düzeltmenin etkisi azdır: örnek verinin en büyük tür içi uzaklığı p uzaklığıyla 0{,}01415, K2P ile 0{,}01434'tür (ikisi de tam silmeyle). Modelin barkod verisine çoğu zaman en iyi uyan model olmadığı ve p uzaklığının benzer ya da daha iyi sonuç verdiği gösterilmiştir (Srivathsan ve Meier, 2012; Collins ve Cruickshank, 2013); K2P'nin gerekçesi istatistiksel üstünlük değil, karşılaştırılabilirliktir.
Koddaki tercih
Uzaklığı ape::dist.dna(dna, model = …, pairwise.deletion = …) hesaplar (satır 168). K80 ape'in K2P için kullandığı addır. İkili silme açıkken (varsayılan) bilinmeyen ya da belirsiz baz içeren konum yalnız o çiftin hesabından düşer; kapalıyken (tam silme) herhangi bir dizide böyle bir baz bulunan konum bütün çiftlerden düşer. Örnek veride iki Y tek bir dizidedir: ikili silmede o dizinin karşılaştırmaları 848, ötekiler 850 konum üzerinden yapılır; tam silmede bütün karşılaştırmalar 848 konuma iner. İki konumun ikisi de değişkendir (öteki 36 dizide C ve T birlikte görülür); bu yüzden fark sonuçlara yansır (66.6, Adım 8).
Öteki modeller
raw düzeltmesiz fark oranıdır (p uzaklığı). JC69 bütün yer değiştirmeleri eşit olasılıklı sayar. TN93 iki geçiş türünü ve baz frekanslarını ayrı ele alır; baz frekanslarını hizalamanın bütününden kestirdiği için bir çiftin uzaklığı öteki dizilere de bağlıdır. Model değiştiğinde eşiklerin anlamı da değişir: K2P ile belirlenmiş %1 eşiği p uzaklığında aynı çiftleri ayırmaz (örnek veride eşik ölçütü K2P ve ikili silmeyle 28, p uzaklığı ve tam silmeyle 25 bireyi doğru tanımlar).
66.4.2 Tür içi ve türler arası uzaklıklar
Her tür için: birey sayısı; türün kendi birey çiftleri arasındaki uzaklıkların ortalaması ve en büyüğü; türün herhangi bir bireyi ile başka türlerin bireyleri arasındaki en küçük uzaklık ve o uzaklığın ait olduğu tür ("en yakın tür"); bu ikisinin farkı (tür düzeyinde boşluk). Özet tablosundaki dört satır bütün tür içi çiftler ile bütün türler arası çiftler üzerindendir.
Neden türler arası uzaklığın ortalaması değil en küçüğü?
Tanımlamayı bozan, bir türün en yakın yabancı komşusudur; uzak türlerle olan büyük uzaklıklar ortalamayı yükseltir ve boşluğu olduğundan geniş gösterir. Meier, Zhang ve Ali (2008) ortalama türler arası uzaklığın barkod boşluğunu abarttığını göstermiş, en küçük türler arası uzaklığın kullanılmasını önermiştir. Örnek veride türler arası ortalama 0{,}0180, en büyük tür içi uzaklık 0{,}0167'dir ve ortalamaya bakılırsa küçük bir boşluk var sanılır; en küçük türler arası uzaklık ise 0{,}0083'tür ve boşluk yoktur.
66.4.3 Birey düzeyinde barkod boşluğu
66.1'deki g_i her birey için ayrı hesaplanır: spider::maxInDist (en uzak tür içi) ve spider::nonConDist (en yakın tür dışı). Tek bireyli türün bireyi için tür içi uzaklık tanımsızdır; boşluk hesaplanmaz ve birey "boşluğu hesaplanan" sayısına girmez. Şablon g_i\le 0 olan bireyleri sayar (satır 209).
66.4.4 Tanımlama ölçütleri
Her birey sırayla sorgu dizisi sayılır; öteki bütün diziler başvuru kütüphanesidir. m_i=\min_{j\ne i} d_{ij} sorgunun en yakın komşusuna uzaklığı, E tanımlama eşiği olsun.
| Ölçüt | Bakılan küme | "doğru" | "belirsiz" | "yanlış" | "tanımsız" |
|---|---|---|---|---|---|
| En yakın komşu | d_{ij}=m_i olan diziler | çoğunluk türü sorgunun türü | yok | çoğunluk türü başka | yok |
| En iyi yakın eşleşme | d_{ij}=m_i olan diziler | hepsi sorgunun türünden | sorgunun türü ve başka tür birlikte | hiçbiri sorgunun türünden değil | m_i>E |
| Eşik ölçütü | d_{ij}<E olan bütün diziler | hepsi sorgunun türünden | sorgunun türü ve başka tür birlikte | hiçbiri sorgunun türünden değil | m_i\ge E |
En yakın komşu ölçütü eşik kullanmaz ve her sorguya bir tür atar. En iyi yakın eşleşme (Meier ve ark., 2006) yalnız en yakın diziye bakar, ama o dizi eşikten uzaksa tanımlamayı reddeder. Eşik ölçütü, barkod veritabanlarının tanımlama kuralının karşılığıdır (Ratnasingham ve Hebert, 2007): eşiğin içindeki bütün dizilere bakar; içlerinde tek bir yabancı tür bile varsa sonuç "belirsiz" olur. Bu yüzden eşik ölçütü en katı olanıdır: örnek veride en iyi yakın eşleşme 36, eşik ölçütü 28 bireyi doğru tanımlar.
Koddaki tercih
Üç ölçüt spider::nearNeighbour, bestCloseMatch ve threshID ile hesaplanır (satır 204–205, 216–217). En yakın komşuda birden çok dizi aynı en küçük uzaklıktaysa çoğunluğun türü, çoğunluk da eşitse harf sırasında önce gelen tür alınır. Eşik ölçütünde küme kesin eşitsizlikle (d<E) kurulur; en yakın komşusu tam E uzaklığında olan bir sorguda küme boştur. threshID "tanımsız" kararını m_i>E ile verdiği için bu sorguyu "yanlış" bırakırdı; şablon boş kümeyi "tanımsız" sayar (m_i\ge E) ve bu bireylerin sayısını not olarak yazar (satır 218–226). En iyi yakın eşleşmede karar m_i>E ile kalır. p uzaklığında ve yuvarlak eşiklerde (ör. 400 bazda 4 fark =0{,}01) bu eşitlik gerçekleşebilir; K2P uzaklığında pratikte görülmez. Tanımlama tablosunda en yakın komşu sütununun "belirsiz" ve "tanımsız" satırları her zaman 0'dır (satır 231).
Tekil türler. Tek bireyli türün bireyi sorgu olduğunda kütüphanede kendi türünden dizi kalmaz; en yakın komşu ölçütünde her zaman "yanlış", öteki ikisinde "yanlış" ya da "tanımsız" çıkar. tekil_haric açıkken tabloya, tekil türlerin bireyleri sorgu olarak sayım dışı bırakılarak hesaplanmış üç sütun eklenir (satır 233–238). Tekil diziler kütüphanede kalmayı sürdürür; öteki sorguların sonuçları değişmez.
66.4.5 Eşik taraması
Taranan her eşik E için her sorgu dört sınıftan birine konur (spider::threshOpt; Meyer ve Paulay, 2005):
| Sınıf | Koşul | Anlamı |
|---|---|---|
| Doğru pozitif | d<E olan dizilerin hepsi sorgunun türünden | Tür doğru sınırlanmış. |
| Yanlış negatif | d<E olan diziler arasında başka türden olan var | Eşik fazla geniş: farklı türler birleşiyor. |
| Yanlış pozitif | d<E olan dizi yok, ama kütüphanede sorgunun türünden dizi var | Eşik fazla dar: tür bölünüyor, sorgu "yeni tür" gibi görünüyor. |
| Doğru negatif | d<E olan dizi yok ve sorgunun türü tekil | Kütüphanede eşi olmayan sorgu doğru biçimde eşleşmemiş. |
- Eşik büyüdükçe yanlış pozitifler azalır, yanlış negatifler artar; toplamın en küçük olduğu eşik (ya da eşikler) "en iyi eşik"tir.
- Özet tablosundaki "en iyi eşik (alt)" ve "(üst)", en küçük birikimli hatayı veren eşiklerin en küçüğü ve en büyüğüdür.
Eşikler seq(en küçük, en büyük, by = adım) ile üretilir (satır 246); varsayılan ayar 0,001'den 0,020'ye 20 eşiktir.
66.4.6 Uzaklık yoğunluğunun yerel minimumları
Tür adları kullanılmadan bir eşik aramanın yolu, bütün ikili uzaklıkların dağılımındaki çukura bakmaktır: tür içi uzaklıklar küçük değerlerde, türler arası uzaklıklar büyük değerlerde yığılıyorsa aradaki çukur doğal eşiktir.
- d_k: N=n(n-1)/2 ikili uzaklığın k.'si; \varphi: standart normal yoğunluk.
- h: bant genişliği; s uzaklıkların standart sapması, ÇAG çeyrekler arası genişliği.
- Yoğunluk, en küçük uzaklığın 3h altından en büyük uzaklığın 3h üstüne uzanan 512 noktalı ızgarada hesaplanır; iki komşusundan da küçük olan ızgara noktaları yerel minimumdur.
Koddaki tercih
spider::localMinima (satır 254) stats::density'yi varsayılan ayarlarıyla çağırır. Bildirilen değer, yoğunluğun en küçük olduğu ızgara noktasının bir önceki noktasıdır (paketin dizin kuralı); fark bir ızgara adımıdır (örnek veride 0{,}00008) ve bant genişliğinin yanında önemsizdir. Minimumlar küçükten büyüğe sıralıdır; kümelemede ilki kullanılır. Bant genişliği veriden seçildiği için minimumların yeri dizi sayısına ve türlerin örneklenme dengesine duyarlıdır; birden çok minimum çıkması olağandır.
66.4.7 Eşik kümelemesi (MOTU)
Kümeleme eşiği E_k için, aralarındaki uzaklık E_k'den küçük olan diziler bir bağlantıyla birleştirilir; bağlantılarla birbirine ulaşılabilen dizi kümeleri birer MOTU'dur (spider::tclust, satır 266). Bu, tek bağlantılı hiyerarşik kümelemenin E_k yüksekliğinde kesilmesiyle aynıdır. İki dizi doğrudan birbirine yakın olmasa da aradaki bir zincir üzerinden aynı MOTU'ya düşebilir.
kume_esigi seçeneği E_k'yi belirler: yerel ilk yerel minimum (tür adlarından bağımsız); opt en iyi eşiklerin en küçüğü ile en büyüğünün ortası; esik tanımlama eşiği. Şablon MOTU'ları türlerle karşılaştırır: kaç tür birden çok MOTU'ya bölünmüştür, kaç MOTU birden çok tür içerir ve kaç MOTU bir türle birebir örtüşür (o türün bütün bireyleri ve yalnız onlar).
66.4.8 GMYC (isteğe bağlı)
Genelleştirilmiş karma Yule–koalesan modeli (Pons ve ark., 2006) ultrametrik bir ağaçta dallanma hızının değiştiği zamanı arar: eşikten eski dallanmalar türleşmedir (Yule süreci), eşikten genç dallanmalar tür içi soy birleşmeleridir (koalesan). Türleşme seyrek, tür içi dallanma sık olduğundan ağacın uçlarına doğru dallanma hızı artar; modelin yakaladığı bu geçiştir.
- \tau_i: ağaçta ardışık iki dallanma arasındaki i. bekleme süresi; b_i: o aralıktaki toplam dallanma hızı.
- Sıfır modelde bütün ağaç tek süreçtir: b_i=\lambda\,[n_i(n_i-1)]^{p}; n_i aralıktaki soy sayısı, p ölçekleme üssü.
- GMYC modelinde eşikten önce türleşme hızı, eşikten sonra her kümenin kendi koalesan hızı toplanır; iki sürecin ayrı ölçekleme üsleri vardır.
- \mathrm{OO}: olabilirlik oranı istatistiği; iki serbestlik dereceli ki-kare ile karşılaştırılır.
Koddaki tercih
Model splits::gmyc ile uydurulur (satır 302). Ağaç verilmemişse uzaklık matrisinden ortalama bağlantılı kümeleme (hclust(d, "average"), UPGMA) ile kurulur (296–297); çok dallı düğümler ikiye ayrılır ve sıfır uzunluklu dallara 10^{-8} yazılır (300–301). Tek eşikli modelde aday eşikler ağacın dallanma zamanlarıdır; şablon olabilirliği en büyük olanı seçer (305) ve o eşikteki varlık (eşiği kesen soy sayısı: kümeler ve tek kalan uçlar) ile küme (en az iki uçlu soy) sayılarını yazar. p değeri splits'in özetindeki gibi 2 serbestlik derecesiyle hesaplanır (306); çok eşikli yöntemde de aynı serbestlik derecesi kullanılır. gmyc_ust, splits::gmyc'nin interval argümanıdır ve yalnız sıfır modelin ölçekleme üssünün arandığı aralığı sınırlar.
UPGMA ağacıyla GMYC yalnız bir ön bakıştır
GMYC dal uzunluklarını zaman olarak yorumlar. UPGMA ağacı ultrametriktir ama bir saat modeliyle kestirilmemiştir; dallanma zamanları uzaklıkların ortalamalarıdır ve özdeş ya da çok yakın diziler arasında sıfıra yakın, keyfî sıralı dallanmalar üretir. Fujisawa ve Barraclough (2013) yöntemin başarısının ağacın kalitesine ve tür içi örneklemeye bağlı olduğunu göstermiştir. Raporlanacak bir sonuç için Bayesçi ya da olabilirlik tabanlı bir saat modeliyle kestirilmiş ağaç agac alanına verilir. Şablon verilen ağacın yalnız ultrametrik olup olmadığını denetler; ağacın uç adlarının verideki dizilerle eşleşmesi kullanıcının sorumluluğundadır.
66.5 Kod adım adım
| Satırlar | Ne yapar | Neden / dikkat |
|---|---|---|
| 1–127 | Üstbilgi: kimlik, açıklama, örnek veri ve ayar, on beş parametre. | Form buradan kurulur (Bölüm 1.2). |
| 128–136 | Dil yardımcısı, paket denetimi, bos() yardımcısı, dizi sayısı sınırı (3000). |
splits burada aranmaz; yalnız GMYC istenirse denetlenir. |
| 138–165 | Dizilerin temizlenmesi ve denetimi; tür ve ad vektörleri; karakter matrisi ve DNAbin nesnesi. |
Tür ve ad metne çevrilir, baş–son boşlukları atılır; yinelenen adlar _1, _2 ekiyle ayrılır (162). |
| 166–180 | Uzaklık matrisi; tanımsız ve tümü sıfır uzaklık denetimleri; tekil türlerin saptanması; özet satırı. | Özet satırı ve şekil eksenleri modeli kullanıcıya görünen adıyla yazar (K80 için K2P, raw için p). |
| 182–197 | Tür başına tablo; bütün tür içi ve türler arası çiftlerin özeti. | "En yakın tür" eşitlikte ilk bulunan çiftin türüdür. |
| 199–213 | Birey düzeyinde en uzak tür içi, en yakın tür dışı, boşluk ve en yakın komşu. | Tekil birey için tür içi uzaklık eksik değerdir (202). |
| 215–241 | Üç tanımlama ölçütünün sayımı; tekilsiz sütunlar. | Tekilsiz sütunlar yalnız tekil tür varsa ve bütün türler tekil değilse eklenir (233). |
| 243–261 | Eşik taraması, en iyi eşikler, yerel minimumlar, özet tablosu. | localMinima konsola yazdığı için çıktısı yakalanır (254); hata verirse minimum yok sayılır. |
| 263–276 | Kümeleme eşiğinin seçimi, tclust, MOTU–tür karşılaştırması. |
opt seçeneğinde eşik mean(range(opt))'tur (264). |
| 278–318 | GMYC: ağacın okunması ya da kurulması, uydurma, sonuç tablosu, notlar. | Tablodaki sayılar metin olarak (6–8 anlamlı basamak) yazılır (310–311). |
| 320–354 | Dört şekil: barkod boşluğu, histogram, yoğunluk ve yerel minimumlar, eşiğe göre hatalar. | Barkod boşluğu şekli yalnız boşluğu hesaplanan birey varsa çizilir (322). |
Kritik satırlar, boşluğun ve sayımının tanımıdır:
intra <- suppressWarnings(maxInDist(d, spp))
inter <- nonConDist(d, spp)
gap <- inter - intra
yok_gap <- sum(gap <= 0, na.rm = TRUE)
66.6 Elle hesap: örnek veride bağımsız yeniden hesap
Ara değerler dogrulama/barkod_tur_sinirlandirma/elle_hesap.py ile, ape, spider ve splits kullanılmadan hesaplanmıştır: uzaklık 66.4.1'deki formülden, ölçütler 66.4.4–66.4.5'teki tanımlardan, yoğunluk kestirimi doğrusal kutulama ve FFT evrişiminin ayrı bir uyarlamasıyla, UPGMA kendi döngüsüyle. R tarafında (r_dogrulama.R) uzaklık taban R ile, yoğunluk doğrudan çekirdek toplamıyla, kümeleme hclust("single") ve cutree ile bulunmuştur.
Adım 1 — İki uzaklık. Birinci ve ikinci diziler (minorD003, minorD031) 850 konumun 2'sinde ayrışır; ikisi de geçiştir: P=2/850, Q=0.
Birinci dizi ile 17. dizi (aquatD001) 12 geçiş ve 2 dönüşümle ayrışır: P=0{,}0141176, Q=0{,}0023529.
Düzeltmesiz oran 14/850=0{,}0164706'dır; K2P düzeltmesi bu uzaklıkta dördüncü basamağı değiştirir.
Adım 2 — Tür içi ve türler arası uzaklıklar. 37 dizi 666 çift oluşturur; 208'i tür içi (120+66+21+1), 458'i türler arasıdır.
| Tür | n | Tür içi ortalama | Tür içi en büyük | En yakın tür | Türler arası en küçük | Boşluk |
|---|---|---|---|---|---|---|
| aquat | 12 | 0,005665 | 0,010681 | minor | 0,008288 | −0,002392 |
| donda | 7 | 0,007802 | 0,013097 | minor | 0,008295 | −0,004802 |
| minor | 16 | 0,010124 | 0,016729 | aquat | 0,008288 | −0,008441 |
| schau | 2 | 0,002358 | 0,002358 | donda | 0,022817 | 0,020459 |
Bütün tür içi çiftlerin ortalaması 0{,}008437, en büyüğü 0{,}016729; türler arası çiftlerin ortalaması 0{,}018037, en küçüğü 0{,}008288'dir. Üç tür (aquat, donda, minor) birbirine tür içi değişkenlikten daha yakındır; yalnız schau açık bir boşlukla ayrılır.
Adım 3 — Birey düzeyinde boşluk. minorD003 için en uzak tür içi uzaklık 0{,}014305, en yakın tür dışı uzaklık 0{,}011881'dir: g=-0{,}002424. 37 bireyin 24'ünde g\le 0'dır: minor'un 16 bireyinin hepsi, donda'nın 7 bireyinin hepsi ve aquat'ın bir bireyi. İki sınır durumu vardır. minorD027'de iki uzaklık tam eşittir: ikisi de 848 konumda 9 geçiş ve 1 dönüşümdür (g=0; "boşluk yok" sayılır). aquatD054'te g=-0{,}0000074'tür: iki uzaklık da 850 konumda 9 farktan gelir, ama biri 7 geçiş ve 2 dönüşüm (0{,}0106807), öteki 6 geçiş ve 3 dönüşümdür (0{,}0106733); K2P bu ikisini altıncı basamakta ayırır. p uzaklığında bu bireyin boşluğu tam sıfır olurdu.
Adım 4 — Tanımlama. Her birey için en yakın komşunun türüne bakıldığında 36 birey kendi türünü bulur; dondaD053'ün en yakın komşusu bir minor bireyidir (0{,}008295; kendi türünden en yakın birey daha uzaktadır). En yakın komşu uzaklıklarının hiçbiri 0{,}01'i aşmadığından en iyi yakın eşleşme de aynı sonucu verir: 36 doğru, 1 yanlış, tanımsız yok. Eşik ölçütünde 0{,}01'den yakın bütün dizilere bakılır: 28 bireyde bunların hepsi kendi türündendir, 9 bireyde araya başka bir tür girer ("belirsiz"); dondaD053 de bu dokuzun içindedir, çünkü eşiğin içinde kendi türünden diziler de vardır.
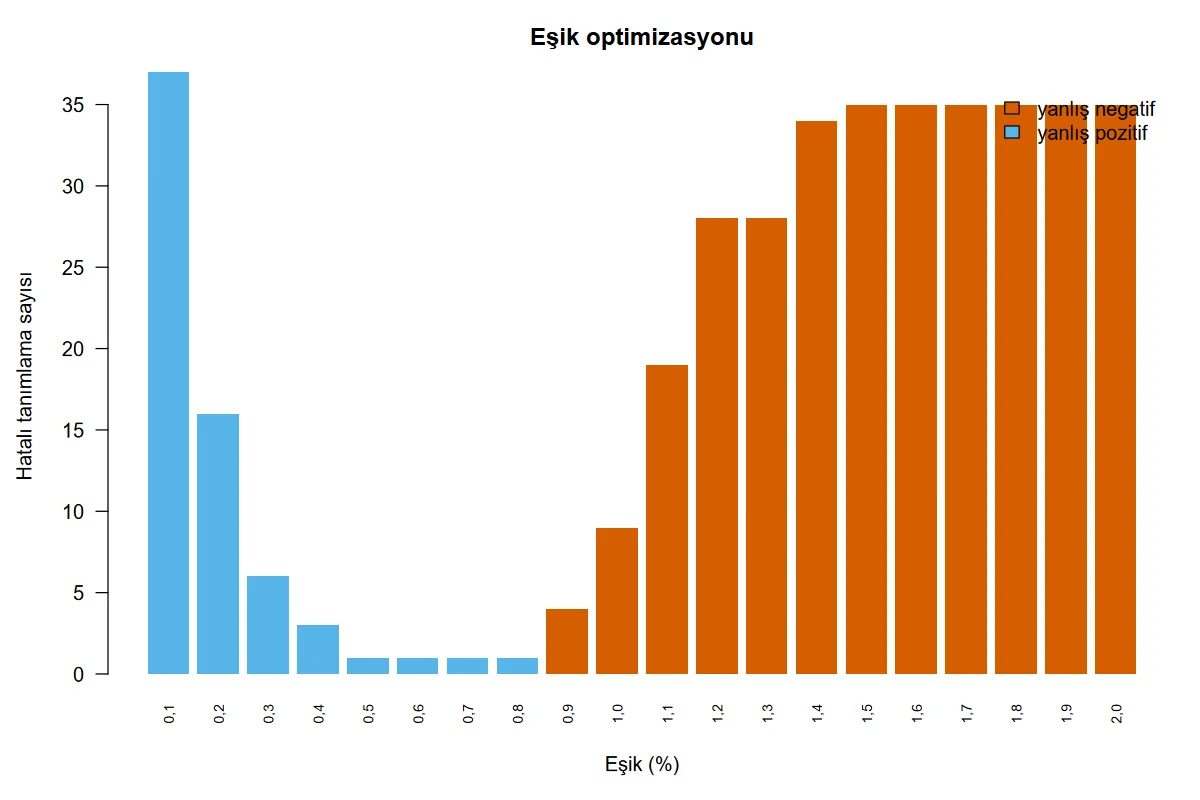
Adım 5 — Eşik taraması. Tanımlar her eşikte yeniden uygulanır:
| Eşik | Doğru pozitif | Yanlış negatif | Yanlış pozitif | Birikimli hata |
|---|---|---|---|---|
| 0,001 | 0 | 0 | 37 | 37 |
| 0,004 | 34 | 0 | 3 | 3 |
| 0,005–0,008 | 36 | 0 | 1 | 1 |
| 0,009 | 33 | 4 | 0 | 4 |
| 0,010 | 28 | 9 | 0 | 9 |
| 0,012 | 9 | 28 | 0 | 28 |
0{,}001 eşiğinde hiçbir dizinin komşusu yoktur (özdeş dizi çifti yoktur; tek farklı çiftlerin uzaklığı 0{,}0011775'tir) ve 37 bireyin hepsi yanlış pozitiftir. 0{,}005–0{,}008 aralığındaki tek hata dondaD053'tür: en yakın komşusu 0{,}008295 uzaklıktadır ve eşiğin dışında kalır. 0{,}009'da ilk tür dışı komşular eşiğe girer (0{,}008288). 0{,}010 eşiğindeki 28 doğru pozitif ve 9 yanlış negatif, eşik ölçütünün 28 "doğru" ve 9 "belirsiz" sonucuyla aynı bireylerdir. Yirmi eşiğin birikimli hataları toplamı 398'dir.
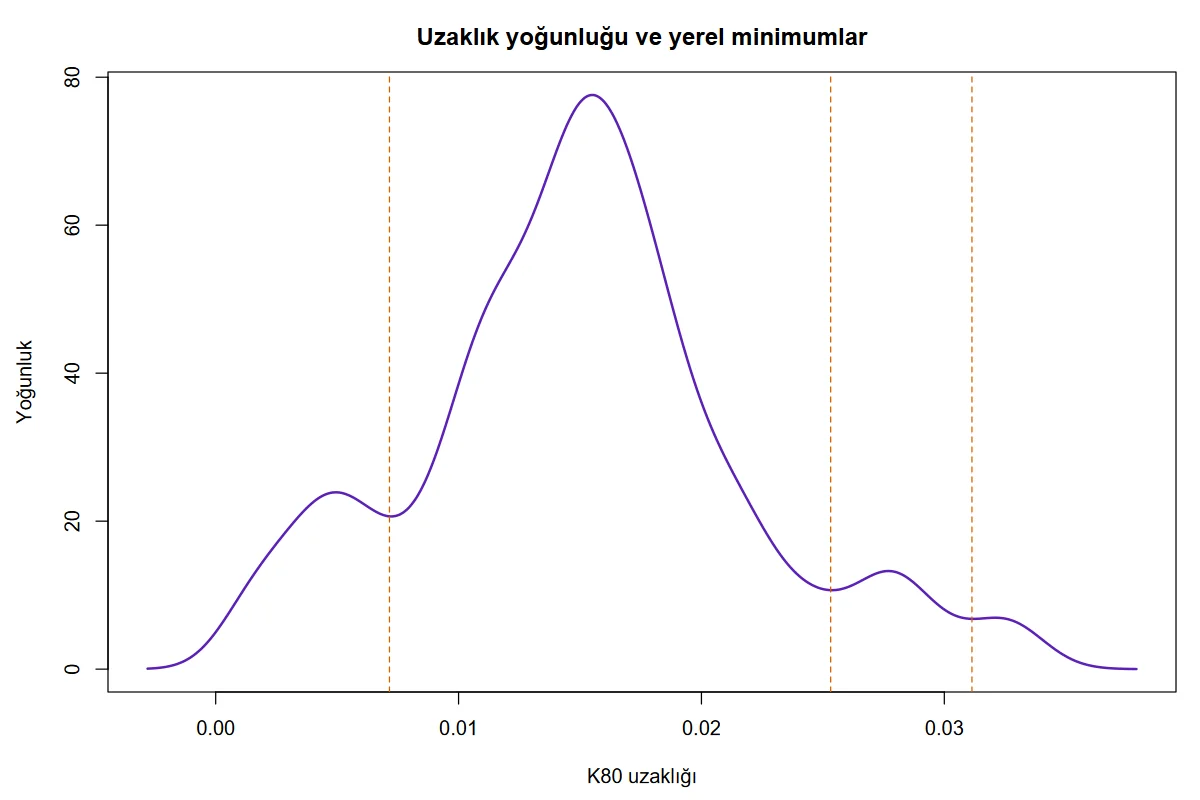
Adım 6 — Yerel minimumlar. 666 uzaklığın standart sapması ve çeyrekler arası genişliğinden h=0{,}0013277 bulunur. Izgara adımı 0{,}0000797'dir. Yoğunluğun üç yerel minimumu vardır; bildirilen değerler 0{,}0071545, 0{,}0253216 ve 0{,}0311382 (yüzde olarak 0{,}7154; 2{,}5322; 3{,}1138). Yoğunluğun en küçük olduğu ızgara noktaları bunların birer adım sağındadır (0{,}0072341 …). İlk minimum, eşik taramasının en iyi aralığının (0{,}005–0{,}008) içindedir: tür adları kullanılmadan bulunan eşik, tür adlarıyla bulunanla uyuşur. Öteki iki minimum, schau türünün öteki türlere uzaklıklarının (0{,}0228–0{,}0339) oluşturduğu seyrek kuyruktadır.
Adım 7 — Kümeleme. E_k=0{,}0071545'te tek bağlantılı kümeleme 7 MOTU verir. Dört türün ikisi birden çok MOTU'ya bölünür; hiçbir MOTU birden çok tür içermez; iki MOTU bir türle birebir örtüşür. opt seçeneğinde eşik (0{,}005+0{,}008)/2=0{,}0065 olur ve 8 MOTU çıkar. Tanımlama eşiği 0{,}02 alınıp kümeleme eşiği olarak kullanıldığında (çalıştırma 7) 2 MOTU kalır: schau tek başına, öteki üç tür tek MOTU'da. Aynı çalıştırmada eşik ölçütü yalnız 2 bireyi doğru tanımlar, 35'i "belirsiz"dir: %2 eşiği bu cinste üç türü birbirinden ayıramaz.
Adım 8 — Silme biçimi ve model. K2P ve tam silmeyle (çalıştırma 5) en büyük tür içi uzaklık 0{,}014339, en küçük türler arası uzaklık 0{,}007113 olur; ikili silmedeki değerlerden (0{,}016729; 0{,}008288) küçüktür, çünkü çıkarılan iki konum değişkendir. En iyi eşik aralığı 0{,}004–0{,}007'ye, ilk yerel minimum 0{,}0062495'e kayar. p uzaklığı ve tam silmeyle (çalıştırma 4) ilk yerel minimum 0{,}0062450, eşik ölçütünün doğru sayısı 25'tir.
Adım 9 — GMYC (çalıştırma 2). UPGMA ağacının 36 dallanma zamanı küme yüksekliklerinin yarısıdır. Sıfır modelin olabilirliği ölçekleme üssü p üzerinden en büyüklenir: \hat p=0{,}5952, \ell_0=273{,}1747. Şablonun seçtiği eşik zamanı -0{,}0028605'tir (şimdiden geriye doğru; K2P uzaklığı cinsinden 2\times0{,}0028605=0{,}0057). Bu, en eski dokuzuncu dallanmadır: eşiği 9 soy keser (9 varlık); bunların 8'i en az iki uçludur (8 küme), biri tek dizidir. \ell_{\text{GMYC}}=274{,}7214, \mathrm{OO}=2\times(274{,}7214-273{,}1747)=3{,}0935 ve p=P(\chi^2_2>3{,}0935)=0{,}2129: dallanma hızında anlamlı bir geçiş saptanmaz; 9 varlıklık bölünme sıfır modelden ayırt edilemez. Çok eşikli yöntem (çalıştırma 3) 21 varlık ve 5 küme bildirir (\mathrm{OO}=3{,}8663; p=0{,}1447); o da anlamlı değildir.
Adım 10 — Tekil türler (çalıştırma 8). Anoteropsis verisinde 22 türün 15'i tek bireylidir. Boşluk yalnız 18 birey için hesaplanabilir; 3'ünde boşluk yoktur. En yakın komşu 17 doğru, 16 yanlış verir; 16 yanlışın 15'i hiçbir zaman doğru çıkamayacak tekil bireylerdir. En iyi yakın eşleşme ve eşik ölçütü 11 doğru, 2 yanlış, 20 tanımsız; tekil bireyler sorgu olmaktan çıkarıldığında 11 doğru, 1 yanlış, 6 tanımsız kalır. Bu sayılar spider öğreticisinde aynı veri için yayımlanan sayılardır. Eşik taramasında en küçük birikimli hata 6'dır ve 0{,}015, 0{,}016, 0{,}017, 0{,}019, 0{,}020 eşiklerinde elde edilir (0{,}018'de hata 7'dir); ilk yerel minimum 0{,}020396, o eşikte MOTU sayısı 20'dir.
66.6.1 Doğrulama: MerQuR+, Python ve R
MerQuR+ sütunu şablonun tablolarından tam hassasiyetle alınmıştır (çalıştırmalar 1, 2, 4–8).
| Büyüklük | MerQuR+ | Python (bağımsız) | R (bağımsız) | En büyük fark | |
|---|---|---|---|---|---|
| Dolomedes, birey 1: en uzak tür içi | 0,01430476 | 0,01430476 | 0,01430476 | 7,1e−17 | ✓ |
| Birey 1: en yakın tür dışı | 0,0118812 | 0,0118812 | 0,0118812 | 1,0e−17 | ✓ |
| Σ en uzak tür içi (37 birey) | 0,43798368 | 0,43798368 | 0,43798368 | 2,8e−16 | ✓ |
| Σ en yakın tür dışı (37 birey) | 0,43277797 | 0,43277797 | 0,43277797 | 6,7e−16 | ✓ |
| aquat: tür içi ortalama | 0,00566505 | 0,00566505 | — | 8,8e−17 | ✓ |
| aquat: tür içi en büyük | 0,01068072 | 0,01068072 | 0,01068072 | 5,0e−17 | ✓ |
| aquat: türler arası en küçük | 0,00828837 | 0,00828837 | 0,00828837 | 5,7e−17 | ✓ |
| minor: tür içi ortalama | 0,01012366 | 0,01012366 | — | 6,9e−18 | ✓ |
| minor: tür içi en büyük | 0,016729 | 0,016729 | 0,016729 | 5,2e−17 | ✓ |
| minor: türler arası en küçük | 0,00828837 | 0,00828837 | 0,00828837 | 5,7e−17 | ✓ |
| schau: tür içi ortalama | 0,00235849 | 0,00235849 | — | 5,5e−17 | ✓ |
| schau: tür içi en büyük | 0,00235849 | 0,00235849 | 0,00235849 | 5,5e−17 | ✓ |
| schau: türler arası en küçük | 0,02281724 | 0,02281724 | 0,02281724 | 4,9e−17 | ✓ |
| Tür içi uzaklık ortalaması | 0,00843718 | 0,00843718 | 0,00843718 | 3,6e−17 | ✓ |
| Tür içi en büyük | 0,016729 | 0,016729 | 0,016729 | 5,2e−17 | ✓ |
| Türler arası ortalama | 0,01803661 | 0,01803661 | 0,01803661 | 4,9e−17 | ✓ |
| Türler arası en küçük | 0,00828837 | 0,00828837 | 0,00828837 | 5,7e−17 | ✓ |
| Barkod boşluğu olmayan birey | 24 | 24 | 24 | 0 | ✓ |
| En yakın komşu: doğru | 36 | 36 | 36 | 0 | ✓ |
| En iyi yakın eşleşme: doğru | 36 | 36 | 36 | 0 | ✓ |
| En iyi yakın eşleşme: yanlış | 1 | 1 | 1 | 0 | ✓ |
| Eşik ölçütü (%1): doğru | 28 | 28 | 28 | 0 | ✓ |
| Eşik ölçütü (%1): belirsiz | 9 | 9 | 9 | 0 | ✓ |
| Eşik 0,002: doğru pozitif | 21 | 21 | 21 | 0 | ✓ |
| Eşik 0,002: yanlış negatif | 0 | 0 | 0 | 0 | ✓ |
| Eşik 0,002: yanlış pozitif | 16 | 16 | 16 | 0 | ✓ |
| Eşik 0,004: doğru pozitif | 34 | 34 | 34 | 0 | ✓ |
| Eşik 0,004: yanlış negatif | 0 | 0 | 0 | 0 | ✓ |
| Eşik 0,004: yanlış pozitif | 3 | 3 | 3 | 0 | ✓ |
| Eşik 0,009: doğru pozitif | 33 | 33 | 33 | 0 | ✓ |
| Eşik 0,009: yanlış negatif | 4 | 4 | 4 | 0 | ✓ |
| Eşik 0,009: yanlış pozitif | 0 | 0 | 0 | 0 | ✓ |
| Eşik 0,010: doğru pozitif | 28 | 28 | 28 | 0 | ✓ |
| Eşik 0,010: yanlış negatif | 9 | 9 | 9 | 0 | ✓ |
| Eşik 0,010: yanlış pozitif | 0 | 0 | 0 | 0 | ✓ |
| Eşik 0,012: doğru pozitif | 9 | 9 | 9 | 0 | ✓ |
| Eşik 0,012: yanlış negatif | 28 | 28 | 28 | 0 | ✓ |
| Eşik 0,012: yanlış pozitif | 0 | 0 | 0 | 0 | ✓ |
| Σ birikimli hata (20 eşik) | 398 | 398 | 398 | 0 | ✓ |
| En küçük birikimli hata | 1 | 1 | 1 | 0 | ✓ |
| En iyi eşik (alt) | 0,005 | 0,005 | 0,005 | 0 | ✓ |
| En iyi eşik (üst) | 0,008 | 0,008 | 0,008 | 0 | ✓ |
| Yerel minimum 1 | 0,00715447 | 0,00715447 | 0,00715447 | 2,1e−17 | ✓ |
| Yerel minimum 2 | 0,02532155 | 0,02532155 | 0,02532155 | 1,4e−17 | ✓ |
| Yerel minimum 3 | 0,03113821 | 0,03113821 | 0,03113821 | 2,1e−17 | ✓ |
| MOTU sayısı (eşik: ilk yerel minimum) | 7 | 7 | 7 | 0 | ✓ |
| Birden çok MOTU'ya bölünen tür | 2 | 2 | 2 | 0 | ✓ |
| Türle birebir örtüşen MOTU | 2 | 2 | — | 0 | ✓ |
| Kümeleme eşiği (en iyi eşiklerin ortası) | 0,0065 | 0,0065 | 0,0065 | 8,7e−19 | ✓ |
| MOTU sayısı (o eşikte) | 8 | 8 | 8 | 0 | ✓ |
| Eşik 0,02: MOTU sayısı | 2 | 2 | 2 | 0 | ✓ |
| Eşik 0,02: birden çok tür içeren MOTU | 1 | 1 | 1 | 0 | ✓ |
| Eşik 0,02: eşik ölçütü belirsiz | 35 | 35 | 35 | 0 | ✓ |
| GMYC sıfır modeli log-olabilirliği (UPGMA) | 273,1747 | 273,17466716 | 273,17466716 | 1,2e−7 | ✓ |
| GMYC eşik zamanı | −0,00286047 | −0,00286047 | −0,00286047 | 2,5e−10 | ✓ |
| GMYC varlık sayısı (eşikte ağaç kesimi) | 9 | 9 | 9 | 0 | ✓ |
| GMYC küme sayısı | 8 | 8 | 8 | 0 | ✓ |
| p uzaklığı, tam silme: tür içi en büyük | 0,01415094 | 0,01415094 | 0,01415094 | 2,1e−17 | ✓ |
| p uzaklığı, tam silme: türler arası en küçük | 0,00707547 | 0,00707547 | 0,00707547 | 7,8e−18 | ✓ |
| p uzaklığı, tam silme: boşluğu olmayan birey | 24 | 24 | 24 | 0 | ✓ |
| p uzaklığı, tam silme: ilk yerel minimum | 0,00624501 | 0,00624501 | 0,00624501 | 1,1e−17 | ✓ |
| p uzaklığı, tam silme: eşik ölçütü doğru | 25 | 25 | 25 | 0 | ✓ |
| K2P, tam silme: tür içi en büyük | 0,01433894 | 0,01433894 | 0,01433894 | 2,4e−17 | ✓ |
| K2P, tam silme: türler arası en küçük | 0,0071133 | 0,0071133 | 0,0071133 | 1,1e−16 | ✓ |
| K2P, tam silme: boşluğu olmayan birey | 24 | 24 | 24 | 0 | ✓ |
| K2P, tam silme: ilk yerel minimum | 0,00624949 | 0,00624949 | 0,00624949 | 5,8e−17 | ✓ |
| K2P, tam silme: eşik ölçütü doğru | 25 | 25 | 25 | 0 | ✓ |
| Anoteropsis: boşluğu olmayan birey | 3 | 3 | 3 | 0 | ✓ |
| Anoteropsis: boşluğu hesaplanan birey | 18 | 18 | 18 | 0 | ✓ |
| Anoteropsis: en yakın komşu doğru | 17 | 17 | 17 | 0 | ✓ |
| Anoteropsis: en iyi yakın eşleşme doğru | 11 | 11 | 11 | 0 | ✓ |
| Anoteropsis: en iyi yakın eşleşme yanlış | 2 | 2 | 2 | 0 | ✓ |
| Anoteropsis: en iyi yakın eşleşme tanımsız | 20 | 20 | 20 | 0 | ✓ |
| Anoteropsis, tekilsiz: en iyi yakın eşleşme doğru | 11 | 11 | 11 | 0 | ✓ |
| Anoteropsis, tekilsiz: en iyi yakın eşleşme yanlış | 1 | 1 | 1 | 0 | ✓ |
| Anoteropsis, tekilsiz: en iyi yakın eşleşme tanımsız | 6 | 6 | 6 | 0 | ✓ |
| Anoteropsis: en küçük birikimli hata | 6 | 6 | 6 | 0 | ✓ |
| Anoteropsis: ilk yerel minimum | 0,02039586 | 0,02039586 | 0,02039586 | 6,9e−17 | ✓ |
| Anoteropsis: MOTU sayısı | 20 | 20 | 20 | 0 | ✓ |
| Anoteropsis: birden çok tür içeren MOTU | 2 | 2 | 2 | 0 | ✓ |
Ölçütü karşılayan: 80/80. Python: K2P açık formülle, ölçütler tanımlarından, yoğunluk kestirimi doğrusal kutulama ve FFT evrişiminin numpy uyarlamasıyla, UPGMA kendi döngüsüyle. R: K2P taban R ile, yoğunluk doğrudan çekirdek toplamıyla (FFT'siz), kümeleme hclust("single") + cutree ile; spider, ape::dist.dna ve splits kullanılmadan. GMYC satırlarında MerQuR+ sütunu tabloya yazılan yuvarlanmış metinden okunmuştur.
GMYC modelinin olabilirliği (\ell_{\text{GMYC}}) bağımsız olarak yeniden hesaplanmamıştır; sıfır modelin olabilirliği, eşik zamanının bir dallanma zamanı olduğu ve o zamanda ağacın kesilmesiyle elde edilen varlık ve küme sayıları doğrulanmıştır. Tabloya yazılan p=0{,}2129, yazılan olabilirlik oranının iki serbestlik dereceli ki-kare kuyruk olasılığıdır (0{,}21294).
66.7 Çıktıyı okuma
Örnek ayarın konsol metni ve tabloları (ilk satır bölünmüş, birey tablosu iki parçada verilmiş, birey ve eşik tabloları kısaltılmıştır):
DNA barkodlama: 37 dizi, 4 tür (0 tekil), uzunluk 850 bp; uzaklık K80 (ikili silme);
tanımlama eşiği 0,01
Barkod boşluğu olmayan birey: 24 / 37
En yakın komşu doğru tanımlama: 36 / 37 (%97,3)
En küçük birikimli hata 1; eşik(ler): 0,005; 0,006; 0,007; 0,008
Not: ASAP ve bPTP yöntemleri R'de bulunmadığından bu şablonda yoktur.

Tür içi ve türler arası uzaklıklar (tür başına)
  tur  n  tur_ici_ortalama  tur_ici_en_buyuk en_yakin_tur  turler_arasi_en_kucuk  bosluk
aquat 12            0.0057            0.0107        minor                 0.0083 -0.0024
donda  7            0.0078            0.0131        minor                 0.0083 -0.0048
minor 16            0.0101            0.0167        aquat                 0.0083 -0.0084
schau  2            0.0024            0.0024        donda                 0.0228  0.0205

Birey düzeyinde barkod boşluğu ve en yakın komşu
    ornek   tur  en_uzak_tur_ici  en_yakin_tur_disi  bosluk
minorD003 minor           0.0143             0.0119 -0.0024
aquatD001 aquat           0.0107             0.0143  0.0036
dondaD053 donda           0.0131             0.0083 -0.0048
schauD007 schau           0.0024             0.0228  0.0205
    ornek en_yakin_komsu_tur  en_yakin_komsu_dogru
minorD003              minor                  True
aquatD001              aquat                  True
dondaD053              minor                 False
schauD007              schau                  True

Tanımlama başarısı (birey sayısı; eşik 0,01)
   sonuc  en_yakin_komsu  en_iyi_yakin_eslesme  esik_olcutu
   doğru              36                    36           28
  yanlış               1                     1            0
belirsiz               0                     0            9
tanımsız               0                     0            0
Eşik optimizasyonu (threshOpt; Meyer ve Paulay 2005)
 esik  dogru_negatif  dogru_pozitif  yanlis_negatif  yanlis_pozitif  birikimli_hata
0.004              0             34               0               3               3
0.005              0             36               0               1               1
0.009              0             33               4               0               4
0.010              0             28               9               0               9

Uzaklık yoğunluğunun yerel minimumları (localMinima)
 sira  yerel_minimum    yuzde
    1       0.007154 0.715447
    2       0.025322 2.532155
    3       0.031138 3.113821

Eşik kümelemesi (tek bağlantılı; tclust)
                         olcut    deger
                kümeleme eşiği 0.007154
                   MOTU sayısı 7.000000
                    tür sayısı 4.000000
birden çok MOTU'ya bölünen tür 2.000000
    birden çok tür içeren MOTU 0.000000
    türle birebir örtüşen MOTU 2.000000
GMYC açıkken (çalıştırma 2) eklenen tablo:
GMYC tür sınırlandırması (tek eşik; Pons ve ark. 2006)
                       olcut                 deger
                        ağaç UPGMA (uzaklıklardan)
            ML varlık sayısı                     9
              ML küme sayısı                     8
                 eşik zamanı           -0,00286047
sıfır model log-olabilirliği              273,1747
       GMYC log-olabilirliği              274,7214
           olabilirlik oranı               3,09352
                           p                0,2129
| Öğe | Ne yazar | Nasıl yorumlanır |
|---|---|---|
| Özet satırı | Dizi, tür ve tekil tür sayısı, uzunluk, model, silme biçimi, eşik | Uzunluk hizalamanın ham uzunluğudur; tam silmede kullanılan konum sayısı daha azdır ve ayrıca yazılmaz. |
tur_ici_en_buyuk, turler_arasi_en_kucuk, bosluk |
Türün en uzak iki bireyi; türe en yakın yabancı birey; farkları | Eksi boşluk: türün içi, en yakın komşu türe olan uzaklığından daha değişkendir. Tek bireyli türde ilk ikisi boştur. |
en_uzak_tur_ici, en_yakin_tur_disi, bosluk (birey) |
66.1'deki iki terim ve farkı | Sıfır ya da eksi değer o bireyin eşikle tanımlanamayacağını gösterir. |
en_yakin_komsu_tur, en_yakin_komsu_dogru |
En yakın dizinin türü ve sorgunun türüyle aynı olup olmadığı | "False" satırları tek tek incelenir: yanlış ön tanım, melezleme ya da gerçekten ayrışmamış türler. |
| Tanımlama başarısı | Üç ölçütte dört sonucun birey sayısı | Ölçütler arasındaki fark bilgi taşır: en iyi yakın eşleşme yüksek, eşik ölçütü düşükse türler yakın ama en yakın komşu çoğunlukla doğrudur. |
…_tekilsiz sütunları |
Aynı sayımlar, tekil bireyler sorgu olarak sayılmadan | Kütüphanenin eksik örneklenmesinden gelen başarısızlığı ayırır. |
| Eşik optimizasyonu | Her eşikte dört sınıfın sayısı ve birikimli hata | Yanlış pozitif eşiğin dar, yanlış negatif geniş olduğunu gösterir; en küçük toplam en iyi eşiktir. |
| Yerel minimumlar | Uzaklık yoğunluğundaki çukurların yeri (oran ve yüzde) | İlki, tür adlarından bağımsız eşik adayıdır; ötekiler çoğu zaman cins içi derin ayrımlara karşılık gelir. |
| Eşik kümelemesi | Eşik, MOTU ve tür sayıları, üç uyum ölçüsü | MOTU sayısı tür sayısından çoksa eşik dardır ya da türlerde derin iç yapı vardır; azsa türler eşikle ayrılamıyordur. |
| GMYC | Ağacın kaynağı, varlık ve küme sayısı, eşik zamanı, iki olabilirlik, oran ve p | p büyükse ağaç tek bir süreçle açıklanır ve varlık sayısı yorumlanmaz. Eşik zamanı eksi işaretlidir (geçmişe doğru). |
Şekil 66.1. Barkod boşluğu (örnek ayar). Her çizgi bir bireydir: bir ucu en uzak tür içi, öteki ucu en yakın tür dışı uzaklıktır. Mavi çizgilerde tür dışı uzaklık üsttedir (boşluk var); turuncu çizgilerde alttadır (boşluk yok). Sağdaki iki uzun çizgi *schau* türünün iki bireyidir.
Şekil 66.2. Uzaklık yoğunluğu ve yerel minimumlar (örnek ayar). Kesikli çizgiler üç yerel minimumu gösterir; ilki (0,0072) tür içi ve türler arası uzaklıkların ayrıldığı çukurdur.
Şekil 66.3. Eşiğe göre yanlış pozitif (dar eşik) ve yanlış negatif (geniş eşik) sayıları (örnek ayar). Toplam, %0,5–%0,8 aralığında en küçüktür.
Şablon ayrıca tür içi ve türler arası uzaklıkların üst üste histogramını çizer; tanımlama eşiği kesikli dikey çizgiyle gösterilir.
Rapor cümlesi (örnek ayar):
Dolomedes cinsinin dört türüne ait 37 COI dizisinde (850 baz) Kimura iki parametreli uzaklıklar ikili silmeyle hesaplandı. Tür içi uzaklıkların en büyüğü %1,67, türler arası uzaklıkların en küçüğü %0,83 idi; 37 bireyin 24'ünde barkod boşluğu yoktu. En yakın komşu ölçütü bireylerin %97,3'ünü (36/37) doğru tanımladı; %1 eşiğinde eşik ölçütüyle 28 birey doğru, 9 birey belirsiz tanımlandı. Birikimli hata %0,5–%0,8 eşiklerinde en küçüktü (1 birey); uzaklık yoğunluğunun ilk yerel minimumu %0,72 idi ve bu eşikte diziler 7 moleküler birime ayrıldı. Uzaklıklardan kurulan ortalama bağlantılı ağaçta GMYC modeli tek dallanma süreçli sıfır modelden anlamlı biçimde ayrılmadı (olabilirlik oranı 3,09; p = 0,213).
66.8 Sık hatalar ve tuzaklar
- Barkod boşluğunu ortalamalardan okumak. Türler arası ortalama uzaklık, tür içi en büyük uzaklıktan büyük olabilir ve yine de bireylerin çoğunda boşluk bulunmayabilir (örnek veri). Karar tür ve birey tablolarındaki en küçük türler arası uzaklıktan verilir.
- Başarı oranını kütüphaneden bağımsız sanmak. Bütün ölçütler "biri dışarıda" düzeniyle çalışır: sorgunun türü kütüphanede başka bir bireyle temsil ediliyorsa tanımlanabilir. Tek bireyli türler başarıyı düşürür; tekilsiz sütunlar bu etkiyi ayırır, ama gerçek bir bilinmeyenin kütüphanede hiç bulunmayan bir türden gelme olasılığını ölçmez.
- En yakın komşu oranını tek başına raporlamak. Ölçüt her sorguya bir tür atar; kütüphanede olmayan bir türün bireyi de en yakın türe atanır. Eşikli ölçütlerin "tanımsız" sayısı bu yüzden birlikte verilir.
- Eşiği veriden seçip aynı veride başarı raporlamak. En iyi eşik, tür adları kullanılarak aynı diziler üzerinde bulunur; o eşikteki hata iyimserdir. Yerel minimum tür adlarını kullanmaz, ama o da aynı verinin dağılımından gelir.
- Model ya da silme biçimini değiştirip eşiği sabit tutmak. Tam silme, bir dizideki tek bir belirsiz baz yüzünden bütün çiftlerin uzaklığını değiştirir (66.6, Adım 8). Belirsiz bazı ya da eksik uçları çok olan veride ikili silme kullanılır; karşılaştırılan konum sayısının çiftten çifte değiştiği akılda tutulur.
- Sıfır boşluğu rastlantı sanmak. g=0 "boşluk yok" sayılır. p uzaklığında uzaklıklar fark sayısının katlarıdır ve tam eşitlikler sıktır; K2P'de seyrektir.
- Yuvarlak eşikle p uzaklığı kullanmak. Eşik ölçütü eşiğin altındaki dizileri toplar; en yakın komşusu tam eşikte olan sorgu eşik ölçütünde "tanımsız" sayılır (şablon sayısını not olarak yazar), en iyi yakın eşleşmede ise eşikteki komşu hâlâ tanımlamada kullanılır; iki ölçütün sonuçları bu bireylerde ayrışır. p uzaklığında eşik, olası fark oranlarının arasına düşecek biçimde seçilir (ör. 500 bazda 0{,}01 yerine 0{,}011).
- Farklı uzunlukta ya da kaymış dizilerle çalışmak. Şablon yalnız uzunluk eşitliğini denetler. Aynı uzunlukta ama hizası kaymış diziler büyük, anlamsız uzaklıklar üretir; hizalama gözle denetlenir.
- En iyi eşikleri bir aralık sanmak. Özet tablosu en küçük hatalı eşiklerin en küçüğünü ve en büyüğünü yazar; aradaki bütün eşikler en iyi olmayabilir (Anoteropsis: 0{,}015–0{,}017 ve 0{,}019–0{,}020; 0{,}018 değil). Konsol satırı eşikleri tek tek listeler;
optkümeleme eşiği iki ucun ortasıdır. - MOTU sayısını tür sayısı diye raporlamak. Tek bağlantılı kümeleme zincirleme birleştirir; tek bir ara dizi iki türü birleştirebilir, eksik örnekleme tek türü bölebilir. MOTU bir çalışma varsayımıdır.
- UPGMA ağacıyla GMYC sonucunu yayımlamak. 66.4.8'deki uyarı.
- GMYC'ye başka bir veri kümesinin ağacını vermek. Şablon ağaç ile dizileri eşleştirmez; sonuç tablosu verilen ağaca aittir ve yanındaki uzaklık tablolarıyla aynı dizileri anlatmayabilir.
- Anlamsız GMYC sonucundaki varlık sayısını yorumlamak. p büyükse en yüksek olabilirlikli eşik yalnız gürültüdür.
- Belirsizlik kodlarını gerçek baz sanmak.
Y,Rgibi kodlar uzaklıkta "bilinmeyen" sayılır ve konumu düşürür; çok sayıda belirsiz baz karşılaştırılan konum sayısını azaltır.
66.9 Uzman soruları
S1. En iyi yakın eşleşme ile eşik ölçütü neden bu kadar farklı sonuç veriyor?
İkisi aynı eşiği farklı kullanır. En iyi yakın eşleşme yalnız en yakın diziye (ya da eşit uzaklıktaki en yakın dizilere) bakar; eşik yalnız "bu kadar uzak bir eşleşme kabul edilir mi" sorusuna cevap verir. Eşik ölçütü eşiğin içindeki bütün dizileri toplar ve tek bir yabancı tür sonucu "belirsiz" yapar. Örnek veride en yakın komşular neredeyse hep doğru türdendir (36/37), ama %1'in içinde 9 birey için başka tür de vardır. Türlerin birbirine tür içi değişkenlik kadar yakın olduğu gruplarda eşik ölçütü kaçınılmaz olarak düşük çıkar; bu, yöntemin değil veri kümesinin özelliğidir (Meier ve ark., 2006).
S2. "Yanlış pozitif" ve "yanlış negatif" adları burada neyi anlatıyor?
Meyer ve Paulay'ın (2005) tanımıdır. Yanlış pozitif, eşiğin tür içi değişkenlikten dar olması yüzünden bir türün bireyinin kendi türüyle eşleşmemesi, yani var olmayan bir "yeni tür"ün ortaya çıkmasıdır (bölme). Yanlış negatif, eşiğin türler arası uzaklıktan geniş olması yüzünden farklı türlerin aynı sınırın içine düşmesidir (birleştirme). Adlar "yeni tür var" kararına göredir, "tanımlama doğru" kararına göre değil; bu yüzden küçük eşiklerde yanlış pozitif, büyük eşiklerde yanlış negatif çoğalır.
S3. Şablonun kümelemesi ABGD ya da ASAP ile aynı mı?
Hayır; yalnız çekirdek adımı ortaktır. ABGD (Puillandre ve ark., 2012) uzaklık dağılımındaki boşluğu bir koalesan modelinden türetilen sınırla arar ve bölünmeyi özyinelemeli olarak yeniler; ASAP (Puillandre ve ark., 2021) hiyerarşik kümelemenin her düzeyine bir puan verir. Şablon tek bir eşikte tek bağlantılı kümeleme yapar; eşik çekirdek yoğunluk kestiriminin ilk çukurundan, eşik taramasından ya da kullanıcıdan gelir. Ortak olan, eşikten yakın dizilerin zincirleme birleştirilmesidir; farklı olan eşiğin nasıl seçildiğidir. PTP (Zhang ve ark., 2013) ise uzaklık değil, dal uzunlukları yer değiştirme sayısı olan bir ağaç ister. Bu yöntemler şablonda yoktur ve çıktıda not olarak belirtilir.
S4. Tam silme ile ikili silme arasındaki fark bu veride neden bu kadar görünür?
850 konumun yalnız ikisi bir dizide belirsizdir; ama ikisi de değişken konumlardır. Tam silme bu iki konumu bütün çiftlerden çıkarır ve onlarda ayrışan her çiftin uzaklığı bir ya da iki fark kadar küçülür: en büyük tür içi uzaklık 0{,}0167'den 0{,}0143'e iner. Tür düzeyindeki uzaklıklar birkaç farktan oluştuğu için tek bir konum yüzde onun üzerinde değişim yaratır. Kural: belirsiz bazlar az sayıda dizide toplanmışsa ikili silme bilgiyi korur; eksikler belirli konumlarda yığılmışsa (kısa okunmuş uçlar) iki yol benzer sonuç verir.
S5. Yerel minimum neden yoğunluğun en küçük olduğu noktadan bir adım solda bildiriliyor?
spider::localMinima, minimum sınamasının sonucunu bir kısa dizide tutar ve bu dizinin sırasını ızgaranın sırasıyla bir kaydırarak eşleştirir; bildirilen değer minimumdan önceki ızgara noktasıdır. Fark (\max-\min+6h)/511'dir; örnek veride 0{,}00008, yani bant genişliğinin yaklaşık on yedide biri. Paketin öğreticisindeki yayımlanmış değer (%0,7154469) de bu kuralla elde edilmiştir ve şablon aynı sayıyı verir. Eşik olarak kullanımda fark, bir dizi çiftinin tam bu iki değer arasında bir uzaklığı varsa sonucu değiştirebilir; örnek veride böyle bir çift yoktur.
S6. GMYC'nin olabilirlik oranı testi neden iki serbestlik dereceli?
splits paketinin özet işlevinin kuralıdır ve şablon aynısını kullanır. Tek eşikli model sıfır modele bir eşik zamanı, ikinci bir hız ve ikinci bir ölçekleme üssü ekler. Eşik zamanı sürekli bir parametre gibi değil, ağacın düğümleri üzerinde kesikli bir arama olarak kestirildiğinden olağan ki-kare yaklaşımı tam geçerli değildir; iki serbestlik derecesi, yöntemin gözden geçirilmiş biçiminde (Fujisawa ve Barraclough, 2013) ve splits paketinde kullanılan yaklaşık seçimdir. p değeri kaba bir gösterge sayılır; sınırdaki sonuçlar benzetimle ya da farklı ağaçlarla sınanır.
S7. Bütün türler tek bireyli olursa ne olur?
Tür içi uzaklık ve barkod boşluğu hesaplanamaz; şablon bunu not olarak yazar ve tür tablosunda yalnız en küçük türler arası uzaklıkları verir. En yakın komşu ölçütünde bütün bireyler "yanlış"tır; eşik taramasında bütün eşleşmeyenler doğru negatif, eşleşenler yanlış negatif olur. Tür adlarından bağımsız iki sonuç, yerel minimumlar ve MOTU sayısı, anlamını korur. Böyle bir veri tanımlama başarısını değil, yalnız türlerin birbirinden ne kadar uzak olduğunu gösterebilir.
S8. Barkod boşluğu yoksa tür tanımlama olanaksız mı?
Hayır. Boşluk, tek bir eşikle bütün türlerin ayrılabilmesinin koşuludur. Örnek veride 24 bireyde boşluk yoktur, ama 36 birey en yakın komşusuyla doğru tanımlanır: türler birbirine yakındır, yine de çoğu birey kendi türünden bir bireye yabancı türden bir bireye olduğundan daha yakındır. Boşluğun yokluğu eşikli ölçütleri ve eşik kümelemesini zayıflatır (9 "belirsiz", 7 MOTU); en yakın komşuya dayalı ya da karaktere dayalı tanımlamayı aynı ölçüde etkilemez. Collins ve Cruickshank (2013) boşluğun tanımlama başarısının ne gerekli ne yeterli koşulu olduğunu vurgular.
66.10 Kaynaklar
- Brown, S. D. J., Collins, R. A., Boyer, S., Lefort, M.-C., Malumbres-Olarte, J., Vink, C. J., & Cruickshank, R. H. (2012). Spider: An R package for the analysis of species identity and evolution, with particular reference to DNA barcoding. Molecular Ecology Resources, 12(3), 562–565. https://doi.org/10.1111/j.1755-0998.2011.03108.x
- Collins, R. A., & Cruickshank, R. H. (2013). The seven deadly sins of DNA barcoding. Molecular Ecology Resources, 13(6), 969–975. https://doi.org/10.1111/1755-0998.12046
- Ezard, T., Fujisawa, T., & Barraclough, T. G. (2021). splits: SPecies' LImits by Threshold Statistics (R paketi, sürüm 1.0-20). R-Forge.
- Fujisawa, T., & Barraclough, T. G. (2013). Delimiting species using single-locus data and the generalized mixed Yule coalescent approach: A revised method and evaluation on simulated data sets. Systematic Biology, 62(5), 707–724. https://doi.org/10.1093/sysbio/syt033
- Hebert, P. D. N., Cywinska, A., Ball, S. L., & deWaard, J. R. (2003). Biological identifications through DNA barcodes. Proceedings of the Royal Society of London. Series B: Biological Sciences, 270(1512), 313–321. https://doi.org/10.1098/rspb.2002.2218
- Kimura, M. (1980). A simple method for estimating evolutionary rates of base substitutions through comparative studies of nucleotide sequences. Journal of Molecular Evolution, 16(2), 111–120. https://doi.org/10.1007/BF01731581
- Meier, R., Shiyang, K., Vaidya, G., & Ng, P. K. L. (2006). DNA barcoding and taxonomy in Diptera: A tale of high intraspecific variability and low identification success. Systematic Biology, 55(5), 715–728. https://doi.org/10.1080/10635150600969864
- Meier, R., Zhang, G., & Ali, F. (2008). The use of mean instead of smallest interspecific distances exaggerates the size of the "barcoding gap" and leads to misidentification. Systematic Biology, 57(5), 809–813. https://doi.org/10.1080/10635150802406343
- Meyer, C. P., & Paulay, G. (2005). DNA barcoding: Error rates based on comprehensive sampling. PLoS Biology, 3(12), e422. https://doi.org/10.1371/journal.pbio.0030422
- Monaghan, M. T., Wild, R., Elliot, M., Fujisawa, T., Balke, M., Inward, D. J. G., Lees, D. C., Ranaivosolo, R., Eggleton, P., Barraclough, T. G., & Vogler, A. P. (2009). Accelerated species inventory on Madagascar using coalescent-based models of species delineation. Systematic Biology, 58(3), 298–311. https://doi.org/10.1093/sysbio/syp027
- Paradis, E., & Schliep, K. (2019). ape 5.0: An environment for modern phylogenetics and evolutionary analyses in R. Bioinformatics, 35(3), 526–528. https://doi.org/10.1093/bioinformatics/bty633
- Pons, J., Barraclough, T. G., Gomez-Zurita, J., Cardoso, A., Duran, D. P., Hazell, S., Kamoun, S., Sumlin, W. D., & Vogler, A. P. (2006). Sequence-based species delimitation for the DNA taxonomy of undescribed insects. Systematic Biology, 55(4), 595–609. https://doi.org/10.1080/10635150600852011
- Puillandre, N., Brouillet, S., & Achaz, G. (2021). ASAP: Assemble species by automatic partitioning. Molecular Ecology Resources, 21(2), 609–620. https://doi.org/10.1111/1755-0998.13281
- Puillandre, N., Lambert, A., Brouillet, S., & Achaz, G. (2012). ABGD, Automatic Barcode Gap Discovery for primary species delimitation. Molecular Ecology, 21(8), 1864–1877. https://doi.org/10.1111/j.1365-294X.2011.05239.x
- Ratnasingham, S., & Hebert, P. D. N. (2007). BOLD: The Barcode of Life Data System (http://www.barcodinglife.org). Molecular Ecology Notes, 7(3), 355–364. https://doi.org/10.1111/j.1471-8286.2007.01678.x
- Srivathsan, A., & Meier, R. (2012). On the inappropriate use of Kimura-2-parameter (K2P) divergences in the DNA-barcoding literature. Cladistics, 28(2), 190–194. https://doi.org/10.1111/j.1096-0031.2011.00370.x
- Vink, C. J., & Dupérré, N. (2010). Pisauridae (Arachnida: Araneae). Fauna of New Zealand, 64. Manaaki Whenua Press.
- Zhang, J., Kapli, P., Pavlidis, P., & Stamatakis, A. (2013). A general species delimitation method with applications to phylogenetic placements. Bioinformatics, 29(22), 2869–2876. https://doi.org/10.1093/bioinformatics/btt499