65. Bağlantı dengesizliği (D, D', r, r², χ²), uzaklıkla LD azalımı ve EM haplotip frekansları
Şablon kimliği: bag_dengesizligi · Kategori: genetik · Dil: R · Dosya: pro/sablonlar/genetik/bag_dengesizligi.R (satır 1–259; üstbilgi 1–64) · Örnek veri: _ornek/mbp2_snp.csv · Paketler: yalnız taban R (stats, graphics, grDevices)
65.1 Ne işe yarar
Şablon, iki alelli lokus (SNP) çiftleri arasındaki bağlantı dengesizliğini (linkage disequilibrium, LD) ölçer. Cevapladığı soru şudur: "Bu iki lokusun alelleri aynı kromozom üzerinde, frekanslarının çarpımından beklenenden daha sık (ya da daha seyrek) birlikte mi bulunuyor?"
Birinci lokusun alelleri A ve a, ikincinin B ve b olsun. İki lokus bağımsızsa AB haplotipinin (aynı kromozom üzerindeki alel çiftinin) frekansı alel frekanslarının çarpımıdır. Sapmanın ölçüsü:
- p_{AB}: A ve B alellerini birlikte taşıyan kromozomların (haplotiplerin) oranı.
- p_A, p_B: iki alelin ayrı ayrı frekansları.
- D>0: A ile B beklenenden sık birlikte; D<0: beklenenden seyrek birlikte (A daha çok b ile bulunur). D=0: bağlantı dengesi.
Güçlük şudur: diploit bireyde genotip iki kromozomun toplamıdır ve hangi alelin hangi kromozomda olduğu (faz) çoğu zaman bilinmez. İki lokusta da heterozigot olan birey (Aa\,Bb) ya AB + ab ya da Ab + aB haplotiplerini taşır; genotipten hangisi olduğu anlaşılmaz. Şablon haplotip frekanslarını bu belirsizlik altında en çok olabilirlik ölçütünde kestirir: olabilirlik denkleminin köklerini çözer ve sonucu beklenti–en büyükleme (EM) algoritmasıyla karşılaştırır; ardından D, Lewontin'in D''sü, korelasyon r, r^2, \chi^2 testi ve çoklu test düzeltmeli p değerlerini verir. Lokus konumları girilirse r^2'nin uzaklıkla azalışına Hill ve Weir (1988) beklentisini uydurur.
LD'nin popülasyon genetiğindeki yeri ve yorumu için Slatkin'in (2008) derlemesine bakılabilir.
Ne zaman kullanılır? Bir aday gen ya da bölgedeki SNP'lerin birbirini ne ölçüde temsil ettiğini görmek (etiket SNP seçimi); bir ilişkilendirme sinyalinin komşu işaretleyicilere ne kadar yayıldığını değerlendirmek; LD'nin uzaklıkla ne kadar hızlı söndüğünü betimlemek; popülasyon başına LD örüntülerini karşılaştırmak.
Ne zaman kullanılmaz?
- Binlerce SNP'nin LD'ye göre seyreltilmesi (budama) ve akrabalık süzgeci:
ld_budama_ibd(Bölüm 81). Bu şablon her çifti ayrı ayrı çözer; L lokusta L(L-1)/2 çift vardır. - Çok alelli işaretleyiciler (mikrosatellit): şablon bunları atlar. Lokus içi denge için
hardy_weinberg(Bölüm 78), lokuslar üstü çeşitlilik içingenetik_cesitlilik(Bölüm 73). - Üç ve daha çok lokusun ortak haplotipleri: şablon yalnız iki lokuslu haplotip kestirir.
- Fenotiple ilişkilendirme:
gwas(Bölüm 76),vaka_kontrol_genetik(Bölüm 93). - Örnek açıkça farklı popülasyonların karışımıysa ve popülasyon bilgisi yoksa: önce
populasyon_yapisi(Bölüm 84); karışım, bağımsız lokuslar arasında bile LD üretir.
Temel programla ilişki. Temel programda bağlantı dengesizliği analizi yoktur. 0/1/2 kodlu iki SNP sütunu arasındaki Pearson korelasyonu temel programda hesaplanabilir; bu, haplotip korelasyonu r'nin fazsız bir yaklaşığıdır (bileşik LD) ve en çok olabilirlik kestirimiyle aynı değeri vermez (65.9 S5).
65.2 Şablonun girdileri
Form, üstbilgideki sekiz [[param]] bloğundan kurulur (bag_dengesizligi.R:10–63).
| Alan (form etiketi) · ad | Tür · sekme | Varsayılan | Geçerli değerler | Kodda etkisi |
|---|---|---|---|---|
Lokus sütunları · lokuslar |
sütunlar · Değişkenler | yok (en az 2 sütun) | metin a1/a2 ya da sayısal 0/1/2 |
Bütün ikili çiftler çözülür (73–74, 176). |
Popülasyon · populasyon |
kategorik sütun · Değişkenler | boş | herhangi sütun ya da boş | LD her popülasyonda ayrı; boşsa tek grup "Tümü" (75–80, 162). |
Alel ayırıcısı · ayirici |
metin · Değişkenler | / |
boş olmayan metin | Metin genotipi iki alele böler (77, 93; ortak ayrıştırıcı, Bölüm 1.5). |
Eksik genotip kodları · eksik_kodlar |
metin · Değişkenler | boş | virgülle ayrılmış kodlar | Boşsa varsayılan liste (boş hücre, NA, 0, 00, 000, ?, -, ., -9) eksik sayılır; doluysa alandaki kodlar bu listenin yerine geçer (boş hücre ve NA her zaman eksik); baş ve son boşluk kırpılır, boş kodlar atılır (satır 69–70; Bölüm 1.5). |
Lokus konumları · konumlar |
metin · Değişkenler | boş | lokus sayısı kadar sayı; virgülle (0, 1.5, 3) ya da, ondalık virgül kullanılıyorsa, noktalı virgülle (0; 1,5; 3) |
Çift uzaklığı ve azalım eğrisi (81–91, 188, 235–258). |
Çoklu test düzeltmesi · duzeltme |
seçim · Seçenekler | holm |
holm, BH, bonferroni, hochberg, hommel, BY, none |
p.adjust(method =) (202–203). |
EM yakınsama ölçütü · em_tol |
ondalık · Gelişmiş | 10^{-13} | 10^{-16}–10^{-3} | EM'de ardışık iki \hat p_{AB} farkı bu değerin altına inince yineleme durur (124, 158). |
EM en çok yineleme · em_en_cok |
tamsayı · Gelişmiş | 10000 | 10–1000000 | EM yineleme üst sınırı; ulaşılırsa not yazılır (126, 159, 217–219). |
Örnek ayar (ornek_param, satır 9): lokuslar = ["c104t", "a1691g", "c2249t"], konumlar = "-104, 1691, 2249". Öteki alanlar varsayılandadır.
Şablonun kendi denetimleri.
| Koşul | İleti (özet) | Satır |
|---|---|---|
| Veri açık değil | "Önce Veri sekmesinde bir veri açın." | 72 |
| İkiden az lokus | "En az iki lokus seçin." | 74 |
| Popülasyon sütunu lokus olarak da seçilmiş | "Popülasyon sütunu lokus olarak da seçilemez." | 76 |
| Konum sayısı lokus sayısına eşit değil ya da sayı olmayan öğe var | "Konumlar lokus sayısı kadar (…) sayı olmalı ve virgülle ayrılmalı (…). Ondalık virgül kullanılıyorsa sayılar noktalı virgülle ayrılmalıdır (ör. '0; 1,5; 3')." | 87–89 |
| Genotip okuma hataları (hepsi eksik, 0/1/2 dışı sayı, ayırıcısız ya da üç parçalı genotip, boş ayırıcı) | Ortak ayrıştırıcının iletileri (Bölüm 1.5) | 93 |
Alellerinden yalnız biri eksik kodu olan genotip (ör. 0/1) |
"'…' lokusunda … genotipte alellerden yalnız biri eksik kodu ('0'; ör. '0/1') …" (Bölüm 1.5) | 93 |
| Çözülebilecek hiçbir çift kalmadı | "…iki alelli ve polimorfik … lokus çifti yok." | 200–201 |
Atlananlar (durdurmaz, not yazılır; satır 199). Bir popülasyonda tek alelli lokus (168); ikiden çok alelli lokus (169); ortak genotipli birey sayısı 2'den az olan çift (179); ortak bireylerde lokuslardan biri tek alelli kalan çift (180–182). Popülasyonu boş bireyler çıkarılır ve sayıları yazılır (79–80).
Eksik değer. Genotipler genetik şablonlarının ortak ayrıştırıcısıyla okunur (satır 69–70, 93; Bölüm 1.5). Eksik genotip boş hücredir ya da NA, 0, 00, 000, ?, -, ., -9 kodlarından biridir; ayırıcılı yazımda iki alelin ikisi de eksik kodu olmalıdır (0/0). Alellerinden yalnız biri eksik kodu olan genotip (0/1, 0/143) çalıştırmayı durdurur: 0 gerçek bir alelin adıysa alel başka bir adla yeniden kodlanır. Eksik genotip kodları alanı doluysa (virgülle ayrılmış, ör. .) alandaki kodlar bu listenin yerine eksik sayılır; boş hücre ve NA her zaman eksiktir ve yarı eksik durma kuralı yeni listeye göre işler: VCF tarzı 0/1 kodlu veride alana yalnız . yazılırsa 0 gerçek alel olur (satır 69–70). Bütün lokuslar okunduktan sonra, eksik sayılan genotip varsa, okuma dökümü konsola yazılır (satır 94): "Genotip okuma: 10 lokusta 1410 genotipin 6 tanesi eksik sayıldı (boş hücre: 4; eksik kodu: 2; …)". Eksikler çift bazında atılır (satır 178): bir çiftin n'si, iki lokusta da genotipi olan birey sayısıdır ve çiftten çifte değişebilir. Alel frekansları da her çift için bu ortak bireylerden yeniden hesaplanır (103).
65.3 Örnek veri
Dosya: _ornek/mbp2_snp.csv; 100 birey, 5 sütun. genetics paketinin LD belgesindeki (Warnes ve ark.) örnek: MBP2 genindeki üç SNP. Eksik genotip yoktur.
| Değişken | Rol | Tür (veri sekmesi) | Özet |
|---|---|---|---|
birey |
kullanılmaz | sayısal | Kimlik. |
delta_bmi |
kullanılmaz | sayısal | Sürekli bir özellik. |
c104t |
Lokus 1 (konum −104) | kategorik | Aleller C 0,685; T 0,315. |
a1691g |
Lokus 2 (konum 1691) | kategorik | Aleller A 0,575; G 0,425. |
c2249t |
Lokus 3 (konum 2249) | kategorik | Aleller T 0,915; C 0,085. |
Arayüzdeki düzey sırası bu şablonda sonucu etkilemez; kod genotip metnini alellerine kendisi ayırır. Sonucu belirleyen iki sıra vardır: lokus seçim sırası (konumlar bu sırayla eşlenir; çiftler bu sırayla kurulur) ve çoğunluk aleli (aşağıda).
A ve B her lokusun çoğunluk alelidir
Şablon her lokusta, her popülasyon içinde, en sık görülen aleli "birinci alel" sayar; eşitlikte adı alfabetik olarak önce gelen alınır (satır 170). D ve r'nin işareti bu seçime göredir: D<0, iki çoğunluk alelinin birlikte beklenenden seyrek bulunduğunu söyler. Bir lokusun çoğunluk aleli popülasyondan popülasyona değişiyorsa aynı haplotip ilişkisi iki popülasyonda ters işaretle görünür; işaretler haplotip tablosundaki alel adlarıyla birlikte okunur. D', r^2 ve \chi^2 işaretten bağımsızdır.
Bu bölümde kullanılan çalıştırmalar: (1) örnek ayar; (2) örnek veri, konum yok, düzeltme yok; (3) ek sınama verisi dogrulama/bag_dengesizligi/ld_cok.csv: iki popülasyon (Dag 80, Ova 60 birey), konumları 0–150 kb arasında sekiz SNP (dördü 0/1/2, dördü metin kodlu), bir popülasyonda tek alelli mono ve üç alelli tri lokusu, birkaç eksik genotip; düzeltme BH; (4) örnek ayar, EM en çok yineleme 10; (5) dogrulama/bag_dengesizligi/ld_cokkok.csv: olabilirliği iki tepeli olan tek bir çift (17 birey, 14'ü çift heterozigot).
65.4 Yöntem: formüller ve hesap adımları
Hesap sırası, her popülasyon için: (1) her lokusta çoğunluk alelini bul, genotipleri bu alelin kopya sayısına (0, 1, 2) çevir; (2) her lokus çifti için ortak bireyleri al; (3) \hat p_{AB}'nin en çok olabilirlik kestirimini bul (olabilirlik denkleminin kökleri ve EM); (4) D, D', r, r^2, \chi^2, p; bütün çiftler bittikten sonra (5) p değerlerini düzelt; konum verilmişse (6) Hill–Weir eğrisini uydur.
65.4.1 Fazı bilinen ve bilinmeyen genotipler
İki lokusun genotipleri dokuz bileşim verir. Sekizinde faz bellidir: en az bir lokus homozigotsa bireyin iki haplotipi tek biçimde yazılır (AA\,Bb → AB + Ab). Yalnız çift heterozigot (Aa\,Bb) belirsizdir.
| BB | Bb | bb | |
|---|---|---|---|
| AA | AB, AB | AB, Ab | Ab, Ab |
| Aa | AB, aB | AB+ab ya da Ab+aB | Ab, ab |
| aa | aB, aB | aB, ab | ab, ab |
Kod iki sayı tutar (satır 104–105): fazı bilinen bireylerdeki AB haplotiplerinin sayısı k_{AB} (ab_bilinen: AA\,BB iki, AA\,Bb ve Aa\,BB bir tane verir) ve çift heterozigot sayısı n_{hh} (nhh).
65.4.2 Haplotip frekansının en çok olabilirlik kestirimi
Alel frekansları \hat p_A, \hat p_B doğrudan sayılır (faz gerekmez); bilinmeyen tek büyüklük p_{AB}'dir, öteki üç haplotip frekansı ondan çıkar: p_{Ab}=p_A-p_{AB}, p_{aB}=p_B-p_{AB}, p_{ab}=1-p_A-p_B+p_{AB}. Hiçbir frekans negatif olamayacağından p_{AB} kabul edilebilir bir aralıkta kalır: [\hat p_A\hat p_B+D_{\min},\ \hat p_A\hat p_B+D_{\max}] (65.4.3).
Log-olabilirlik. Rastgele çiftleşme altında dokuz genotip sınıfının olasılıkları haplotip frekanslarının çarpımlarıdır; n_g sınıfların gözlenen sayılarıdır (kod: say ve ll, satır 109–115):
| BB | Bb | bb | |
|---|---|---|---|
| AA | p_{AB}^2 | 2\,p_{AB}\,p_{Ab} | p_{Ab}^2 |
| Aa | 2\,p_{AB}\,p_{aB} | 2\,(p_{AB}\,p_{ab}+p_{Ab}\,p_{aB}) | 2\,p_{Ab}\,p_{ab} |
| aa | p_{aB}^2 | 2\,p_{aB}\,p_{ab} | p_{ab}^2 |
Fazı bilinen haplotipler toplanınca, p_{AB}'ye bağlı olmayan bir sabit dışında:
- k_{AB}, k_{Ab}, k_{aB}, k_{ab}: fazı bilinen bireylerdeki dört haplotipin sayıları; n_{hh}: çift heterozigot sayısı.
- Son terim: çift heterozigotun iki olası fazının olasılıkları toplamı. Olabilirliği p_{AB}'nin tek tepeli olmayabilen bir işlevi yapan bu terimdir.
- Bu bölümde verilen log-olabilirlik değerleri ikinci yazımdadır (sabit atılmıştır); iki nokta arasındaki fark iki yazımda aynıdır.
EM adımı. EM her yinelemede çift heterozigotları iki olası faza, o andaki frekansların oranında böler (kod: em, satır 116–129):
- n: çiftin ortak genotipli birey sayısı; 2n: kromozom sayısı.
- Kesir (B adımı): bir çift heterozigotun AB + ab fazında olma olasılığı; rastgele çiftleşme altında iki fazın olasılıkları 2p_{AB}p_{ab} ve 2p_{Ab}p_{aB} ile orantılıdır.
- Köşeli ayraç (EB adımı): AB haplotiplerinin beklenen sayısı; 2n'ye bölünce yeni frekans.
Yineleme, ardışık iki değer arasındaki fark em_tol'un altına inince (satır 124) ya da em_en_cok'a ulaşınca (126) durur. Her adımda değer kabul edilebilir aralığa kırpılır (123). Başlangıç bağlantı dengesiyse (p_{AB}^{(0)}=\hat p_A\hat p_B, D=0) ilk adımda oran her zaman 1/2'dir.
Neden EM, neden doğrudan sayım değil?
Çift heterozigotlar atılırsa haplotip frekansları yanlı olur (en bilgi verici bireyler onlardır); iki faza eşit bölünürse D sıfıra çekilir. EM, eksik bilgiyi (faz) olabilirliği en büyükleyecek biçimde tamamlar ve her adımda olabilirliği artırır (Dempster ve ark., 1977; Excoffier ve Slatkin, 1995). Çift heterozigot yoksa (n_{hh}=0) kestirim doğrudan sayımdır ve EM iki adımda biter.
Olabilirlik denklemi (kübik). EM'in sabit noktaları (p^{(t+1)}=p^{(t)}=p) olabilirliğin durağan noktalarıdır. w=p\,p_{ab} ve z=w+p_{Ab}\,p_{aB} yazılıp sabit nokta koşulu paydadan kurtarılırsa (Hill, 1974; Gaunt ve ark., 2007):
z ve w yerine konup p'nin kuvvetlerine göre toplanınca p'de üçüncü dereceden bir denklem çıkar (satır 133–135):
- N=2n: kromozom sayısı; u=1-2\hat p_A-2\hat p_B.
- z: bir çift heterozigotun olasılığının yarısı; w/z: EM adımındaki kesir.
- Denklemin en çok üç gerçek kökü vardır. Kabul edilebilir aralıkta tek kök varsa olabilirlik tek tepelidir; üç kök varsa iki tepe ve aralarında bir çukur vardır. En büyük, aralığın bir ucunda da olabilir (bir haplotipin frekansı sıfır).
Çözümün seçimi. Olabilirlik çok tepeli olabildiğinden tek bir başlangıçtan yürütülen EM, başlangıcına en yakın tepeye gider; bu tepe en yükseği olmayabilir. Özel bir durum: fazı bilinen haplotipler iki fazı eşit destekliyorsa D=0 çukurun kendisidir ve dengeden başlayan EM ilk adımda yerinde kalır. Şablon bu yüzden kestirimi şöyle bulur (ld_em, satır 101–156):
- Kübik denklem
polyrootile çözülür (135); gerçek köklerden kabul edilebilir aralıkta olanlar ve aralığın iki ucu adaydır (136–137). Log-olabilirliği en büyük aday seçilir (138–139). - Seçilen adaydan EM yürütülür; bu, kökü aynı tepe içinde
em_tolhassasiyetine inceltir (141–142). - EM ayrıca üç başlangıçtan çalıştırılır: D=0, D=0{,}99\,D_{\min} ve D=0{,}99\,D_{\max} (130–132). Bunların en iyisinin log-olabilirliği 1. ve 2. adımın çözümünden yüksekse o alınır (143).
Sonuç, kübiğin kökleri, aralığın uçları ve üç başlangıçlı EM arasından log-olabilirliği en büyük olan noktadır. Üç durum çıktıda bildirilir (satır 210–219):
| Durum | Koşul (kod) | Çıktıdaki satır |
|---|---|---|
| Olabilirlik çok tepeli | D=0'dan başlayıp yakınsayan EM, seçilen çözümden 10^{-6}'dan uzak bir noktada durmuştur (ilk_ayni, 140) |
"Not: … lokus çiftinde dengeden (D = 0) başlayan EM olabilirliğin en yüksek tepesine ulaşmadı (olabilirlik çok tepeli). Sonuç, olabilirlik denkleminin kökleri ve üç başlangıçlı EM arasından olabilirliği en büyük olan çözümdür: …" |
| Eşit olabilirlik | Seçilen çözümden ayrı bir adayın log-olabilirliği onunkine eşittir (10^{-9} içinde; esit, 141) |
"Uyarı: … lokus çiftinde olabilirlik iki ayrı çözümde eşit; veri hangisinin doğru olduğunu ayırt edemez (D'nin işareti ve büyüklüğü belirsiz): …" |
| EM yakınsamadı | Üç başlangıcın en iyisi em_en_cok'a ulaşmıştır (em_yak, 139) |
"Not: … lokus çiftinde EM en çok yineleme sayısına (…) ulaştı ve toleransa (…) yakınsamadı; bu çiftlerde sonuç olabilirlik denkleminin kökünden alındı: …" |
Her satır ilgili çiftleri adlarıyla sayar (en çok beş ad, kalanı "+k" olarak). Eşit olabilirlik, verinin iki haplotip düzenini ayırt edemediği durumdur; şablon bunlardan birini raporlar, r^2 ve \chi^2 iki çözümde aynı olabilir ama D'nin işareti veriden belirlenemez (65.6, Adım 7).
Koddaki tercih
Kestirim şablonun kendi fonksiyonudur (ld_em, satır 101–156); paket çağrılmaz. Üç tercih sonucu belirler. (1) Hardy–Weinberg varsayımı: genotip olasılıkları rastgele çiftleşme altında yazılmıştır; lokuslar dengeden güçlü sapıyorsa kestirim yanlıdır. (2) Kökler ve üç başlangıç: çözüm tek bir EM çalıştırmasına bırakılmaz; olabilirlik denkleminin bütün kabul edilebilir kökleri, aralığın uçları ve üç başlangıçlı EM karşılaştırılır. Kök ile EM aynı tepedeyse raporlanan değer EM ile inceltilmiş köktür. (3) Yakınsama raporu: haplotip tablosunun em_yineleme sütunu, üç EM başlangıcından log-olabilirliği en yüksek olanın yineleme sayısıdır; eşitlikte (10^{-9} içinde) D=0 başlangıcınınki yazılır (132, 145). Bu sayı em_en_cok'a eşitse EM yakınsamamıştır; şablon bunu ayrıca notla bildirir ve sonuç kökten alındığı için değişmez.
65.4.3 D, D' ve r
- D_{\min}, D_{\max}: verilen alel frekanslarında D'nin alabileceği en küçük ve en büyük değer (hiçbir haplotip frekansı negatif olamaz).
- D': D'nin, işaretine göre ulaşabileceği uç değere oranı (Lewontin, 1964); kodda işaretsizdir, [0{,}1] aralığındadır (satır 150). D'=1: dört haplotipten en az biri örnekte yoktur.
- r: iki lokusun alel göstergeleri arasındaki Pearson korelasyonu (kromozom düzeyinde); işaretlidir. r^2 (Hill ve Robertson, 1968): bir lokusun ötekini ne ölçüde öngördüğü.
Neden hem D' hem r^2?
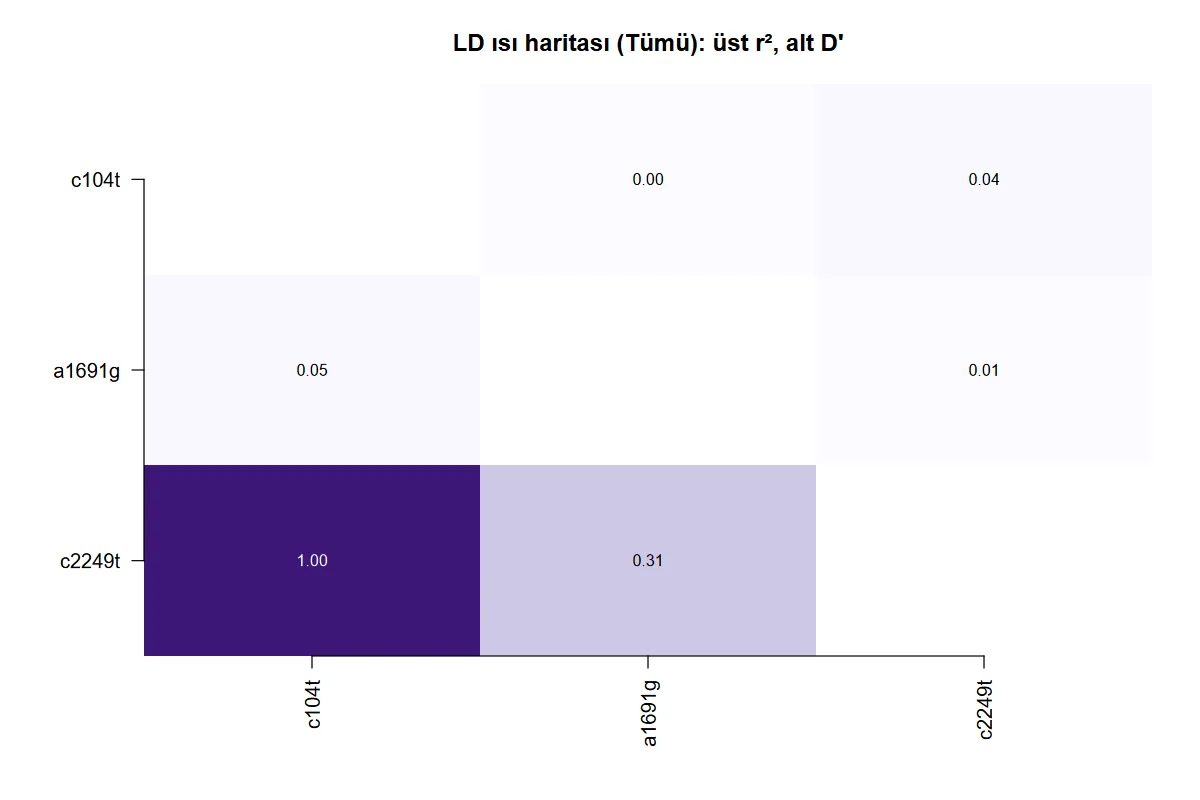
İkisi farklı soruları yanıtlar. D' "iki lokus arasında, örneklenen geçmişte rekombinasyon izi var mı" sorusuna bakar: dört haplotipten biri eksikse 1'dir. r^2 "bir lokusu biliyorsam ötekini ne kadar biliyorum" sorusuna bakar ve alel frekansları benzer değilse D'=1 iken bile küçük kalır. Örnek veride c104t–c2249t çifti D'=1{,}00, r^2=0{,}043 verir: c2249t'nin azınlık aleli seyrektir (0,085), c104t'ninki değildir (0,315). D' ayrıca küçük örneklemde ve nadir alelde yukarı yanlıdır (seyrek haplotip örneğe girmeyince 1 çıkar); etiket SNP seçimi ve güç hesapları r^2 ile yapılır.
65.4.4 Ki-kare testi ve çoklu test düzeltmesi
- 2n: çiftteki kromozom sayısı. Faz bilinseydi 2n kromozomun 2\times2 haplotip tablosunun Pearson \chi^2'si tam olarak 2n\,r^2 olurdu.
- H_0: D=0 (bağlantı dengesi).
Fazsız veride 2n\,r^2 iyimserdir
Faz kestirildiğinde çift heterozigotlar tam bir gözlem kadar bilgi taşımaz; \hat r'nin örnekleme varyansı 1/(2n)'den büyüktür ve p değerleri biraz küçük çıkar. Etki, çift heterozigotların payı arttıkça büyür. Küçük örneklemde ve sınıra yakın p'lerde sonuç yaklaşık kabul edilir; şablon kesin ya da permütasyon testi sunmaz.
p değerleri bütün popülasyonların bütün çiftleri üzerinde tek aile olarak düzeltilir (satır 202–203); varsayılan Holm'dur. Düzeltme formülleri Bölüm 78.4.7'dedir. LD testleri birbirinden bağımsız değildir (aynı lokus birçok çiftte yer alır); Holm ve Bonferroni keyfî bağımlılıkta geçerlidir, BH pozitif bağımlılıkta geçerlidir, BY her bağımlılıkta geçerli ama tutucudur.
65.4.5 Uzaklıkla LD azalımı: Hill–Weir beklentisi
Konumlar verildiğinde her çiftin uzaklığı d=\lvert x_j-x_i\rvert hesaplanır. Sürüklenme–rekombinasyon dengesindeki tek popülasyonda, düşük mutasyon hızında, n büyüklüğündeki örnekte r^2'nin beklenen değeri (Hill ve Weir, 1988):
- C=4N_e c: popülasyon rekombinasyon parametresi (N_e etkin büyüklük, c iki lokus arası rekombinasyon oranı). Şablon C'yi uzaklıkla doğru orantılı alır: C=\rho\,d; \rho kestirilen tek katsayıdır (birim uzaklık başına 4N_e c).
- Köşeli ayraçtaki ikinci terim: sonlu örneklem düzeltmesi; n\to\infty'de kaybolur. Kod n yerine çiftin birey sayısını koyar (satır 240).
- d=0'da beklenti \tfrac{10}{22}\big(1+\tfrac{36}{22n}\big)'dir; n=100 için 0,462. Model, bitişik lokuslarda bile r^2'nin 1 olmasını beklemez.
\rho, gözlenen ve beklenen r^2 arasındaki kareler toplamını en küçükleyerek bulunur:
Ardından "yarı azalım uzaklığı" raporlanır: uydurulan eğrinin (n yerine ortalama \bar n konarak) d=0'daki değerinin yarısına indiği uzaklık.
Koddaki tercih
En küçükleme tek boyutludur ve stats::optimize ile \log\rho üzerinde, [\log10^{-12},\ \log10^{6}] aralığında yapılır (satır 240–242); yarı uzaklık stats::uniroot ile bulunur (244). Standart hata ya da güven aralığı hesaplanmaz. Uzaklığı sıfır olan çiftler ve konumu aynı lokuslar uyuma girmez (236). Popülasyon sütunu verilmişse bütün popülasyonların çiftleri tek eğriye uydurulur. On çiftten azsa şablon sonucun yalnız betimsel olduğunu yazar (248–249).
Neden üstel azalım değil de Hill–Weir?
r^2=e^{-\lambda d} gibi bir eğri yalnız biçim uydurur. Sürüklenme ile rekombinasyon dengesinden türetilen en yalın beklenti Sved'in (1971) E(r^2)=1/(1+C) ifadesidir; Hill–Weir beklentisi buna düşük mutasyon hızını ve örneklem büyüklüğünü ekler. Katsayısı 4N_e c cinsinden yorumlanır ve küçük örneklemde r^2'nin sıfıra değil yaklaşık 1/n'ye indiğini hesaba katar; LD azalımının betimlenmesinde yaygın kullanılır (Remington ve ark., 2001). Bedeli varsayımlarıdır: tek, kapalı, sabit büyüklükte popülasyon; karışım, darboğaz ya da seçilim eğriyi bozar.
65.5 Kod adım adım
| Satırlar | Ne yapar | Neden / dikkat |
|---|---|---|
| 1–64 | Üstbilgi: kimlik, açıklama, örnek veri ve ayar, yedi parametre. | Form buradan kurulur (Bölüm 1.2). |
| 65–70 | .m() dil seçici; ortak genotip ayrıştırıcısına bağlama (.gn_eksik, .gn_genotip). |
Ayrıştırıcının gövdesi şablonda değildir; kuralı Bölüm 1.5'tedir. |
| 72–94 | Girdiler: lokuslar, popülasyon vektörü, konumlar; her lokus bir kez ayrıştırılır (G, 86); okuma dökümü (mq_genotip_notu(), 87). |
Konum metninde ; varsa ayırıcı odur ve virgül ondalık işaretidir; yoksa ayırıcı virgüldür (84–86). |
| 96–156 | ld_em(): alel frekansları, k_{AB}, n_{hh}, log-olabilirlik (ll), EM (em), üç başlangıç, kübik denklemin kökleri, çözümün seçimi, D, D', r, \chi^2, p. |
Girdi çoğunluk aleli kopya sayılarıdır; çıktı listesi dört haplotip frekansını, yineleme sayısını ve üç durum göstergesini (em_yak, ilk_ayni, esit) de taşır. |
| 158–175 | em_tol, em_en_cok; popülasyon döngüsü; her lokusta alel tablosu, tek/çok alelli lokusların atlanması, çoğunluk aleline göre 0/1/2 kodlaması. |
Popülasyonlar ad sırasında (sort, 155). Çoğunluk aleli popülasyon içinde, lokusun bütün genotiplerinden belirlenir (167–171). |
| 176–198 | Çift döngüsü: ortak bireyler, atlama denetimleri, ld_em, durum göstergelerinin toplanması (184–187), sonuç ve haplotip satırları. |
Haplotip etiketi iki alel adının birleşimidir (C-A); ilk satır her zaman çoğunluk–çoğunluk haplotipidir (193). |
| 199–219 | Atlananlar notu; hiç çift yoksa hata; p.adjust; özet satırı; iki tablo; çok tepe, eşit olabilirlik ve yakınsama satırları (210–219). |
Konum yoksa uzaklik sütunu silinir (204). |
| 221–233 | Isı haritası: üst üçgen r^2, alt üçgen D'; yalnız ilk popülasyon. | Hücre değerleri iki ondalıkla yazılır. |
| 235–258 | Hill–Weir uyumu, azalım tablosu, az çift uyarısı, azalım grafiği. | En az iki pozitif uzaklıklı çift gerekir (237, 257). |
65.6 Elle hesap: örnek veride bağımsız yeniden hesap
Ara değerler dogrulama/bag_dengesizligi/elle_hesap.py, em_izi.py ve cok_kok_ara.py ile hesaplanmıştır. Bağımsız hesap EM kullanmaz: kübik denklemi numpy.roots ile çözer ve adaylar içinden olabilirliği en büyük olanı seçer. R tarafında (r_dogrulama.R) log-olabilirlik ızgarada taranmış ve skor fonksiyonunun kökü bulunmuştur.
Adım 1 — Alel frekansları. n=100, eksik yok. Çoğunluk alelleri: c104t'de C (0,685), a1691g'de A (0,575), c2249t'de T (0,915).
Adım 2 — a1691g–c2249t: çift heterozigot yok. Fazı bilinen haplotip sayıları A-T 103, A-C 12, G-T 80, G-C 5; n_{hh}=0. Kestirim doğrudan sayımdır:
Adım 3 — c104t–a1691g: bir çift heterozigot. Sayılar C-A 77, C-G 59, T-A 37, T-G 25; n_{hh}=1. Dengeden başlayan EM'in izi:
İlk adımda oran her zaman 1/2'dir (başlangıç dengedir). Sekizinci yinelemede fark 10^{-13}'ün altına iner; öteki iki başlangıç (p^{(0)}=0{,}261339 ve 0{,}573189) dokuz yinelemede aynı noktaya gelir. Kübik denklem (N=200, u=-1{,}52, k_{AB}=77) 400p^3-459p^2+196{,}075p-30{,}328375=0'dır; tek gerçek kökü 0{,}38734479'dur (öteki ikisi karmaşık), yani olabilirlik tek tepelidir. D=-0{,}0065302, D_{\min}=-0{,}133875, D'=0{,}048778, r=-0{,}028438, \chi^2=0{,}161743, p=0{,}687556.
Adım 4 — c104t–c2249t: sınırda çözüm. Sayılar C-T 120, C-C 13, T-T 59, T-C 0; n_{hh}=4. Fazı bilinen bireylerde T-C haplotipi hiç yoktur. Kübik denklemin (400p^3-684p^2+391{,}755p-75{,}213=0) kabul edilebilir aralıktaki ([0{,}6;\ 0{,}685]) tek gerçek kökü 0{,}6'dır, yani aralığın alt ucu: \hat p_{TC}=0. Dengeden başlayan EM'in izi 0{,}626775\to0{,}61\to0{,}604211\to0{,}601840\to\dots bu noktaya yavaş yaklaşır ve 33. yinelemede durur; durduğu yer sınırdan 6\cdot10^{-14} uzaktadır. Şablon kökü raporlar: haplotip tablosunda T-C frekansı tam 0, D' tam 1'dir.
Dört çift heterozigotun hepsi C-C + T-T fazına atanmıştır; log-olabilirlik bu noktada -175{,}9823, dengede -179{,}9989'dur.
Adım 5 — Holm düzeltmesi. m=3; sıralı p'ler 0{,}003467, 0{,}253781, 0{,}687556:
Adım 6 — Hill–Weir uyumu. Uzaklıklar 1795, 2353 ve 558; r^2 değerleri 0,000809, 0,042719 ve 0,006512; n=100. Kareler toplamı \hat\rho=1{,}41402'de en küçüktür (KT =0{,}00116539). d=0'daki beklenti \tfrac{10}{22}\big(1+\tfrac{36}{2200}\big)=0{,}461983; eğri bunun yarısına d=1{,}52813'te iner. Üç çiftin hepsi bu uzaklığın yüzlerce katındadır; eğri bu aralıkta düz bir tabandır ve katsayı yorumlanamaz (65.8).
Adım 7 — Çok tepeli olabilirlik (çalıştırma 5). ld_cokkok.csv verisinde n=17; genotip sayıları: AA\,CC 1, AA\,TT 1, GG\,CT 1, AG\,CT 14. Birinci lokusta \hat p_A=18/34=0{,}529412; ikinci lokusta iki alel eşit sıklıktadır (\hat p_C=\hat p_T=0{,}5) ve adı önce gelen C çoğunluk aleli sayılır. Fazı bilinen haplotipler A-C 2, A-T 2, G-C 1, G-T 1; n_{hh}=14. Kübik denklem (N=34, u=-1{,}058824):
Üç kök de kabul edilebilir aralıktadır ([0{,}029412;\ 0{,}5]). Ortadaki kök \hat p_A\hat p_C'dir, yani D=0; log-olabilirlik burada -37{,}3711, öteki iki kökte -33{,}3985'tir: D=0 iki tepe arasındaki çukurdur. Dengeden başlayan EM ilk adımda yerinde kalır (k_{AB}+n_{hh}/2=9=2n\,\hat p_A\hat p_C); 0{,}99\,D_{\min} ve 0{,}99\,D_{\max} başlangıçları 18 yinelemede iki tepeye ulaşır. Şablon \hat p_{AC}=0{,}063069'u raporlar:
İkinci lokusun iki aleli veride bakışımlıdır (C ile T yer değiştirince genotip sayıları değişmez); bu yüzden iki tepe eşit yüksekliktedir. Öteki tepede \hat p_{AC}=0{,}466343, D=+0{,}201637'dir; D', r^2 ve \chi^2 aynıdır. Veri, 14 çift heterozigotun A-T + G-C fazında mı A-C + G-T fazında mı olduğunu ayırt edemez; güçlü bir dengesizlik vardır, yönü belirsizdir. Çıktıda hem çok tepe notu hem eşit olabilirlik uyarısı yer alır (65.7).
65.6.1 Doğrulama: MerQuR+, Python ve R
MerQuR+ sütunu şablonun üç tablosundan tam hassasiyetle alınmıştır (çalıştırmalar 1, 3, 4 ve 5). Çalıştırma 5'te olabilirlik iki çözümde eşit olduğundan D mutlak değeriyle karşılaştırılmıştır: bağımsız hesap öteki tepeyi (D=+0{,}201637) seçer.
| Büyüklük | MerQuR+ | Python (bağımsız) | R (bağımsız) | En büyük fark | |
|---|---|---|---|---|---|
| c104t–a1691g: \hat p_{AB} | 0,38734479 | 0,38734479 | 0,38734479 | 2,8e−16 | ✓ |
| c104t–a1691g: D | −0,00653021 | −0,00653021 | −0,00653021 | 1,7e−16 | ✓ |
| c104t–a1691g: D' | 0,04877842 | 0,04877842 | 0,04877842 | 1,7e−15 | ✓ |
| c104t–a1691g: r | −0,02843795 | −0,02843795 | −0,02843795 | 9,9e−16 | ✓ |
| c104t–a1691g: \chi^2 | 0,16174338 | 0,16174338 | 0,16174338 | 1,1e−14 | ✓ |
| c104t–a1691g: p | 0,68755648 | 0,68755648 | 0,68755648 | 1,0e−14 | ✓ |
| c104t–a1691g: Holm p | 0,68755648 | 0,68755648 | 0,68755648 | 1,0e−14 | ✓ |
| c104t–c2249t: \hat p_{AB} | 0,6 | 0,6 | 0,6 | 1,1e−16 | ✓ |
| c104t–c2249t: D | −0,026775 | −0,026775 | −0,026775 | 6,9e−18 | ✓ |
| c104t–c2249t: D' | 1 | 1 | 1 | 4,4e−16 | ✓ |
| c104t–c2249t: r | −0,20668498 | −0,20668498 | −0,20668498 | 2,5e−16 | ✓ |
| c104t–c2249t: \chi^2 | 8,54373579 | 8,54373579 | 8,54373579 | 0 | ✓ |
| c104t–c2249t: p | 0,00346713 | 0,00346713 | 0,00346713 | 9,0e−17 | ✓ |
| c104t–c2249t: Holm p | 0,0104014 | 0,0104014 | 0,0104014 | 6,6e−17 | ✓ |
| a1691g–c2249t: \hat p_{AB} | 0,515 | 0,515 | 0,515 | 1,2e−15 | ✓ |
| a1691g–c2249t: D | −0,011125 | −0,011125 | −0,011125 | 1,2e−15 | ✓ |
| a1691g–c2249t: D' | 0,30795848 | 0,30795848 | 0,30795848 | 3,4e−14 | ✓ |
| a1691g–c2249t: r | −0,08069593 | −0,08069593 | −0,08069593 | 8,8e−15 | ✓ |
| a1691g–c2249t: \chi^2 | 1,30236657 | 1,30236657 | 1,30236657 | 2,2e−13 | ✓ |
| a1691g–c2249t: p | 0,25378139 | 0,25378139 | 0,25378139 | 4,9e−14 | ✓ |
| a1691g–c2249t: Holm p | 0,50756279 | 0,50756279 | 0,50756279 | 9,8e−14 | ✓ |
| Hill–Weir: katsayı \hat\rho | 1,41402376 | 1,41402389 | 1,41402384 | 9,0e−8 | ✓ |
| Hill–Weir: E(r^2), uzaklık 0 | 0,46198347 | 0,46198347 | 0,46198347 | 1,7e−16 | ✓ |
| Hill–Weir: yarı azalım uzaklığı | 1,52813103 | 1,52813089 | 1,52813095 | 9,0e−8 | ✓ |
| Hill–Weir: KT (artık kareler toplamı) | 0,00116539 | 0,00116539 | 0,00116539 | 3,8e−17 | ✓ |
| s1–s2, Dag (n=78): D | 0,14480511 | 0,14480511 | 0,14480511 | 8,0e−16 | ✓ |
| s1–s2, Dag (n=78): r^2 | 0,42064565 | 0,42064565 | 0,42064565 | 2,3e−15 | ✓ |
| s1–s2, Dag (n=78): BH p | 3,498306·10−14 | 3,498306·10−14 | 3,498306·10−14 | 7,1e−27 | ✓ |
| s1–s8, Dag (n=80): D | −0,03707021 | −0,03707021 | −0,03707021 | 7,6e−16 | ✓ |
| s1–s8, Dag (n=80): r^2 | 0,02458773 | 0,02458773 | 0,02458773 | 9,5e−16 | ✓ |
| s1–s8, Dag (n=80): BH p | 0,09176871 | 0,09176871 | 0,09176871 | 8,3e−15 | ✓ |
| s3–s4, Dag (n=80): D | 0,10864054 | 0,10864054 | 0,10864054 | 1,7e−15 | ✓ |
| s3–s4, Dag (n=80): r^2 | 0,24331064 | 0,24331064 | 0,24331064 | 7,5e−15 | ✓ |
| s3–s4, Dag (n=80): BH p | 3,124228·10−9 | 3,124228·10−9 | 3,124228·10−9 | 2,0e−21 | ✓ |
| s5–s6, Dag (n=79): D | 0,1169514 | 0,1169514 | 0,1169514 | 2,1e−16 | ✓ |
| s5–s6, Dag (n=79): r^2 | 0,26928299 | 0,26928299 | 0,26928299 | 1,0e−15 | ✓ |
| s5–s6, Dag (n=79): BH p | 5,521134·10−10 | 5,521134·10−10 | 5,521134·10−10 | 5,8e−23 | ✓ |
| s6–mono, Dag (n=79): D | −0,04675675 | −0,04675675 | −0,04675675 | 2,8e−15 | ✓ |
| s6–mono, Dag (n=79): r^2 | 0,04492317 | 0,04492317 | 0,04492317 | 5,3e−15 | ✓ |
| s6–mono, Dag (n=79): BH p | 0,01975705 | 0,01975705 | 0,01975705 | 9,3e−15 | ✓ |
| s1–s2, Ova (n=59): D | 0,15397874 | 0,15397874 | 0,15397874 | 1,1e−16 | ✓ |
| s1–s2, Ova (n=59): r^2 | 0,48882809 | 0,48882809 | 0,48882809 | 2,8e−16 | ✓ |
| s1–s2, Ova (n=59): BH p | 6,573956·10−13 | 6,573956·10−13 | 6,573956·10−13 | 2,0e−28 | ✓ |
| s3–s4, Ova (n=60): D | 0,1604138 | 0,1604138 | 0,1604138 | 2,4e−15 | ✓ |
| s3–s4, Ova (n=60): r^2 | 0,52149228 | 0,52149228 | 0,52149228 | 1,5e−14 | ✓ |
| s3–s4, Ova (n=60): BH p | 8,190682·10−14 | 8,190682·10−14 | 8,190682·10−14 | 7,5e−26 | ✓ |
| s4–s7, Ova (n=60): D | −8,326673·10−16 | 2,720046·10−15 | 0 | 3,6e−15 | ✓ |
| s4–s7, Ova (n=60): r^2 | 1,422225·10−29 | 1,517672·10−28 | 0 | 1,4e−28 | ✓ |
| s4–s7, Ova (n=60): BH p | 1 | 1 | 1 | 7,5e−14 | ✓ |
| ld_cok, Hill–Weir (64 çift): katsayı \hat\rho | 0,23273688 | 0,23273689 | 0,23273688 | 2,6e−9 | ✓ |
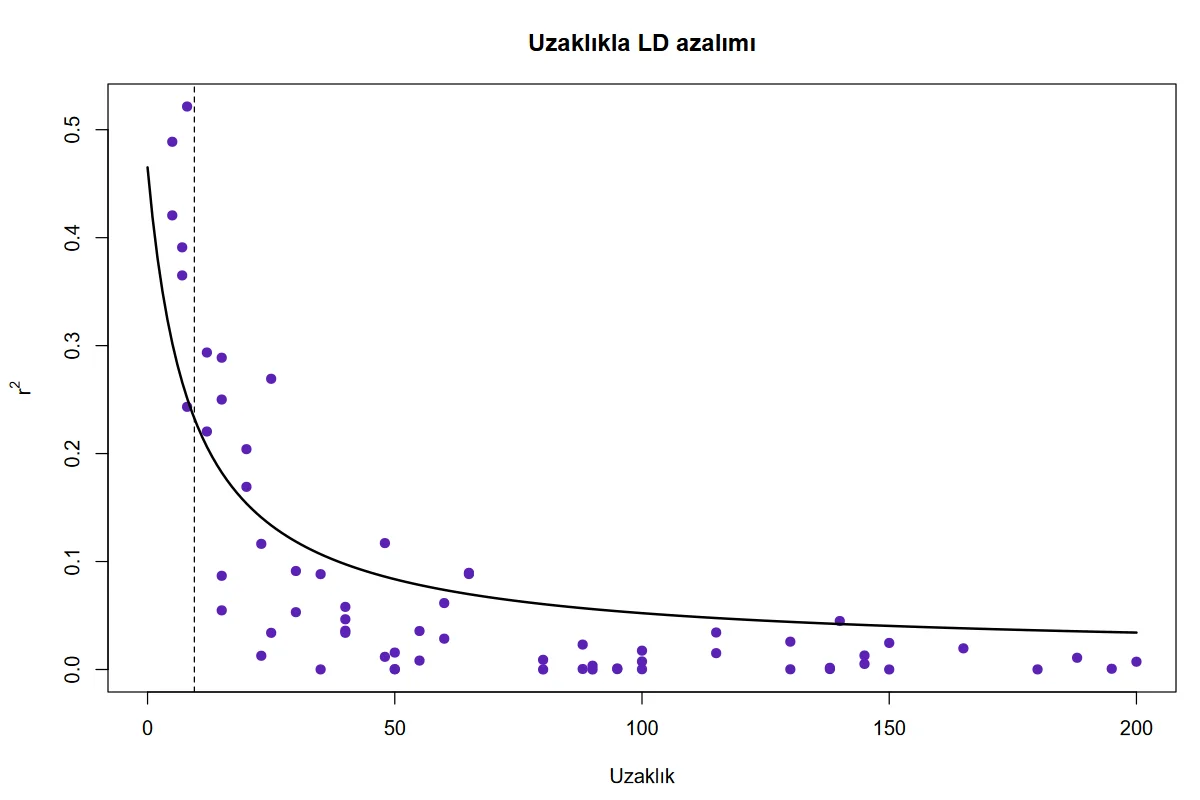
| ld_cok, Hill–Weir (64 çift): yarı azalım uzaklığı | 9,46680791 | 9,46680781 | 9,46680792 | 1,1e−8 | ✓ |
| ld_cok, Hill–Weir (64 çift): KT | 0,35295511 | 0,35295511 | 0,35295511 | 5,9e−15 | ✓ |
| ld_cokkok, x–y (n=17): \lvert D\rvert | 0,2016369 | 0,2016369 | — | 1,9e−16 | ✓ |
| ld_cokkok, x–y (n=17): D' | 0,85695683 | 0,85695683 | — | 1,6e−15 | ✓ |
| ld_cokkok, x–y (n=17): r^2 | 0,65277778 | 0,65277778 | — | 1,8e−15 | ✓ |
| ld_cokkok, x–y (n=17): \chi^2 | 22,19444444 | 22,19444444 | — | 3,2e−16 | ✓ |
| ld_cokkok, x–y (n=17): p | 2,463857·10−6 | 2,463857·10−6 | — | 7,5e−20 | ✓ |
| EM en çok 10, c104t–c2249t: D' | 1 | 1 | 1 | 4,4e−16 | ✓ |
| EM en çok 10, c104t–c2249t: \chi^2 | 8,54373579 | 8,54373579 | 8,54373579 | 0 | ✓ |
Ölçütü karşılayan: 59/59. Python: olabilirlik denkleminin kübik biçimi numpy.roots ile çözülmüş, kabul edilebilir kökler ve aralık uçları içinden log-olabilirliği en büyük olan alınmıştır; Hill–Weir uyumu altın oran aramasıyla. R: log-olabilirlik ızgarada taranmış, skor fonksiyonunun kökü uniroot ile, Hill–Weir uyumu nlminb ve türev köküyle bulunmuştur. Şablonun EM döngüsü kullanılmamıştır. ld_cok.csv ek sınama verisidir (2 popülasyon, 64 çift); tabloda yer almayan çiftler dahil 64 çiftin D, D', r^2, p ve BH p değerlerinde en büyük fark 9,6·10−13'dir. ld_cokkok.csv olabilirliği iki tepeli olan çifttir (yalnız Python; iki tepe eşit yükseklikte olduğundan D mutlak değeriyle karşılaştırılmıştır); son iki satır EM üst sınırı 10 iken şablonun sonucudur.
Hill–Weir katsayısındaki 10^{-7} düzeyindeki fark, kareler toplamının en küçük çevresinde çok yassı olmasından ve üç en küçükleyicinin durma ölçütünden gelir; kareler toplamının kendisi 10^{-14} içinde aynıdır.
genetics paketiyle karşılaştırma. Şablonun açıklamasındaki doğrulama değerleri şablonun kendi sonuçlarıdır; açıklama ayrıca genetics paketinin LD belgesinde basılı değerleri anar. Aynı veride genetics::LD c104t–c2249t için D=-0{,}026715, D'=0{,}9978, \chi^2=8{,}505, p=0{,}00354 verir; şablon ve iki bağımsız hesap D=-0{,}026775, D'=1, \chi^2=8{,}544, p=0{,}00347 bulur. Fark, o paketin sayısal en büyükleyicisinin sınırın biraz içinde durmasından gelir: log-olabilirlik şablonun noktasında -175{,}9823, paketin noktasında -175{,}9890'dır. Öteki iki çiftte fark dördüncü anlamlı basamaktadır.
65.7 Çıktıyı okuma
Örnek ayarın konsol metni:
Bağlantı dengesizliği: 3 lokus çifti, 1 popülasyon (EM ile iki lokuslu haplotip frekansları; A, B = çoğunluk alelleri)
Uyarı: LD azalım eğrisi yalnız 3 lokus çiftine uyduruldu; bu kadar az çiftle katsayı ve yarı azalım uzaklığı kararsızdır, yalnız betimsel okunmalıdır (güvenilir bir azalım eğrisi için onlarca/yüzlerce çift gerekir).
"Bağlantı dengesizliği" tablosu (değerler kısaltılmıştır; populasyon sütunu, bu çalıştırmada hep "Tümü", gösterilmemiştir):
lokus1  lokus2    n uzaklik        D D_ussu        r       r2   chi2        p p_duzeltilmis
c104t   a1691g  100    1795 -0.00653 0.0488 -0.02844 0.000809 0.1617 0.687556      0.687556
c104t   c2249t  100    2353 -0.02678 1.0000 -0.20668 0.042719 8.5437 0.003467      0.010401
a1691g  c2249t  100     558 -0.01113 0.3080 -0.08070 0.006512 1.3024 0.253781      0.507563
"İki lokuslu haplotip frekansları" tablosundan c104t–c2249t çifti:
haplotip    frekans  denge_beklenen  em_yineleme
C-T      6.0000e-01        0.626775           33
C-C      8.5000e-02        0.058225           33
T-T      3.1500e-01        0.288225           33
T-C      0.0000e+00        0.026775           33
Ek veride (çalıştırma 3) genotip okuma dökümü ve atlanan lokuslar da bildirilir:
Not: popülasyonu eksik 1 birey çıkarıldı.
Genotip okuma: 10 lokusta 1410 genotipin 6 tanesi eksik sayıldı (boş hücre: 4; eksik kodu: 2; alellerinden yalnız biri eksik kodu: 0; başka neden: 0).
Atlanan lokus/çiftler: tri (Dag): 3 alelli; yalnız iki alelli lokuslar çözümlenir; mono (Ova): tek biçimli (monomorfik); tri (Ova): 3 alelli; yalnız iki alelli lokuslar çözümlenir
Bağlantı dengesizliği: 64 lokus çifti, 2 popülasyon (EM ile iki lokuslu haplotip frekansları; A, B = çoğunluk alelleri)
Çalıştırma 5'te (ld_cokkok.csv) çözümün nasıl seçildiğini bildiren iki satır gelir:
Bağlantı dengesizliği: 1 lokus çifti, 1 popülasyon (EM ile iki lokuslu haplotip frekansları; A, B = çoğunluk alelleri)
Not: 1 lokus çiftinde dengeden (D = 0) başlayan EM olabilirliğin en yüksek tepesine ulaşmadı (olabilirlik çok tepeli). Sonuç, olabilirlik denkleminin kökleri ve üç başlangıçlı EM arasından olabilirliği en büyük olan çözümdür: x–y
Uyarı: 1 lokus çiftinde olabilirlik iki ayrı çözümde eşit; veri hangisinin doğru olduğunu ayırt edemez (D'nin işareti ve büyüklüğü belirsiz): x–y
lokus1 lokus2   n         D   D_ussu         r       r2    chi2         p
x      y       17 -0.201637 0.856957 -0.807947 0.652778 22.1944  2.46e-06

haplotip   frekans  denge_beklenen  em_yineleme
A-C       0.063069        0.264706           18
A-T       0.466343        0.264706           18
G-C       0.436931        0.235294           18
G-T       0.033657        0.235294           18
Çalıştırma 4'te (EM en çok yineleme 10) sınırdaki çift için EM yakınsamaz; sonuç değişmez (D'=1, \chi^2=8{,}5437), em_yineleme 10'dur ve şu satır yazılır:
Not: 1 lokus çiftinde EM en çok yineleme sayısına (10) ulaştı ve toleransa (1e-13) yakınsamadı; bu çiftlerde sonuç olabilirlik denkleminin kökünden alındı: c104t–c2249t
| Öğe | Ne yazar | Nasıl yorumlanır |
|---|---|---|
n |
Çiftin iki lokusunda da genotipi olan birey sayısı | Çiftten çifte değişir; \chi^2 ve Hill–Weir bu n'yi kullanır. |
uzaklik |
Konum farkının mutlak değeri | Yalnız konum verildiyse; birim girilen konumun birimidir. |
D |
\hat p_{AB}-\hat p_A\hat p_B | İşaret çoğunluk alellerine göredir; büyüklüğü alel frekanslarına bağlı olduğundan çiftler arasında karşılaştırılmaz. |
D_ussu |
D' (işaretsiz) | 1: dört haplotipten biri yok. Küçük n ve nadir alelde yukarı yanlı. |
r, r2 |
Haplotip korelasyonu ve karesi | r^2 çiftler arasında karşılaştırılabilir ölçüdür; etiket SNP eşiği çoğu zaman 0,8'dir. |
chi2, p |
2n\,r^2, sd 1 | H_0: D=0. Fazsız veride biraz iyimser. |
p_duzeltilmis |
Seçilen düzeltmeyle p | Aile: bütün popülasyonların bütün çiftleri. |
haplotip, frekans |
Dört haplotip (alel adlarıyla) ve en çok olabilirlik frekansı | İlk satır çoğunluk–çoğunluk haplotipi. Frekansı 0 olan haplotip örnekte yoktur (sınırdaki çözüm; D'=1). |
denge_beklenen |
D=0 olsaydı beklenen frekans | frekans − denge_beklenen ilk ve son satırda D, ortadakilerde -D'dir. |
em_yineleme |
Üç EM başlangıcından en iyisinin (eşitlikte D=0 başlangıcının) adım sayısı | em_en_cok'a eşitse EM yakınsamamıştır; not yazılır, sonuç kökten alınır. Sınırdaki çözümlerde sayı büyüktür (65.9 S4). |
| Çok tepe notu | Dengeden başlayan EM'in en yüksek tepeye ulaşmadığı çiftler | Sonuç doğrudur (en yüksek tepe); bu çiftlerde olabilirlik yüzeyi düzensizdir, kestirim küçük veri değişikliklerine duyarlı olabilir. |
| Eşit olabilirlik uyarısı | Olabilirliği iki ayrı çözümde eşit olan çiftler | D ve r'nin işareti (kimi zaman büyüklüğü) veriden belirlenemez; bu çiftlerin D'si yorumlanmaz, haplotip tablosundaki iki düzenin ikisi de olasıdır. |
| Yakınsama notu | EM'in em_en_cok'a ulaştığı çiftler |
Sonuç kökten alındığı için geçerlidir; em_en_cok artırılırsa not kalkar. |
| Azalım tablosu | katsayi (\hat\rho), n_ortalama, r2_baslangic, r2_yari_uzaklik, cift_sayisi, sse |
\hat\rho birim uzaklık başına 4N_ec; yarı uzaklık eğrinin d=0 değerinin yarısına indiği yer. Güven aralığı yoktur. |
Ek veride 64 çiftin 28'i BH düzeltmesinden sonra 0,05 düzeyinde anlamlıdır. Komşu lokuslarda LD güçlüdür (Dag, s1–s2, 5 kb: r^2=0{,}421; Ova, s3–s4, 8 kb: r^2=0{,}521) ve uzaklıkla söner (Dag, s1–s8, 150 kb: r^2=0{,}025). Azalım uyumu: \hat\rho=0{,}2327 (kb başına), yarı azalım uzaklığı 9,47 kb, 64 çift.
Şekil 65.1. Şablonun LD ısı haritası (örnek veri). Üst üçgen r^2, alt üçgen D'. c104t–c2249t hücreleri iki ölçünün ayrışmasını gösterir: D'=1{,}00, r^2=0{,}04.
Şekil 65.2. Şablonun azalım grafiği (ek veri, iki popülasyonun 64 çifti). Noktalar çiftlerin r^2 değeri, eğri Hill–Weir uyumu, kesikli çizgi yarı azalım uzaklığı (9,47 kb).
Rapor cümlesi (örnek ayar):
MBP2 genindeki üç SNP arasındaki bağlantı dengesizliği, fazı bilinmeyen genotiplerden en çok olabilirlik yöntemiyle kestirilen haplotip frekanslarından hesaplandı (n = 100). c104t ile c2249t arasında anlamlı dengesizlik bulundu (D' = 1{,}00; r^2 = 0{,}043; \chi^2(1) = 8{,}54; Holm düzeltmeli p = 0{,}010); T-C haplotipi örnekte gözlenmedi. Öteki iki çiftte dengesizlik anlamlı değildi (c104t–a1691g: r^2 = 0{,}001, p = 0{,}688; a1691g–c2249t: r^2 = 0{,}007, p = 0{,}508).
65.8 Sık hatalar ve tuzaklar
- Üç çiftle azalım eğrisi yorumlamak. Örnek ayardaki katsayı (1,414) ve yarı uzaklık (1,53 baz çifti) biyolojik anlam taşımaz: üç noktanın hepsi eğrinin düz tabanındadır ve kareler toplamı katsayıya neredeyse duyarsızdır. Şablon on çiftin altında uyarır; güvenilir bir eğri, geniş bir uzaklık aralığına yayılmış onlarca–yüzlerce çift ister.
- D'=1'i güçlü ilişki saymak. D'=1 yalnız bir haplotipin örnekte bulunmadığını söyler. Nadir alelde bu, şansla da olur. Öngörü gücü r^2'dir.
- Karışık örneği tek popülasyon gibi çözmek. Alel frekansları farklı iki popülasyon birleştirildiğinde, her birinde bağımsız olan lokuslar arasında bile D\neq0 çıkar. Popülasyon sütunu verilir; verilemiyorsa sonuç "karışım LD'si içerebilir" kaydıyla raporlanır.
- Dengeden sapan lokuslarda haplotip kestirimine güvenmek. Faz olasılıkları Hardy–Weinberg varsayımıyla yazılmıştır. Lokuslar önce
hardy_weinbergile sınanır; güçlü heterozigot eksikliği olan lokuslarda haplotip frekansları yanlıdır. - Konumları lokus seçim sırasından farklı sırada yazmak. Konumlar listedeki sıraya göre eşlenir, sütun adına göre değil. Sayı adedi tutuyorsa yanlış eşleşme hata vermez.
- Konumda ondalık virgülü virgül ayırıcıyla birlikte kullanmak. Listede noktalı virgül yoksa virgül ayırıcıdır:
0, 1,5, 3dört sayıdır ve sayı adedi denetimine takılır. Ondalık virgüllü konumlar noktalı virgülle ayrılır (0; 1,5; 3→ 0; 1,5; 3); ondalık nokta kullanılıyorsa iki ayırıcı da olur (0, 1.5, 3). Listede noktalı virgül varsa virgül her zaman ondalık işaretidir: üç lokus için1,5; 3iki sayıdır ve şablon iletiyle durur. - D ve r'nin işaretini popülasyonlar arasında karşılaştırmak. İşaret her popülasyonun kendi çoğunluk alellerine göredir. Karşılaştırma haplotip tablosundaki alel adlarıyla yapılır.
- Çok alelli lokusların sessizce düştüğünü fark etmemek. Mikrosatellit ya da üç alelli SNP "Atlanan lokus/çiftler" notuna yazılır ve hiçbir çifte girmez. Alel adı olarak
0kullanan kodlama (ör.0/1) ise çalıştırmayı durdurur; alel yeniden kodlanır (Bölüm 1.5). - Küçük örneklemde \chi^2 p'sini kesin saymak. 2n\,r^2 büyük örneklem yaklaşığıdır ve fazsız veride iyimserdir.
- Eşit olabilirlik uyarısı olan çiftte D'nin işaretini yorumlamak. Çift heterozigotların baskın olduğu küçük örneklerde olabilirlik iki haplotip düzenini eşit destekleyebilir; şablon birini raporlar ve uyarır. Bu çiftte D ve r'nin işareti bilgi taşımaz (65.9 S3).
- Yüzlerce SNP seçmek. 500 SNP 124750 çifttir; her çift için tablo satırı, kübik çözüm ve EM döngüleri gerekir. Genom ölçeğinde
ld_budama_ibdkullanılır.
65.9 Uzman soruları
S1. Kestirim fazı bilinen veriyle aynı sonucu verir mi?
Çift heterozigot yoksa evet: kestirim doğrudan haplotip sayımıdır (a1691g–c2249t çifti, iki adım). Çift heterozigot varsa en çok olabilirlik onları en olası oranda böler; gerçek fazlar farklı dağılmış olabilir. Örnek veride c104t–c2249t çiftinin dört çift heterozigotu tümüyle C-C + T-T fazına atanmıştır, çünkü fazı bilinen 96 bireyde T-C haplotipi hiç yoktur. Bu en olası açıklamadır, kanıt değildir: dört bireyden biri gerçekte C-T + T-C taşıyorsa D' 1'in altındadır. Fazlı veri (aile bilgisi, uzun okuma dizileme) varsa şablon onu ayrıca kullanmaz; genotipler yine fazsız işlenir.
S2. \chi^2=2n\,r^2 fazsız veride neden iyimser?
Faz bilinseydi 2n kromozom bağımsız gözlem olurdu ve 2\times2 tablonun Pearson istatistiği tam 2n\,r^2'dir. Fazsız veride çift heterozigotların katkısı kestirilmiştir; Fisher bilgisi 2n gözleminkinden azdır ve \hat r'nin varyansı 1/(2n)'den büyüktür. Bileşik LD yaklaşımında (Weir, 1979) test istatistiği n\,r_{\Delta}^2'dir, yani örneklem birey sayısıdır. Gerçek, ikisinin arasındadır: çift heterozigot oranı düşükse 2n'ye, yüksekse n'ye yakındır. Şablon genetics paketiyle aynı tanımı (2n) kullanır.
S3. EM her zaman en çok olabilirlik kestirimine ulaşır mı?
Tek bir başlangıçtan hayır; şablon bu yüzden tek başlangıca dayanmaz. Olabilirlik denklemi kübiktir; kabul edilebilir aralıkta üç gerçek kökü olabilir (iki tepe, arada bir çukur) ve EM başlangıcına en yakın durağan noktaya gider. Çift heterozigotların payı yüksekse ve fazı bilinen haplotipler iki yönü eşit destekliyorsa D=0 çukurun kendisidir; dengeden başlayan EM ilk adımda yerinde kalır. dogrulama/bag_dengesizligi/ld_cokkok.csv böyle bir örnektir (17 birey, 14'ü çift heterozigot; 65.6 Adım 7): dengeden başlayan EM D=0'da durur, olabilirliğin en büyüğü D=\mp0{,}202, r^2=0{,}653'tedir. Şablon kübiğin köklerini, aralığın uçlarını ve üç başlangıçlı EM'i karşılaştırıp en yüksek olabilirliği seçer ve bu çifti çok tepe notunda adıyla bildirir (65.4.2). Rastgele çiftleşen popülasyondan çekilen benzetim örneklerinde dengeden başlayan EM'in en yüksek tepeden ayrıştığı durum n=20'de 590 örneğin 3'ünde görülmüş, n=50 ve n=200'de görülmemiştir: çok tepeli olabilirlik küçük örneklemin ve çift heterozigotların baskın olduğu çiftlerin özelliğidir. Şablonun çözümü, kübiği kapalı biçimde çözen yaklaşımla (Gaunt ve ark., 2007) aynı noktayı verir.
S4. Sınırdaki çözümde EM neden 33 adım sürüyor?
En çok olabilirlik kestirimi aralığın ucundaysa (\hat p_{TC}=0) EM ona doğrusal hızla, her adımda kalan uzaklığı sabit bir oranla küçülterek yaklaşır; iç noktadaki çözümlerde yakınsama çok daha hızlıdır (8 adım). Varsayılan ölçüt (10^{-13}) ve sınır (10000) bunun için geniştir. Sonuç EM'in hızına bağlı değildir: kübik denklemin kökü sınırın kendisidir ve şablon onu raporlar. Üst sınır 10'a indirilirse bu çiftte EM yakınsamadan durur (durduğu noktada D'=0{,}99976 olurdu); şablon kökten D'=1, \chi^2=8{,}5437 verir, em_yineleme sütununa 10 ve çıktıya yakınsama notunu yazar.
S5. Genotiplerin (0/1/2) Pearson korelasyonu ile bu şablonun r'si aynı mı?
Hayır. Genotip korelasyonu bileşik LD katsayısının ölçeklenmiş biçimidir: faz gerektirmez, Hardy–Weinberg varsaymaz, ama haplotip içi ve haplotipler arası ilişkiyi ayırmaz. Örnek veride genotip korelasyonları −0,0323, −0,1739 ve −0,0983; şablonun r değerleri −0,0284, −0,2067 ve −0,0807'dir. Rastgele çiftleşmede ikisi aynı büyüklüğü kestirir; fark örnekleme oynaması ve çift heterozigotların ele alınışından gelir. Genom ölçeğindeki araçlar hız için çoğu zaman genotip korelasyonunu kullanır; aday gen ölçeğinde en çok olabilirlik kestirimi tercih edilir.
S6. Hill–Weir eğrisindeki n birey mi, kromozom mu?
Beklentideki örneklem terimi, r^2'nin örnekleme oynamasından gelen yukarı yanlılığı (\approx1/n) temsil eder. Şablon n yerine çiftin birey sayısını koyar. Fazı bilinen 2n kromozom için doğru değer 2n, fazsız genotipler için etkin değer n ile 2n arasındadır (S2). Seçim katsayıyı az etkiler: ek veride birey sayısıyla \hat\rho=0{,}2327 ve yarı uzaklık 9,47 kb; kromozom sayısıyla 0{,}2167 ve 9,84 kb. Karşılaştırmalı çalışmalarda hangi tanımın kullanıldığı belirtilir.
S7. Yarı azalım uzaklığı neden "r^2=0{,}1'e indiği uzaklık" gibi sabit eşikli tanımlardan farklı?
Şablon eğrinin kendi başlangıç değerinin (d=0'da yaklaşık 0,46) yarısına indiği uzaklığı verir; bu, eşik seçimine bağlı olmayan göreli bir ölçüdür. Yazında sabit eşikler (r^2=0{,}1 ya da 0{,}2) de kullanılır ve aynı veride farklı uzaklık verir. Sabit eşikli uzaklık katsayi'dan hesaplanabilir: E(r^2) denklemi istenen eşiğe eşitlenip C için çözülür, d=C/\hat\rho.
S8. Popülasyonlar birlikte verildiğinde azalım eğrisi neyi temsil eder?
Bütün popülasyonların çiftleri tek kareler toplamına girer ve tek \hat\rho kestirilir; n_ortalama bütün çiftlerin ortalamasıdır. Bu, popülasyonların etkin büyüklükleri ve geçmişleri benzerse anlamlıdır. Farklıysa (yabani ve kültür popülasyonu gibi) şablon her popülasyon için ayrı çalıştırılır; LD'nin kendisi zaten popülasyon içinde hesaplanır, havuzlanan yalnız eğridir.
65.10 Kaynaklar
- Dempster, A. P., Laird, N. M., & Rubin, D. B. (1977). Maximum likelihood from incomplete data via the EM algorithm. Journal of the Royal Statistical Society: Series B, 39(1), 1–22. https://doi.org/10.1111/j.2517-6161.1977.tb01600.x
- Excoffier, L., & Slatkin, M. (1995). Maximum-likelihood estimation of molecular haplotype frequencies in a diploid population. Molecular Biology and Evolution, 12(5), 921–927. https://doi.org/10.1093/oxfordjournals.molbev.a040269
- Gaunt, T. R., Rodríguez, S., & Day, I. N. M. (2007). Cubic exact solutions for the estimation of pairwise haplotype frequencies: Implications for linkage disequilibrium analyses and a web tool 'CubeX'. BMC Bioinformatics, 8, 428. https://doi.org/10.1186/1471-2105-8-428
- Hill, W. G. (1974). Estimation of linkage disequilibrium in randomly mating populations. Heredity, 33(2), 229–239. https://doi.org/10.1038/hdy.1974.89
- Hill, W. G., & Robertson, A. (1968). Linkage disequilibrium in finite populations. Theoretical and Applied Genetics, 38(6), 226–231. https://doi.org/10.1007/BF01245622
- Hill, W. G., & Weir, B. S. (1988). Variances and covariances of squared linkage disequilibria in finite populations. Theoretical Population Biology, 33(1), 54–78. https://doi.org/10.1016/0040-5809(88)90004-4
- Holm, S. (1979). A simple sequentially rejective multiple test procedure. Scandinavian Journal of Statistics, 6(2), 65–70.
- Lewontin, R. C. (1964). The interaction of selection and linkage. I. General considerations; heterotic models. Genetics, 49(1), 49–67. https://doi.org/10.1093/genetics/49.1.49
- Remington, D. L., Thornsberry, J. M., Matsuoka, Y., Wilson, L. M., Whitt, S. R., Doebley, J., Kresovich, S., Goodman, M. M., & Buckler, E. S. (2001). Structure of linkage disequilibrium and phenotypic associations in the maize genome. Proceedings of the National Academy of Sciences, 98(20), 11479–11484. https://doi.org/10.1073/pnas.201394398
- Slatkin, M. (2008). Linkage disequilibrium: Understanding the evolutionary past and mapping the medical future. Nature Reviews Genetics, 9(6), 477–485. https://doi.org/10.1038/nrg2361
- Sved, J. A. (1971). Linkage disequilibrium and homozygosity of chromosome segments in finite populations. Theoretical Population Biology, 2(2), 125–141. https://doi.org/10.1016/0040-5809(71)90011-6
- Warnes, G., Gorjanc, G., Leisch, F., & Man, M. (2021). genetics: Population genetics (R package version 1.3.8.1.3). https://doi.org/10.32614/CRAN.package.genetics
- Weir, B. S. (1979). Inferences about linkage disequilibrium. Biometrics, 35(1), 235–254. https://doi.org/10.2307/2529947
- Weir, B. S. (1996). Genetic data analysis II: Methods for discrete population genetic data. Sinauer.