72. Filogenetik Karşılaştırmalı Yöntemler
Şablon kimliği: filogenetik_karsilastirmali · Kategori: genetik · Dil: R · Dosya: pro/sablonlar/genetik/filogenetik_karsilastirmali.R (satır 1–317; üstbilgi 1–88) · Örnek veri: _ornek/kiyikusu_agac.csv · Paketler: ape 5.8-1, caper 1.0.4, phytools 2.5-2
72.1 Ne işe yarar
Türler arası verilerde gözlemler bağımsız değildir: yakın akraba türler özelliklerini ortak atalarından devraldığı için birbirine benzer. Aynı cinsten on tür hem iri hem iri yumurtalıysa bu on ayrı kanıt değil, kabaca tek bir atadan gelen tek bir kanıttır. Sıradan regresyon bunu bilmez; serbestlik derecesini abartır ve gerçekte olmayan ilişkileri anlamlı gösterebilir (Felsenstein, 1985). Şablonun cevapladığı soru: "Türlerin soy ağacı hesaba katıldığında bir özellik ötekiyle birlikte değişiyor mu ve özellikler ağacı ne ölçüde izliyor?"
Temel model, hataları ağaçtan türetilen bir kovaryansla bağıntılı olan regresyondur (filogenetik genelleştirilmiş en küçük kareler, PGLS):
- \mathbf y: türlerin yanıt değerleri (n tür); \mathbf X: kesişim ve yordayıcılar; \boldsymbol\beta: katsayılar.
- \mathbf V: ağaçtan kurulan n\times n kovaryans yapısı; iki türün hataları, ortak geçmişleri ne kadar uzunsa o kadar bağıntılıdır.
- \sigma^2: evrim hızı (birim dal uzunluğu başına varyans).
Şablon üç tamamlayıcı çözümlemeyi tek çalıştırmada verir: (1) \mathbf V için üç evrim modeliyle PGLS: Brown hareketi, Pagel \lambda ve Ornstein–Uhlenbeck (OU); (2) yanıt ve her yordayıcı için filogenetik sinyal: Blomberg K (permütasyon testiyle) ve Pagel \lambda (olabilirlik oranı testiyle); (3) Felsenstein'ın bağımsız karşıtlıkları üzerinde orijinden geçen regresyon. Yordayıcı verilmezse yalnız kesişimli model uydurulur: tek bir özelliğin ağaç üzerinde nasıl evrimleştiği incelenir.
Ne zaman kullanılır? Gözlem birimi tür (ya da soy) ise; türlerin dal uzunluklu bir ağacı varsa; yanıt sürekli bir özellikse (çoğu kez logaritması alınmış kütle, uzunluk, süre); soru iki özelliğin evrimsel ilişkisi ya da bir özelliğin akrabalık izi taşıyıp taşımadığıysa.
Ne zaman kullanılmaz?
- Elde ağaç yoksa: önce
dizi_filogeni(uzaklık, tutumluluk, en çok olabilirlik) ya dabayes_filogeniile ağaç kurulur; dal uzunluklu Newick metni bu şablona verilir. - Gözlemler tür değil bireyse ve akrabalık soy kütüğünden geliyorsa:
akrabalikvekalitim_derecesi. - Yanıt ikili ya da sayımsa: filogenetik lojistik/Poisson modelleri bu şablonda yoktur; yanıt dönüştürülemiyorsa şablon uygun değildir.
- Aynı türden birden çok ölçüm varsa: şablon tür başına tek satır ister; önce tür ortalamaları alınır (tür içi değişkenlik modellenmez).
- Türler arasında akrabalık yapısı önemsenmeyecekse (ör. tek bir cins içi tasarlanmış deney): temel programdaki Doğrusal Regresyon.
Temel programla ilişki. Temel programın doğrusal regresyonu \mathbf V=\mathbf I özel durumudur; ağaç okuyan, ağaçtan kovaryans kuran ya da filogenetik sinyal hesaplayan bir analiz temel programda yoktur. Örnek veride sıradan regresyonun eğimi 0,6795 (SH 0,0303), Brown modelli PGLS'nin eğimi 0,6756 (SH 0,0348), \lambda modelininki 0,6886'dır (SH 0,0326): katsayı yakın, belirsizlik farklıdır.
72.2 Şablonun girdileri
Form, üstbilgideki on bir [[param]] bloğundan kurulur (filogenetik_karsilastirmali.R:10–87).
| Alan (form etiketi) · ad | Tür · sekme | Varsayılan | Geçerli değerler | Kodda etkisi |
|---|---|---|---|---|
Tür adı sütunu · tur |
kategorik sütun · Değişkenler | ilk uygun sütun | herhangi bir sütun | Ağacın uç adlarıyla eşleştirilir; boşluk ve alt çizgi eşdeğer (111–112, 117). |
Yanıt · y |
sayısal sütun · Değişkenler | ilk sayısal sütun | sayısal sütun | \mathbf y (134). |
Yordayıcılar · x |
sütunlar · Değişkenler | boş (isteğe bağlı) | sayısal sütunlar | \mathbf X'in sütunları (138); boşsa yalnız kesişim. |
Newick ağacını taşıyan sütun · agac_sutunu |
sütun · Değişkenler | boş | herhangi bir sütun | Boş olmayan hücreler satır sırasıyla birleştirilir (99–100). |
Newick metni · agac_metni |
metin · Model | boş | en çok 2000 karakter | Yalnız sütun verilmemişse kullanılır (101). |
Blomberg K permütasyon sayısı · nsim |
tam sayı · Seçenekler | 999 | 99–9999 | phytools::phylosig(nsim =) (247). |
Güven düzeyi · guven |
ondalık · Seçenekler | 0,95 | 0,5–0,999 | \lambda profil güven aralığının eşiği (179). |
OU α arama üst sınırı · ou_ust |
ondalık · Gelişmiş | 50 | 1–10000 | \alpha en çok ou_ust/ağaç yüksekliği olabilir (173, 184). |
En iyileme toleransı · optim_tol |
ondalık · Gelişmiş | 10⁻¹⁰ | 10⁻¹⁴–10⁻³ | \lambda ve \alpha için optimize(tol =) (172, 174, 184). |
Karşıtlıklarda eşit dal uzunlukları · pic_esit_dal |
onay · Seçenekler | kapalı | açık / kapalı | caper::crunch(equal.branch.length =); yalnız karşıtlıklar (274). |
Dayanıklı karşıtlıklar eşiği · pic_robust |
ondalık · Seçenekler | 0 | 0–100 | 0 ise eleme yok; değilse crunch eşiksiz çağrılır ve caper::caic.robust ile mutlak öğrencileştirilmiş artığı eşiği aşan karşıtlıklar çıkarılır (272–280). |
Örnek ayar (ornek_param, satır 9): tur = tur, y = lg_yumurta, x = lg_erkek, agac_sutunu = agac. Öteki alanlar varsayılandadır.
Ağacın verilmesi. Ağaç Newick metnidir ve dal uzunlukları zorunludur. Uzun ağaçlar bir veri sütununa yazılır: sütunun boş olmayan hücreleri satır sırasıyla uç uca eklenir, sonda ; yoksa eklenir (99–103). Örnek veride ağaç ilk satırın tek hücresindedir. Metin birden çok ağaç içeriyorsa ilki kullanılır ve not yazılır (105).
Şablonun kendi denetimleri.
| Koşul | İleti (özet) | Satır |
|---|---|---|
| Veri açık değil | "Önce Veri sekmesinde bir veri açın." | 91 |
| Yanıt yordayıcılar arasında | "Yanıt yordayıcı olarak da seçilemez." | 93 |
| Tür sütunu yanıt ya da yordayıcı | "Tür sütunu yanıt ya da yordayıcı olamaz." | 94 |
| Ağaç sütunu da metni de boş | "Ağaç verilmedi …" | 102 |
| Newick okunamıyor ya da 2'den az uç | "Newick metni okunamadı …" | 106–107 |
| Dal uzunluğu yok ya da eksik | "Ağaçta dal uzunlukları yok ya da eksik …" | 108–109 |
| Negatif dal uzunluğu | "Ağaçta negatif dal uzunluğu var." | 110 |
| Aynı adlı iki uç | "Ağaçta aynı adlı uçlar var." | 113 |
| Yanıt ya da yordayıcı sayısal değil | "'…' sayısal olmalı." | 119 |
| Tür sütununda yinelenen ad | "her tür bir satır olmalı (tür ortalamalarını kullanın)" | 123 |
| Ağaçla eşleşen tür sayısı 4'ten az | "en az 4 tür gerekli" | 128 |
| Yanıt sabit / yordayıcı sabit | "Yanıt sabit …" / "'…' sabit; yordayıcı olamaz." | 135, 136 |
| n\le p+1 | "Tür sayısı parametre sayısından en az iki fazla olmalı." | 140 |
| Bir ucun kökten uzaklığı 0 | "Kökten uzaklığı 0 olan uç var …" | 142 |
| \mathbf C tekil | "Brown kovaryans matrisi tekil …" | 170 |
Durdurmayan notlar: eksik değerli türler çıkarılır ve sayısı yazılır (121); ağaçta bulunmayan türler çıkarılır, ilk onu adıyla yazılır (126); verisi olmayan uçlar ağaçtan budanır (130–131); ağaç ultrametrik değilse (144) ve çatallanmamış düğüm içeriyorsa (145) not; OU \alpha alt sınırdaysa not (213) ve üst sınırdaysa not (214); bir değişkenin sinyal \lambda'sı üst sınırdaysa not (259–261); yordayıcı yoksa karşıtlık regresyonu yapılmadığı notu (266); karşıtlıklar hesaplanamazsa paketin iletisiyle not (283).
Eksik değer: yanıtı ya da herhangi bir yordayıcısı eksik olan tür bütün çözümlemelerden çıkar; ağaç kalan türlere budanır ve üç çözümleme aynı tür kümesiyle yapılır.
72.3 Örnek veri
Dosya: _ornek/kiyikusu_agac.csv. Kıyı kuşlarının (Charadriiformes) 71 türünde yumurta ve ergin vücut kütleleri (Lislevand ve Thomas, 2006) ve bu türlerin dal uzunluklu ağacı; caper paketinin shorebird verisidir.
| Değişken | Rol | Tür (veri sekmesi) | Özet |
|---|---|---|---|
tur |
Tür adı | metin | 71 tür; adlar Cins_tur biçiminde. |
yumurta_kutlesi, erkek_kutlesi, disi_kutlesi |
kullanılmaz | sayısal | Gram: yumurta 5,8–76,0; erkek 20,3–740,3; dişi 22,2–788,0. |
lg_yumurta |
Yanıt | sayısal | \ln(yumurta kütlesi): 1,758–4,331; ortalama 2,866. |
lg_erkek |
Yordayıcı | sayısal | \ln(erkek kütlesi): 3,011–6,607; ortalama 4,701. |
lg_disi |
kullanılmaz (ek çalıştırmada yordayıcı) | sayısal | \ln(dişi kütlesi): 3,100–6,669. |
agac |
Ağaç sütunu | metin | Newick metni ilk satırda; öteki 70 hücre boş. |
Eksik değer yoktur. Ağaçta 71 uç ve 62 iç düğüm vardır; tam çatallanmış bir ağaçta 70 iç düğüm olurdu, yani ağaç çatallanmamış düğümler (politomi) içerir: beş düğümün ikiden çok çocuğu vardır. Ağaç yüksekliği (kökten uçlara) 81,872'dir; uçların kökten uzaklıkları yuvarlama nedeniyle 81,871997 ile 81,872000 arasında değişir. Şablon bu ağacı ultrametrik sayar (72.4.7).
Kategorik değişken yoktur; düzey sırası bu şablonda rol oynamaz. Türlerin dosyadaki sırası da önemsizdir: veri, ağacın uç sırasına göre yeniden dizilir (satır 133).
Bu bölümde kullanılan çalıştırmalar: (1) örnek ayar; (2) aynı ayar, başka bir çalıştırma tohumu; (3) x = lg_disi, lg_erkek (iki yordayıcı); (4) yordayıcısız; (5) guven = 0,90, nsim = 99, pic_esit_dal açık, pic_robust = 3; (6) pic_robust = 2; (7) satırları karıştırılmış veri; (8) memeli ev alanı verisi (_ornek/memeli_ev_alani.csv; 49 tür, tam çatallanmış ağaç), yordayıcısız ve lg_kutle yordayıcısıyla; (9) sınır durumları için türetilmiş veriler (sinyalsiz yanıt, ultrametrik olmayan ağaç, sıfır uzunluklu dal, eksikli veri, dört ve sekiz türlük ağaçlar).
72.4 Yöntem: formüller ve hesap adımları
Hesap sırası: (1) Newick metni okunur, tür adları eşleştirilir, eksikler çıkarılır, ağaç budanır; (2) ağaçtan \mathbf C matrisi kurulur; (3) Brown, \lambda ve OU modelleri için GLS uydurulur, \lambda ve \alpha en çok olabilirlikle bulunur; (4) \lambda için profil güven aralığı ve iki olabilirlik oranı testi hesaplanır; (5) modeller AIC ile karşılaştırılır; (6) her değişken için K ve \lambda sinyali hesaplanır; (7) bağımsız karşıtlıklar ve orijinden geçen regresyon; (8) tablolar ve üç şekil yazılır.
72.4.1 Ağaçtan kovaryans: \mathbf C matrisi
Brown hareketi modelinde bir özellik, her dal boyunca dal uzunluğuyla orantılı varyansla rastgele yürür. İki tür, kökten son ortak atalarına kadar aynı yürüyüşü paylaşır:
- t_{ij}: kökten i ve j türlerinin son ortak atasına kadar olan yol uzunluğu (ortak geçmiş).
- d_i: kökten i. uca yol uzunluğu (uç yüksekliği); ultrametrik ağaçta bütün d_i eşittir.
- \operatorname{Cov}(y_i,y_j)=\sigma^2C_{ij}: ortak geçmiş ne kadar uzunsa kovaryans o kadar büyüktür.
Koddaki tercih
C <- ape::vcv(tr) (satır 141). Örnek ağaçta aynı cinsten iki tür, Haematopus finschi ve H. unicolor için C_{ij}=70{,}80 (d_i=81{,}87'nin %86'sı), ağacın iki ana kolundaki türler için C_{ij}=0'dır. Çatallanmamış düğüm \mathbf C'yi tanımsız kılmaz; üç ya da daha çok soy aynı noktadan ayrılmış sayılır.
72.4.2 Genelleştirilmiş en küçük kareler
Verilen bir \mathbf V için:
- \mathbf r=\mathbf y-\mathbf X\hat{\boldsymbol\beta}: artıklar; p: katsayı sayısı (kesişim dahil).
- s^2: \sigma^2'nin yansız kestirimi; tablodaki
artik_SH=\sqrt{s^2}. - \ell: \sigma^2 yerine en çok olabilirlik kestirimi \mathrm{RSS}/n konmuş (profil) log-olabilirlik.
- \mathrm{RSS}_0: aynı \mathbf V ile yalnız kesişimli modelin artık kareler toplamı.
Neden standart hatada n-p, olabilirlikte n?
İki büyüklük iki ayrı iş görür. Katsayıların standart hatası ve t testi için \sigma^2'nin yansız kestirimi (n-p bölenli) kullanılır; bu, sıradan regresyondaki uygulamanın aynısıdır ve caper paketinin pgls çıktısıyla aynı sayıları verir. Modellerin karşılaştırılması (\lambda, \alpha, AIC) ise olabilirliğe dayanır; farklı \mathbf V'ler aynı ortalama yapısıyla karşılaştırıldığından en çok olabilirlik (n bölenli) log-olabilirliği kullanılır.
Koddaki tercih
gls_fit (satır 148–162) \mathbf V'nin Cholesky çarpanını alır (\mathbf V=\mathbf R^\top\mathbf R), veriyi \mathbf R^{-\top} ile dönüştürür ve sıradan en küçük kareler çözer; \ln|\mathbf V|=2\sum\ln R_{kk} (157). Cholesky başarısız olursa (tekil \mathbf V) uyum boş döner; Brown modelinde bu durum hata iletisidir (170), \lambda ve \alpha aramasında o noktanın log-olabilirliği -10^{10} sayılır (171, 183).
72.4.3 Pagel \lambda
\lambda, ağacın iç dallarını ölçekleyerek filogenetik bağıntının gücünü ayarlar (Pagel, 1999; Freckleton ve ark., 2002):
- \lambda=1: Brown hareketi (\mathbf V=\mathbf C); \lambda=0: türler bağımsız (köşegen \mathbf V; ultrametrik ağaçta sıradan regresyon).
- Ara değerler: artıklardaki akrabalık izi Brown modelinin öngördüğünden zayıftır.
- \hat\lambda: \ell(\lambda)'yı [10^{-6},\,1] aralığında en büyükleyen değer.
\lambda için iki olabilirlik oranı testi ve profil güven aralığı verilir:
- \mathrm{OO}_0, \mathrm{OO}_1: "\lambda=0" ve "\lambda=1" sıfır hipotezlerinin istatistikleri; p değerleri 1 serbestlik dereceli ki-kare dağılımından.
- \chi^2_{1,g}: güven düzeyi g için ki-kare kantili (g=0{,}95 için 3,8415; eşik 1,9207).
- Aralığın uçları
unirootile bulunur; \ell(\hat\lambda)-\ell(0) eşiği aşmıyorsa alt uç 0, \ell(\hat\lambda)-\ell(1) aşmıyorsa üst uç 1 yazılır.
Neden \lambda artıklara uygulanıyor, değişkenlere değil?
PGLS'nin varsayımı yanıtın kendisinin değil hataların ağaca göre bağıntılı olmasıdır (Revell, 2010). Yanıt ve yordayıcı ayrı ayrı güçlü sinyal taşısa bile, yordayıcı hesaba katıldıktan sonra artıklarda kalan sinyal daha zayıf olabilir. Regresyonla birlikte kestirilen \lambda bunu ölçer; değişken başına hesaplanan \lambda (72.4.6) ayrı bir sorunun cevabıdır. Örnekte iki değişkenin de sinyal \lambda'sı 1'dir, artıkların \lambda'sı 0,956.
Koddaki tercih
stats::optimize(ll_lam, c(1e-6, 1), maximum = TRUE, tol = optim_tol) (satır 174). Üst uç 1'dir; \ell(1)\ge\ell(\hat\lambda) ise \hat\lambda=1 alınır (176). Varsayılan tolerans 10^{-10}'dur; caper paketi daha kaba bir toleransla durduğundan aynı veride \hat\lambda'sı altıncı ondalıkta ayrışır (0,956218 ve 0,956224) ve katsayılar altıncı ondalıkta farklı görünür.
72.4.4 Ornstein–Uhlenbeck
OU modeli Brown hareketine bir çekim ekler: özellik bir en uygun değere doğru \alpha gücüyle geri çekilir (Hansen, 1997; Butler ve King, 2004). Kök değeri sabit alındığında kovaryans yapısı:
- d_i+d_j-2t_{ij}: iki türü ayıran yol uzunluğu; birinci çarpan, ayrıldıktan sonra benzerliğin üstel sönmesidir.
- (1-e^{-2\alpha t_{ij}})/(2\alpha): ortak geçmiş boyunca biriken varyans; \alpha büyüdükçe doyar.
- t_{1/2}: filogenetik yarılanma süresi; atasal etkinin yarıya inmesi için gereken süre (ağaçla aynı birimde).
- \alpha\to0 iken \mathbf V(\alpha)\to\mathbf C (Brown); \alpha\to\infty iken türler bağımsızlaşır.
Neden üst sınır ağaç yüksekliğine bağlı?
\alpha'nın anlamı ağacın zaman ölçeğine göredir: belirleyici olan \alpha T çarpımıdır (T ağaç yüksekliği). \alpha T=50'de yarılanma süresi ağaç yüksekliğinin %1,4'üdür; en yakın akrabalar dışında bütün türler bağımsız görünür ve olabilirlik artık \alpha'ya duyarlı değildir. Aramayı \alpha T\in[10^{-6},\ \texttt{ou\_ust}] aralığına sınırlamak, ağacın birimi (milyon yıl, ikame sayısı) ne olursa olsun aynı aralığı tarar.
Koddaki tercih
Arama \ln\alpha üzerinde yapılır: optimize(ll_ou, c(log(1e-6/Tm), log(ou_u/Tm))) (satır 184). Ortalama yapısı \mathbf X\boldsymbol\beta'dır; kök değeri en uygun değere eşit sayılır (Ho ve Ané'nin, 2014, "kök değeri sabit" modeli), bu yüzden ultrametrik olmayan ağaçta da aynı formül kullanılır. \hat\alpha alt sınırın iki katından küçükse "OU modeli Brown hareketinden ayırt edilemiyor" notu yazılır (187, 213). \hat\alpha arama aralığının üst sınırına (\hat\alpha T\ge0{,}99\,\texttt{ou\_ust}) dayanırsa da not yazılır (188, 214).
\hat\alpha sınırdaysa bir kestirim değildir
Tabloda \hat\alpha\cdot T çarpımı ou_ust değerine (varsayılan 50) eşitse arama üst sınırda durmuştur: veri yalnız "çekim çok güçlü" demektedir; \hat\alpha, yarılanma süresi, OU log-olabilirliği ve AIC'si sınırın nerede olduğuna bağlıdır. Kıyı kuşu ağacında sinyalsiz bir yanıtla \hat\alpha=0{,}6107=50/81{,}872, log-olabilirlik -106{,}998 çıkar; ou_ust = 5 ile -118{,}631, sınır 500 olsaydı -106{,}872 (\lambda=0 modelinin değeri). Bu durumda OU satırı yorumlanmaz; sonuç "özellik akrabalık izi taşımıyor" olarak \lambda ve K'den okunur. Şablon bu durumu not olarak da yazar (satır 214); isterseniz OU_alfa sütununu ağaç yüksekliğiyle çarparak kendiniz de denetleyebilirsiniz.
72.4.5 Model karşılaştırması
- k: katsayılar, \sigma^2 ve (varsa) \lambda ya da \alpha.
- Üç modelin ortalama yapısı aynıdır; yalnız \mathbf V değişir. Brown modeli hem \lambda=1 hem \alpha\to0 özel durumudur.
artik_SH sütunu modeller arasında karşılaştırılmaz: s^2, \mathbf V'nin ölçeğine bağlıdır (Brown'da dal uzunluğu birimi, OU'da yaklaşık 1/(2\alpha)). R^2 her modelin kendi \mathbf V'siyle hesaplanır; yalnız kesişimli modelde tanım gereği 0'dır.
72.4.6 Filogenetik sinyal: Blomberg K ve Pagel \lambda
Sinyal, yanıt ve her yordayıcı için ayrı ayrı hesaplanır. Blomberg, Garland ve Ives'in (2003) K'si, özelliğin gözlenen ağaç yapısının Brown hareketi altında beklenenle oranıdır:
- \hat a=\mathbf 1^\top\mathbf C^{-1}\mathbf x/\mathbf 1^\top\mathbf C^{-1}\mathbf 1: filogenetik ortalama (kökteki atasal değerin kestirimi).
- \mathrm{KO}_0: ağaç yok sayılarak hesaplanan kareler ortalaması; \mathrm{KO}: ağaç hesaba katılarak hesaplanan.
- K=1: Brown hareketinin öngördüğü kadar sinyal; K<1: akrabalar beklenenden az, K>1: beklenenden çok benzer.
K'nin anlamlılığı permütasyonla sınanır: değerler uçlar arasında rastgele karıştırılır, her karıştırmada K yeniden hesaplanır.
- K^{*}: karıştırılmış veride K; sıfır hipotezi "sinyal yok"tur (özellik ağaçtan bağımsız dağılmış).
- Paydadaki n_{\text{sim}}'in biri gözlenen düzendir; rastgele karıştırma sayısı n_{\text{sim}}-1'dir ve elde edilebilecek en küçük p değeri 1/n_{\text{sim}}'dir (n_{\text{sim}}=999 için 0,001001).
- "Gözlenene eşit ya da büyük" karşılaştırması göreli 10^{-9} toleransla yapılır: kardeş türlerin değerlerini yer değiştirmek K'yi matematiksel olarak değiştirmez ama kayan noktada son basamakta fark yaratabilir; toleranssız karşılaştırma bu düzenlerin bir kısmını sayamazdı. n!\le n_{\text{sim}} iken (n_{\text{sim}}=999 için n\le6) rastgele karıştırma yerine bütün n! düzen tek tek sayılır, p = (K'si gözlenene eşit ya da büyük düzen sayısı)/n! olur ve sonuç tohuma bağlı değildir (satır 222–233, 254). Hangi yolun kullanıldığı tablonun altındaki not satırında yazılır.
Değişken başına Pagel \lambda, yalnız kesişimli modelin \lambda'sıdır; "\lambda=0" olabilirlik oranıyla sınanır.
Koddaki tercih
İki ölçü de phytools::phylosig(tr, z, method = "K" | "lambda", test = TRUE) çağrısından gelir (satır 247–248). Paket \lambda'yı [0,\lambda_{\max}] aralığında arar: ağaç ape::is.ultrametric'in varsayılan toleransıyla ultrametrikse \lambda_{\max}, en büyük uç yüksekliğinin en büyük iç düğüm yüksekliğine oranıdır ve 1'den büyüktür; değilse \lambda_{\max}=1. Sinyal tablosundaki \lambda bu yüzden 1'i aşabilir; PGLS tablosundaki \lambda aşamaz. Paket aralığı on parçaya bölüp her parçada optimize'ı varsayılan toleransıyla çalıştırır; en büyük değer sınırdaysa paketin durduğu nokta sınırın yaklaşık 10^{-4} içinde kalır. Şablon, bulunan \hat\lambda sınırın 10^{-3} içindeyse son parçayı optim_tol toleransıyla yeniden arar ve sınır değerini de dener; olabilirliği büyük olanı alır (satır 235–243). Böylece örnek veride sinyal tablosundaki \hat\lambda ve log-olabilirlik PGLS tablosundakiyle aynıdır. Şablon, \hat\lambda\ge\lambda_{\max}-10^{-3} olan değişkenleri "üst sınırında" notuyla bildirir (257–261).
Tohum. K'nin p değeri çalıştırmanın tohumuna (seed) bağlıdır. Şablon formunda tohum alanı yoktur; tohum Kod panelindeki Tohum alanından verilir (Bölüm 1.3). Alan boşsa MerQuR+ her çalıştırmaya yeni bir tohum atar; kullanılan tohumu künyeye yazar ve betik adımına kaydeder; betik yeniden oynatıldığında aynı tohum kullanılır ve aynı p değeri çıkar (Bölüm 57). Bu bölümdeki sayılar, yürütücüye sabit tohum (2026) verilerek üretilmiştir. n!\le n_{\text{sim}} olan küçük ağaçlarda K'nin p değeri tam sayımdan geldiği için tohuma bağlı değildir. Şablonun başka hiçbir sonucu rastgelelik içermez.
72.4.7 Bağımsız karşıtlıklar
Felsenstein'ın (1985) yöntemi, bağıntılı n uç değerini bağımsız ve eş varyanslı farklara dönüştürür. Ağaç uçlardan köke doğru budanır; iki çocuklu her düğümde:
- x_1,x_2: iki çocuğun değerleri; v_1,v_2: çocuklara giden dalların uzunlukları.
- c: standartlaştırılmış karşıtlık; Brown hareketi altında varyansı \sigma^2'dir.
- \bar x: düğümün (atanın) değeri; dal uzunluğunun tersiyle ağırlıklı ortalama.
- v': düğümün kendi dalının, atasal değerin kestirim belirsizliği kadar uzatılmış uzunluğu.
Yanıtın karşıtlıkları yordayıcıların karşıtlıklarına orijinden geçen regresyonla bağlanır (Garland, Harvey ve Ives, 1992):
Neden kesişimsiz regresyon?
Bir karşıtlığın işareti keyfidir: çıkarma sırası değişince hem c_x hem c_y işaret değiştirir. Regresyon doğrusu bu simetriyi ancak orijinden geçerse korur. Ayrıca karşıtlıkların beklenen değeri sıfırdır; kesişim kestirilecek bir büyüklük değildir. Tam çatallanmış ağaçta bu regresyonun eğimi, standart hatası ve t değeri Brown modelli PGLS'ninkiyle birebir aynıdır; iki yöntem aynı modelin iki yazımıdır.
Koddaki tercih
caper::crunch(y ~ x1 + …, equal.branch.length = …) ve eşik varsa caper::caic.robust (satır 274–279). Çatallanmamış düğümde caper, Pagel'in (1992) yöntemini uygular: çocuklar, ilk yordayıcının değeri düğüm ortalamasının üstünde ve altında olanlar diye iki gruba ayrılır; her grubun ağırlıklı ortalaması ve etkin dal uzunluğu hesaplanır ve iki grup arasında tek karşıtlık alınır. Böylece her iç düğüm bir karşıtlık verir (örnekte 62). Politomili ağaçta karşıtlık regresyonu Brown PGLS'siyle artık aynı değildir ve sonuç yordayıcıların sırasına bağlıdır. Karşıtlıklar için bütün dal uzunlukları sıfırdan büyük olmalıdır; değilse karşıtlıklar atlanır ve paketin iletisi not olarak yazılır (283).
İki seçenek yalnız karşıtlıkları etkiler. Eşit dal uzunlukları: bütün dallar 2 uzunlukta sayılır; dal uzunluklarına güvenilmediğinde bir duyarlılık denetimidir. Dayanıklı karşıtlıklar: regresyonun öğrencileştirilmiş artıklarına göre uç karşıtlıklar elenir ve regresyon kalanlarla yeniden kurulur.
Dayanıklı karşıtlık eşiği nasıl çalışır
Şablon eşiği caper::crunch'a vermez: caper dayanıklı uyumu yalnız eşiği aşan pozitif bir öğrencileştirilmiş artık varsa başlatır; en uç artık negatifse hiçbir karşıtlığı çıkarmaz. Şablon crunch'ı eşiksiz çağırır, ardından caper::caic.robust ile öğrencileştirilmiş artığının mutlak değeri eşiği aşan bütün karşıtlıkları (pozitif ve negatif) bir kez çıkarır (satır 272–280); süreç yinelenmez. Örnek veride eşit dal uzunluklarıyla artıklar -3{,}745 ile 2{,}363 arasındadır: eşik 3 iken -3{,}745'lik karşıtlık çıkarılır, sd 60'a düşer ve eğim 0,7155 (SH 0,0331) olur; eleme olmasaydı eğim 0,6893 (SH 0,0356; sd 61) olurdu. Tablo başlığı "62 karşıtlıktan 1'i … dışlandı" biçiminde dışlanan sayısını yazar, bir not satırı eşiği ve sayıyı verir, şekilde dışlanan karşıtlıklar turuncu halkayla işaretlenir. Eşik 2 iken (çalıştırma 6) beş karşıtlık dışlanır, sd = 56.
72.5 Kod adım adım
| Satırlar | Ne yapar | Neden / dikkat |
|---|---|---|
| 1–88 | Üstbilgi: kimlik, açıklama, örnek veri ve ayar, on bir parametre. | Form buradan kurulur (Bölüm 1.2). |
| 89–113 | Ağaç: sütundan ya da metinden Newick, ape::read.tree, dal uzunluğu ve uç adı denetimleri. |
Uç adlarındaki boşluklar alt çizgiye çevrilir (111–112). |
| 115–145 | Veri: sütunlar seçilir, tür adları aynı kuralla düzeltilir, eksikler ve eşleşmeyenler çıkarılır, ağaç budanır, veri uç sırasına dizilir; \mathbf X, \mathbf C; ultrametriklik ve politomi notları. | Ultrametriklik sınaması kendi toleransıyladır: ağaç yüksekliğinin 10^{-6} katı (143). |
| 147–167 | GLS motoru gls_fit, \mathbf V(\lambda) ve \mathbf V(\alpha) kurucuları, R^2 yardımcısı. |
72.4.2–72.4.4. |
| 169–187 | Brown uyumu; \lambda en iyilemesi, uç denetimi, profil güven aralığı; OU en iyilemesi ve alt sınır bayrağı. | uniroot toleransı 10^{-10} (180–181). |
| 190–213 | Katsayı tablosu (üç model alt alta), model karşılaştırma tablosu, \lambda–OU tablosu; özet satırı. | Model adına \hat\lambda ve \hat\alpha arayüz diline göre yazılır (191). |
| 217–261 | Filogenetik sinyal: phylosig iki kez; tablo; üst sınır notu. |
phylosig hata verirse hücreler boş kalır (247–251). |
| 263–293 | Bağımsız karşıtlıklar: comparative.data, crunch, katsayı tablosu. |
Yordayıcı yoksa atlanır (264–266). |
| 295–316 | Üç şekil: ağaç ve uç değerleri; karşıtlık saçılımı; \lambda profil olabilirliği. | Karşıtlık şekli yalnız ilk yordayıcı içindir; doğru yalnız tek yordayıcıda çizilir (309). |
Konsola özet satırı yazılır (207–209): tür ve yordayıcı sayısı, ağacın ultrametrik olup olmadığı ve ikili mi politomili mi olduğu.
72.6 Elle hesap: örnek veride bağımsız yeniden hesap
Ara değerler dogrulama/filogenetik_karsilastirmali/elle_hesap.py ile, şablon kodu ve ape, caper, phytools paketleri kullanılmadan hesaplanmıştır: Newick metni ayrı bir ayrıştırıcıyla okunmuş, \mathbf C yol toplamlarından kurulmuş, GLS matris tersiyle çözülmüş, \lambda ve \alpha scipy ile en iyilenmiş, karşıtlıklar 72.4.7'deki adımların doğrudan uygulamasıyla bulunmuştur. R tarafında (r_dogrulama.R) başka paketler kullanılmıştır: caper::pgls ve nlme::gls (PGLS), geiger::fitContinuous (OU ve sinyal \lambda'sı), picante::Kcalc (K), ape::pic (tam çatallanmış ağaçta karşıtlıklar).
Adım 1 — \mathbf C matrisi. 71 × 71; köşegen 81,872; \ln|\mathbf C|=211{,}2165.
Adım 2 — Brown modeli. \hat{\boldsymbol\beta}=(-0{,}421775;\ 0{,}675619); \mathrm{RSS}=0{,}077114; yalnız kesişimli modelde \mathrm{RSS}_0=0{,}498576.
Eğimin standart hatası 0,034791, t=19{,}4194 (sd 69). \mathrm{AIC}=-2\cdot35{,}939903+2\cdot3=-65{,}879807.
Adım 3 — Pagel \lambda. \ell(\lambda)'nın en büyük değeri \hat\lambda=0{,}956224'te 37,906689'dur; uçlarda \ell(10^{-6})=1{,}212738 ve \ell(1)=35{,}939903.
%95 profil aralığı için eşik 3{,}8415/2=1{,}9207'dir; \ell(\lambda)=35{,}985959 eşitliğinin kökleri 0{,}867067 ve 0{,}999660'tır. Bu \lambda'da katsayılar (-0{,}486125;\ 0{,}688644), standart hataları (0{,}205688;\ 0{,}032647), R^2=0{,}865742.
Adım 4 — OU. Log-olabilirlik \alpha T büyüdükçe tekdüze azalır: \alpha T=10^{-6} için 35,939903; 0,01 için 35,936118; 0,1 için 35,885675; 1 için 33,787008; 10 için 5,385964; 50 için 1,319072. En büyük değer alt sınırdadır: \hat\alpha=10^{-6}/81{,}872=1{,}22\cdot10^{-8}; model Brown hareketiyle aynı katsayıları ve aynı log-olabilirliği verir, fazladan bir parametre saydığı için AIC'si 2 daha büyüktür.
Adım 5 — Blomberg K (lg_yumurta). Filogenetik ortalama \hat a=2{,}915258; \operatorname{iz}(\mathbf C)=5812{,}912; \mathbf 1^\top\mathbf C^{-1}\mathbf 1=0{,}0499475.
998 rastgele karıştırmada K^{*}'nin ortancası 0,178, en büyüğü 0,278'dir; hiçbiri gözlenen değere ulaşmaz ve p=1/999=0{,}001001.
Adım 6 — Bir karşıtlık. Kardeş türler Numenius arquata ve N. americanus (dalları 6,404): \ln yumurta 4,330733 ve 4,290459; \ln erkek kütlesi 6,495266 ve 6,461624.
Atanın değerleri iki türün ortalamasıdır (dallar eşit); atanın 3,746'lık dalı 6{,}404\cdot6{,}404/12{,}808=3{,}202 uzatılarak 6,948 olur.
Adım 7 — Karşıtlık regresyonu. 62 karşıtlıkta \sum c_xc_y=0{,}591267, \sum c_x^2=0{,}878373, \sum c_y^2=0{,}472368:
t=18{,}0689 (sd 61). Ağaç politomili olduğundan eğim Brown PGLS'sinin eğiminden (0,675619) biraz farklıdır.
Adım 8 — Öteki çalıştırmalar. İki yordayıcıyla (çalıştırma 3) karşıtlık katsayıları -0{,}220313 (SH 0,234892) ve 0{,}892614 (SH 0,236957); caper paketinin belgesinde aynı model için -0{,}2203 (0,2349) ve 0{,}8926 (0,2370) verilir. Bu modelde OU en büyük olabilirliğe aralığın içinde ulaşır: \hat\alpha=7{,}34\cdot10^{-4} (yarılanma süresi 944; ağaç yüksekliğinin 11,5 katı), log-olabilirlik 36,471787; Brown'ınkinden yalnız 0,005 fazladır. Memeli ev alanı verisinde (çalıştırma 8, yordayıcısız) \hat\alpha=0{,}062920, log-olabilirlik -96{,}554025, kesişim 2,529030; aynı veriye lg_kutle eklendiğinde ağaç tam çatallanmış olduğundan karşıtlık eğimi ile Brown PGLS eğimi aynıdır: 1,261576 (SH 0,176772).
72.6.1 Doğrulama: MerQuR+, Python ve R
MerQuR+ sütunu şablonun tablolarından tam hassasiyetle okunmuştur (çalıştırmalar 1, 2, 3, 5, 6 ve 8). Permütasyon satırlarında Python ve R, şablonla aynı tohumu ve aynı karıştırma sırasını kullanır; Python tarafında R'nin rastgele sayı üreteci ve sample algoritması yeniden kurulmuştur. Çatallanmamış ağaçtaki karşıtlıklar için R sütunu boştur: Pagel yöntemini uygulayan bağımsız bir R paketi kullanılmamıştır.
| Büyüklük | MerQuR+ | Python (bağımsız) | R (bağımsız) | En büyük fark | |
|---|---|---|---|---|---|
| Brown: kesişim | −0,42177474 | −0,42177474 | −0,42177474 | 1,4e−14 | ✓ |
| Brown: kesişim SH | 0,22782521 | 0,22782521 | 0,22782521 | 2,8e−16 | ✓ |
| Brown: eğim | 0,67561935 | 0,67561935 | 0,67561935 | 1,1e−15 | ✓ |
| Brown: eğim SH | 0,03479087 | 0,03479087 | 0,03479087 | 2,8e−17 | ✓ |
| Brown: eğim t | 19,4194436 | 19,4194436 | 19,4194436 | 2,0e−15 | ✓ |
| Brown: log-olabilirlik | 35,93990347 | 35,93990347 | 35,93990347 | 1,1e−10 | ✓ |
| Brown: artık SH | 0,03343045 | 0,03343045 | 0,03343045 | 4,9e−17 | ✓ |
| Brown: R^2 | 0,84533129 | 0,84533129 | 0,84533129 | 1,1e−16 | ✓ |
| Brown: AIC | −65,87980695 | −65,87980695 | −65,87980694 | 1,2e−10 | ✓ |
| Pagel \hat\lambda | 0,9562237 | 0,9562237 | 0,9562237 | 7,9e−10 | ✓ |
| \lambda modeli: kesişim | −0,48612482 | −0,48612482 | −0,48612482 | 5,2e−10 | ✓ |
| \lambda modeli: kesişim SH | 0,20568768 | 0,20568768 | 0,20568768 | 2,4e−10 | ✓ |
| \lambda modeli: eğim | 0,68864412 | 0,68864412 | 0,68864412 | 1,1e−10 | ✓ |
| \lambda modeli: eğim SH | 0,03264717 | 0,03264717 | 0,03264717 | 2,2e−11 | ✓ |
| \lambda modeli: log-olabilirlik | 37,90668887 | 37,90668887 | 37,90668887 | 4,0e−12 | ✓ |
| \lambda modeli: R^2 | 0,86574234 | 0,86574234 | 0,86574234 | 1,9e−10 | ✓ |
| \lambda %95 GA alt | 0,86706672 | 0,86706672 | 0,86706672 | 3,9e−10 | ✓ |
| \lambda %95 GA üst | 0,99965985 | 0,99965985 | 0,99965985 | 2,8e−11 | ✓ |
| OO istatistiği, \lambda=0 | 73,38790223 | 73,38790223 | 73,38790251 | 3,7e−9 | ✓ |
| OO istatistiği, \lambda=1 | 3,9335708 | 3,9335708 | 3,93357081 | 2,0e−9 | ✓ |
| p (\lambda=1) | 0,04733134 | 0,04733134 | 0,04733134 | 2,2e−10 | ✓ |
| OU: log-olabilirlik (\alpha alt sınırda; R: Brown) | 35,93990311 | 35,93990311 | 35,93990347 | 9,9e−9 | ✓ |
| OU: eğim (\alpha alt sınırda; R: Brown) | 0,67561935 | 0,67561935 | 0,67561935 | 8,0e−9 | ✓ |
| \lambda %90 GA alt | 0,88580643 | 0,88580643 | 0,88580643 | 3,2e−10 | ✓ |
| \lambda %90 GA üst | 0,99473151 | 0,99473151 | 0,99473151 | 1,6e−11 | ✓ |
| Blomberg K: lg_yumurta | 1,07113776 | 1,07113776 | 1,07113776 | 9,3e−15 | ✓ |
| K permütasyon p (999): lg_yumurta | 0,001001 | 0,001001 | 0,001001 | 1,1e−18 | ✓ |
| Blomberg K: lg_erkek | 1,16550753 | 1,16550753 | 1,16550753 | 8,6e−15 | ✓ |
| K permütasyon p (999): lg_erkek | 0,001001 | 0,001001 | 0,001001 | 1,1e−18 | ✓ |
| K permütasyon p (99): lg_yumurta | 0,01010101 | 0,01010101 | 0,01010101 | 1,7e−18 | ✓ |
| K permütasyon p, başka tohum (7): lg_yumurta | 0,001001 | 0,001001 | — | 1,1e−18 | ✓ |
| Sinyal: log-olabilirlik, şablonun \hat\lambda'sında (lg_yumurta) | −30,3197741 | −30,3197741 | −30,3197741 | 3,5e−15 | ✓ |
| Sinyal \hat\lambda: lg_yumurta | 1 | 1 | 1 | 0 | ✓ |
| Sinyal log-olabilirliği (en büyük): lg_yumurta | −30,3197741 | −30,3197741 | −30,3197741 | 1,7e−14 | ✓ |
| Karşıtlık regresyonu: eğim | 0,67313917 | 0,67313917 | — | 4,4e−16 | ✓ |
| Karşıtlık regresyonu: SH | 0,03725405 | 0,03725405 | — | 4,2e−17 | ✓ |
| Karşıtlık regresyonu: t | 18,06888646 | 18,06888646 | — | 1,6e−15 | ✓ |
| Karşıtlık, eşit dal uzunluğu ve eşik 3: eğim | 0,71546419 | 0,71546419 | — | 6,7e−16 | ✓ |
| Karşıtlık, eşit dal uzunluğu ve eşik 3: SH | 0,03308908 | 0,03308908 | — | 6,9e−18 | ✓ |
| Karşıtlık, dayanıklı (eşik 2): eğim | 0,66007177 | 0,66007177 | — | 2,2e−16 | ✓ |
| Karşıtlık, dayanıklı (eşik 2): SH | 0,03177283 | 0,03177283 | — | 6,9e−18 | ✓ |
| İki yordayıcı, Brown: lg_disi | −0,22254962 | −0,22254962 | — | 5,9e−14 | ✓ |
| İki yordayıcı, Brown: lg_erkek | 0,89708163 | 0,89708163 | — | 5,9e−14 | ✓ |
| İki yordayıcı, OU \hat\alpha | 7,342326·10−4 | 7,342322·10−4 | — | 4,3e−10 | ✓ |
| İki yordayıcı, OU log-olabilirlik | 36,47178734 | 36,47178734 | — | 1,9e−16 | ✓ |
| İki yordayıcı, karşıtlık: lg_disi | −0,22031308 | −0,22031308 | — | 3,2e−15 | ✓ |
| İki yordayıcı, karşıtlık: lg_erkek | 0,89261437 | 0,89261437 | — | 2,6e−15 | ✓ |
| İki yordayıcı, karşıtlık SH: lg_erkek | 0,23695713 | 0,23695713 | — | 4,0e−15 | ✓ |
| Memeli verisi, OU \hat\alpha | 0,06291984 | 0,06291983 | 0,06291984 | 7,8e−9 | ✓ |
| Memeli verisi, OU log-olabilirlik | −96,55402477 | −96,55402477 | −96,55402477 | 5,9e−16 | ✓ |
| Memeli verisi, OU kesişim | 2,52902996 | 2,52902995 | 2,52902996 | 4,0e−9 | ✓ |
| Memeli verisi, Brown log-olabilirlik | −102,48160996 | −102,48160996 | −102,48160996 | 1,5e−15 | ✓ |
| Memeli verisi, \hat\lambda (PGLS) | 0,41598148 | 0,4159814 | — | 7,6e−8 | ✓ |
| Memeli verisi, \hat\lambda (sinyal) | 0,41598219 | 0,41598141 | — | 7,8e−7 | ✓ |
| Memeli verisi, K | 0,25680451 | 0,25680451 | 0,25680451 | 5,0e−16 | ✓ |
| Memeli verisi, K permütasyon p | 0,002002 | 0,002002 | 0,002002 | 2,2e−18 | ✓ |
| Memeli verisi (ikili ağaç), karşıtlık eğimi | 1,26157619 | 1,26157619 | 1,26157619 | 3,5e−16 | ✓ |
| Memeli verisi (ikili ağaç), karşıtlık SH | 0,17677172 | 0,17677172 | 0,17677172 | 3,1e−16 | ✓ |
Ölçütü karşılayan: 58/58. Python: kendi Newick ayrıştırıcısı, C matrisi, matris tersiyle GLS, scipy ile sınırlı en iyileme, Blomberg K tanımı, Pagel yöntemiyle karşıtlıklar; permütasyonlar R'nin rastgele sayı akışı yeniden kurularak. R: caper::pgls (katsayı, SH, R^2), nlme::gls (log-olabilirlik, \lambda profili), geiger::fitContinuous (OU, sinyal \lambda), picante::Kcalc, ape::pic. Bütün satırlar ölçütü karşılar.
Bütün satırlar ölçütü karşılar. Sinyal tablosundaki \lambda için lg_yumurta'nın en büyük olabilirliği \lambda=1'dedir (-30{,}319774); paketin en iyileyicisi sınıra yaklaşırken ondan yaklaşık 10^{-4} önce durur, şablon son parçayı yeniden arayarak \hat\lambda=1 ve -30{,}319774 yazar (72.4.6); bağımsız Python ve R aynı değerleri verir ve PGLS tablosundaki \hat\lambda ile aynıdır. Değişken yine "üst sınırında" notuyla bildirilir. Eşit dal uzunlukları ve eşik 3 ile (çalıştırma 5) karşıtlık eğimi 0,715464 (SH 0,033089), bağımsız hesapla aynıdır.
Satırları karıştırılmış veriyle (çalıştırma 7) bütün tablolar örnek dosyanınkiyle aynıdır.
72.7 Çıktıyı okuma
Örnek ayarın konsol metni:
Not: ağaçta çatallanmamış düğüm (politomi) var.
Filogenetik karşılaştırmalı çözümleme: 71 tür, 1 yordayıcı; ağaç ultrametrik, politomili
Not: OU α alt sınırda; OU modeli Brown hareketinden ayırt edilemiyor.
Not: K'nin p değeri, permütasyonlarda gözlenene eşit K değerleri kayan nokta toleransıyla (1e-9 göreli) sayılarak hesaplandı; paydadaki permütasyonlardan biri gözlenen düzendir.
Not: lg_yumurta, lg_erkek için Pagel λ üst sınırında (λ_max = 1,0000); kestirim sınırda olduğundan bu değişkenlerin evrimi Brown hareketinden (λ = 1) ayırt edilemiyor.
Tablolar (sayılar altı ondalığa ya da beş anlamlı basamağa kısaltılmış; tablolarda tam hassasiyet saklanır):
PGLS katsayıları (SH: σ² = r'V⁻¹r/(n − p))
             model        terim   kestirim        SH          t             p
    Brown hareketi  (Intercept)  -0.421775  0.227825  -1.851308  6.840489e-02
    Brown hareketi     lg_erkek   0.675619  0.034791  19.419444  1.123832e-29
  Pagel λ = 0,9562  (Intercept)  -0.486125  0.205688  -2.363412  2.093004e-02
  Pagel λ = 0,9562     lg_erkek   0.688644  0.032647  21.093533  8.417870e-32
 OU α = 1,2353e-08  (Intercept)  -0.421775  0.227825  -1.851309  6.840480e-02
 OU α = 1,2353e-08     lg_erkek   0.675619  0.034791  19.419444  1.123832e-29

Evrim modellerinin karşılaştırılması (ML log-olabilirlik, AIC)
              model    parametre    logLik k artik_SH       R2        AIC     dAIC
     Brown hareketi          NaN 35.939903 3 0.033430 0.845331 -65.879807 1.933571
            Pagel λ 9.562237e-01 37.906689 4 0.029049 0.865742 -67.813378 0.000000
 Ornstein–Uhlenbeck 1.235277e-08 35.939903 4 0.033430 0.845331 -63.879806 3.933572

Pagel λ: en çok olabilirlik, %95 profil GA'sı ve olabilirlik oranı testleri; OU α ve yarılanma süresi
   lambda   GA_alt   GA_ust LR_lambda0  p_lambda0 LR_lambda1 p_lambda1    OU_alfa OU_yarilanma
 0.956224 0.867067 0.999660    73.3879 1.0652e-17     3.9336  0.047331 1.2353e-08   5.6113e+07

Filogenetik sinyal: Blomberg K (999 permütasyon) ve Pagel λ (olabilirlik oranı testi)
   degisken         K       p_K    lambda        logL  LR_lambda0      p_lambda
 lg_yumurta  1.071138  0.001001  1.000000  -30.319774   87.153448  1.004198e-20
   lg_erkek  1.165508  0.001001  1.000000  -52.195735   89.155834  3.649054e-21

Bağımsız karşıtlıklar regresyonu (orijinden geçen; 62 karşıtlık, sd = 61)
    terim  kestirim        SH          t             p
 lg_erkek  0.673139  0.037254  18.068886  3.582693e-26
| Öğe | Ne yazar | Nasıl yorumlanır |
|---|---|---|
| Özet satırı | Tür ve yordayıcı sayısı; ağacın biçimi | Tür sayısı beklenenden azsa üstteki notlar (eşleşmeyen, eksik) okunur. |
| PGLS katsayıları | Üç model için kestirim, SH, t, p (sd n-p) | Raporlanacak model, karşılaştırma tablosunda en düşük AIC'li olandır. Eğimler modeller arasında yakınsa sonuç model seçimine dayanıklıdır. |
| Model karşılaştırması | \hat\lambda ya da \hat\alpha, log-olabilirlik, k, artık SH, R^2, AIC, \DeltaAIC | \DeltaAIC < 2 olan modeller verice benzer desteklenir. Örnekte \lambda en iyi, Brown 1,93 geride. artik_SH modeller arasında karşılaştırılmaz. |
| \lambda tablosu | \hat\lambda, profil aralığı, iki olabilirlik oranı testi; OU \hat\alpha ve yarılanma süresi | p_lambda0 küçükse akrabalığı hesaba katmak gereklidir; p_lambda1 küçükse artıklardaki sinyal Brown'ın öngördüğünden zayıftır. Yarılanma süresi ağaç yüksekliğinden çok büyükse OU, Brown'dan ayırt edilemez. |
| Sinyal tablosu | Her değişken için K, permütasyon p'si, \hat\lambda, log-olabilirlik, \lambda=0 testi | K\approx1 ve \lambda\approx1: özellik Brown hareketine uygun biçimde ağacı izler. p_K'nin alt sınırı 1/n_{\text{sim}}'dir. |
| Karşıtlık regresyonu | Orijinden geçen regresyonun katsayıları; başlıkta karşıtlık sayısı ve sd | Brown PGLS'sinin eğimiyle karşılaştırılır; tam çatallanmış ağaçta aynıdır. |
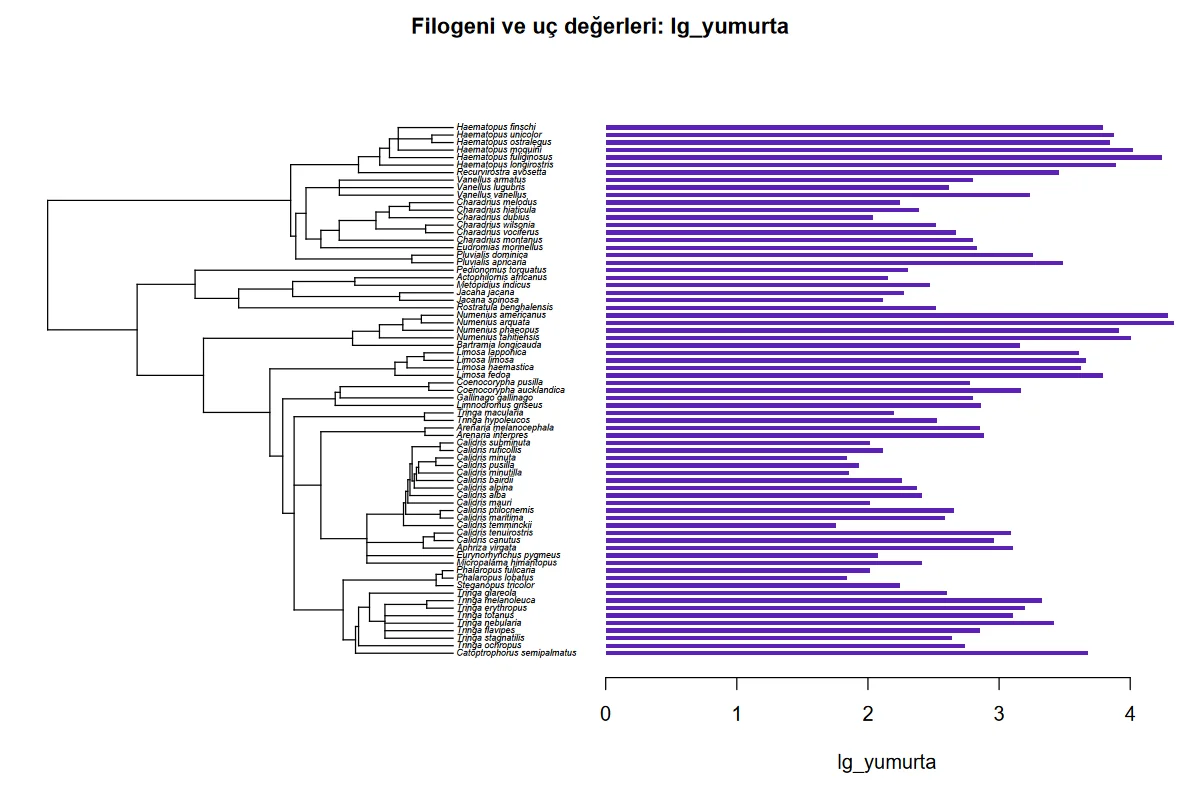
| Şekil 1 | Ağaç ve uçlarda yanıt değerleri (çubuk) | Yakın akrabaların çubukları benzer uzunluktaysa sinyal gözle görülür. |
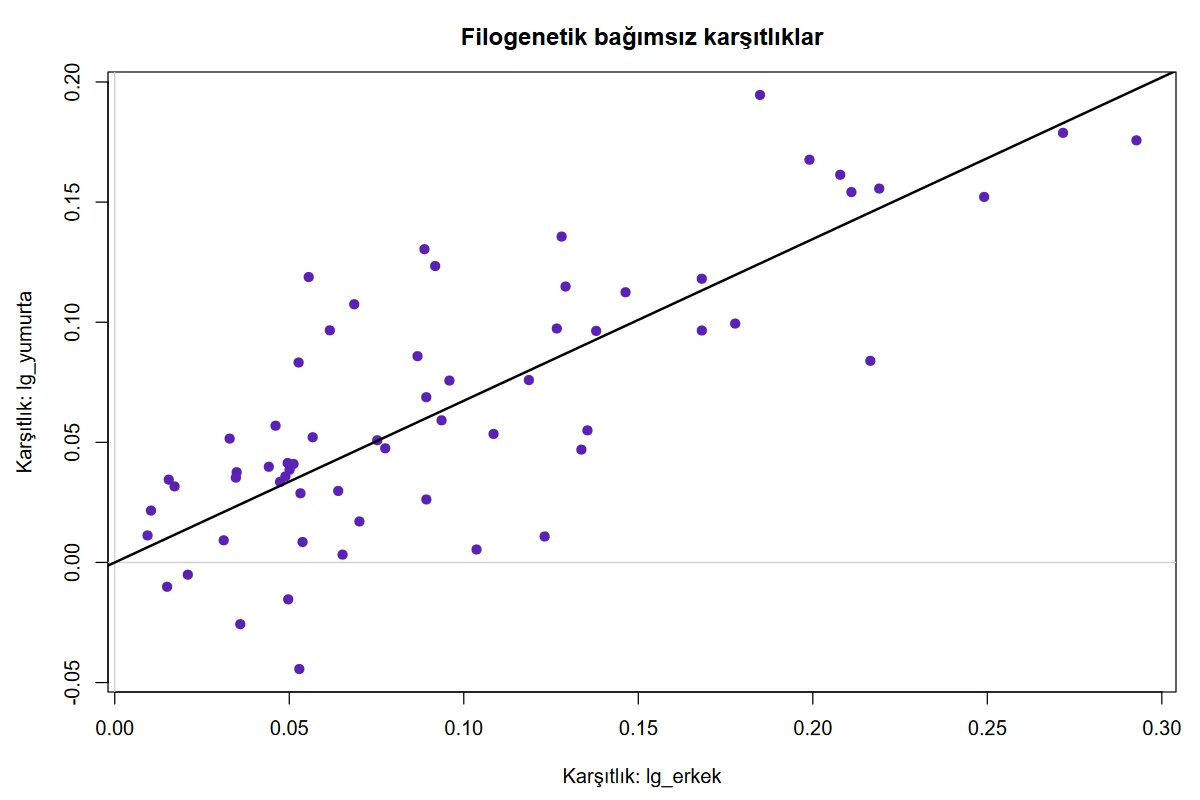
| Şekil 2 | Yanıt karşıtlıklarına karşı ilk yordayıcının karşıtlıkları ve regresyon doğrusu | Doğrudan uzak tek tük noktalar etkili düğümlerdir. |
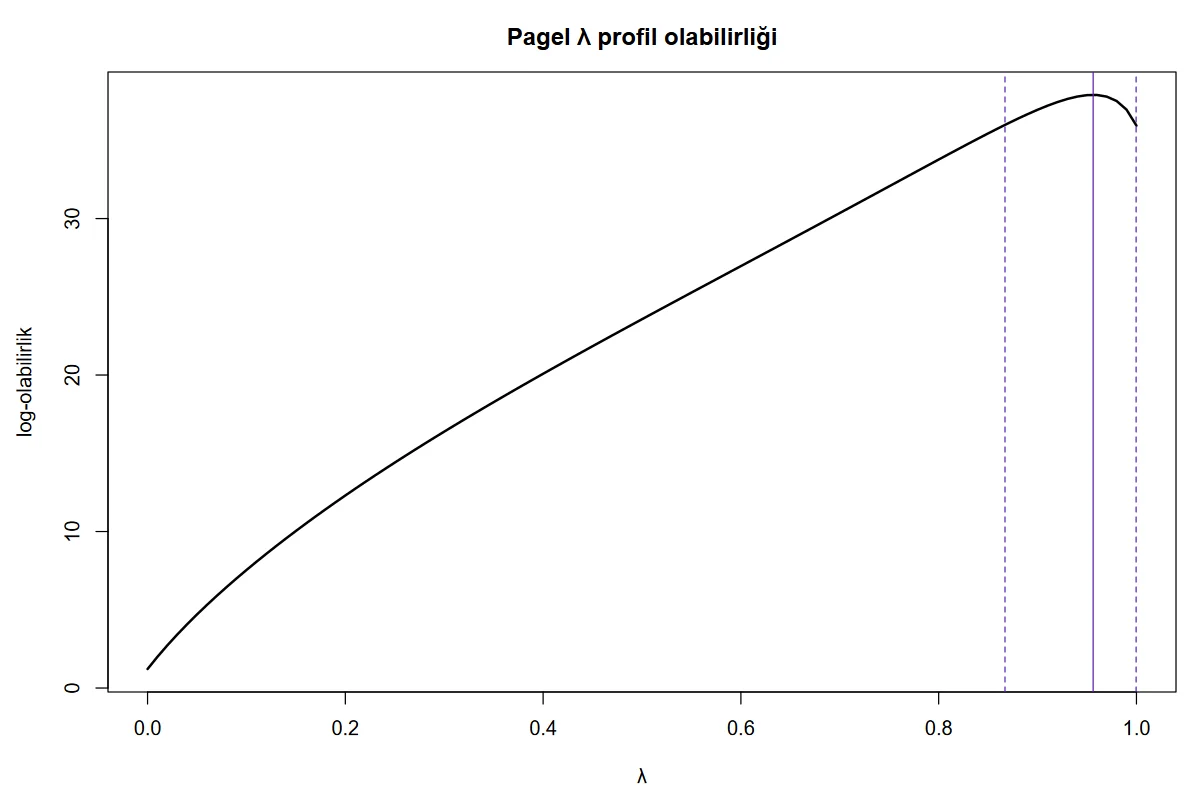
| Şekil 3 | \lambda profil log-olabilirliği; düz çizgi \hat\lambda, kesikli çizgiler güven sınırları | Eğri 1'e doğru hâlâ yükseliyorsa \hat\lambda sınırdadır. |
Şekil 72.1. Şablonun çizdiği filogeni ve uç değerleri (örnek veri: 71 kıyı kuşu türü, \ln yumurta kütlesi). Aynı cinsin türlerinde çubuklar benzer uzunluktadır: güçlü filogenetik sinyal.
Şekil 72.2. Bağımsız karşıtlıklar: \ln yumurta kütlesi karşıtlıklarına karşı \ln erkek kütlesi karşıtlıkları ve orijinden geçen regresyon doğrusu (62 karşıtlık).
Şekil 72.3. Pagel \lambda profil log-olabilirliği. Düz çizgi \hat\lambda=0{,}956; kesikli çizgiler %95 güven sınırları (0,867 ve 0,9997).
Rapor cümlesi (örnek ayar):
Yetmiş bir kıyı kuşu türünde yumurta kütlesi ile erkek vücut kütlesi arasındaki ilişki, türlerin akrabalığı hesaba katılarak filogenetik genelleştirilmiş en küçük karelerle incelendi. Pagel \lambda modeli en düşük AIC'yi verdi (\hat\lambda = 0{,}956; %95 profil GA 0,867–1,000; Brown modeline göre \DeltaAIC = 1,93). Bu modelde \ln yumurta kütlesi \ln erkek kütlesiyle arttı (eğim = 0,689; SH = 0,033; t_{69} = 21{,}09; p < 0{,}001; R^2 = 0{,}866). Eğimin 1'den küçük olması, iri türlerde yumurtanın vücuda oranla küçüldüğünü gösterir. İki özellik de güçlü filogenetik sinyal taşıyordu (Blomberg K = 1,07 ve 1,17; 999 permütasyonla p = 0{,}001). Bağımsız karşıtlıklar benzer bir eğim verdi (0,673; SH = 0,037).
72.8 Sık hatalar ve tuzaklar
- Tür adlarının ağaçla eşleşmemesi. Eşleşme harfi harfinedir; yalnız boşluk ve alt çizgi eşdeğer sayılır. "L. argentatus" ile "Larus_argentatus" eşleşmez. Eşleşmeyen türler notla çıkarılır ve çözümleme kalanlarla sürer; özet satırındaki tür sayısı her zaman denetlenir.
- Aynı türü birden çok satırda vermek. Şablon durur. Önce tür ortalamaları alınır.
- Ağacı birden çok hücreye bölüp veriyi sıralamak. Hücreler satır sırasıyla birleştirilir; veri sekmesinde bir sütuna göre sıralama parçaların sırasını bozar ve Newick okunamaz. Ağaç tek hücrede tutulur ya da veri ağaç yazıldıktan sonra sıralanmaz.
- Dal uzunluğu olmayan ya da keyfi dal uzunluklu ağaç. Bütün sonuçlar dal uzunluklarına dayanır. Uzunluklar güvenilir değilse karşıtlıklar için "eşit dal uzunlukları" seçeneğiyle duyarlılığa bakılır; PGLS ve sinyal için böyle bir seçenek yoktur.
- Sağa çarpık özellikleri dönüştürmeden kullanmak. Kütle, alan, süre gibi özelliklerde Brown hareketi varsayımı logaritmik ölçekte anlamlıdır. Örnek verinin sütunları bu yüzden doğal logaritmadır.
- Kategorik yordayıcıyı olduğu gibi seçmek. Yordayıcılar sayısal olmalıdır; iki düzeyli bir etken 0/1 sütununa çevrilir. Sütun veri sekmesinde "kategorik" türdeyse şablon "sayısal olmalı" iletisiyle durur.
- PGLS'deki \lambda ile sinyal tablosundaki \lambda'yı karıştırmak. Birincisi regresyon artıklarının, ikincisi her değişkenin tek başına sinyalidir; aralıkları da farklıdır (birincisi en çok 1, ikincisi tam ultrametrik ağaçta 1'i aşabilir). Model seçimi birincisine dayanır.
- Sınırdaki \hat\alpha'yı yorumlamak. Alt sınırda OU, Brown'dır; üst sınırda (\hat\alpha T=\texttt{ou\_ust}) özellik ağaçtan bağımsızdır ve OU satırının log-olabilirliği sınıra bağlıdır (72.4.4). Yarılanma süresi yalnız \hat\alpha aralığın içindeyken raporlanır.
- OU'yu küçük ağaçta Brown'a tercih etmek. OU, az sayıda türde ve ölçüm hatası varken Brown'a karşı gereğinden sık seçilir (Cooper ve ark., 2016). \DeltaAIC küçükse yalın model yeğlenir.
artik_SHsütunuyla model karşılaştırmak. Bu sütun her modelin kendi kovaryans ölçeğindedir. Karşılaştırma log-olabilirlik ve AIC ile yapılır.- Dayanıklı karşıtlık eşiğinin uygulandığını varsaymak. Eleme yapılıp yapılmadığı sd'den okunur (72.4.7). Eşik yazıldığı hâlde sd değişmemişse hiçbir karşıtlık çıkarılmamıştır.
- Sıfır uzunluklu dallar. Karşıtlıklar hesaplanamaz ve not yazılır; PGLS ve sinyal sürer. Sıfır uzunluklu iki kardeş uç ise \mathbf C'yi tekil yapar ve çalıştırmayı durdurur. Çok kısa bir pozitif uzunluk verilir ya da "eşit dal uzunlukları" seçilir.
- Çok küçük ağaçta K'nin p değerine güvenmek. Beş altı türde olası düzen sayısı azdır; p değeri kaba ve simetrik ağaçlarda aşağı yanlıdır (72.9 S8). Sinyal testleri için en az 20 tür önerilir (Blomberg ve ark., 2003).
- p = 0,001'i "tam değer" sanmak. 999 ile elde edilebilecek en küçük değerdir; daha küçük bir üst sınır için
nsimbüyütülür.
72.9 Uzman soruları
S1. PGLS ile bağımsız karşıtlıklar aynı şey mi; neden ikisi de veriliyor?
Tam çatallanmış ağaçta ve Brown modelinde aynıdır: karşıtlıklar, \mathbf C^{-1/2} dönüşümünün ağaç üzerinde adım adım yapılmış biçimidir ve orijinden geçen regresyon aynı eğimi, aynı standart hatayı verir (memeli verisinde ikisi de 1,261576 ve 0,176772). Fark iki yerde doğar. Politomide karşıtlık yöntemi ek bir kurala (Pagel, 1992) ihtiyaç duyar ve sonuç PGLS'den hafifçe ayrılır (örnekte 0,6731 ve 0,6756). \lambda ve OU modellerinin karşıtlık karşılığı ise bu şablonda yoktur. Karşıtlıklar yine de değerlidir: şekil 2, sonucu hangi düğümlerin taşıdığını gösterir ve literatürün büyük kısmı bu yöntemle yazılmıştır.
S2. \lambda'nın %95 aralığı 0,867–0,9997 ve "\lambda=1" testi p = 0,047. Brown modeli reddedilmeli mi?
İki bilgi aynı şeyi söyler: profil aralığı 1'i kıl payı dışlar, olabilirlik oranı testi 0,05'in hemen altındadır. AIC farkı 1,93'tür; yani fazladan bir parametrenin bedeli düşüldükten sonra iki model hemen hemen eşit desteklenir. Ayrıca \lambda=1 parametre uzayının sınırındadır; sınırda olabilirlik oranının dağılımı tam \chi^2_1 değildir ve p değeri yaklaşık okunur. Uygulamada önemli olan eğimin iki modelde de aynı sonuca varmasıdır (0,676 ve 0,689).
S3. Katsayıların standart hatası \lambda'nın belirsizliğini içeriyor mu?
İçermez. Standart hatalar \hat\lambda bilinen bir sabitmiş gibi, o \lambda'daki \mathbf V ile hesaplanır; t testinin serbestlik derecesi de n-p'dir. \lambda iyi belirlenmişse (dar profil aralığı) etkisi küçüktür. Geniş aralıkta, aralığın iki ucundaki \lambda değerleriyle eğimin ne kadar değiştiğine bakmak iyi bir duyarlılık denetimidir: örnekte \lambda=1 ile eğim 0,676, \hat\lambda ile 0,689'dur.
S4. PGLS'de R^2 nasıl okunur?
Buradaki R^2, aynı kovaryans yapısıyla yalnız kesişimli modele göre artık kareler toplamındaki azalmadır; kareler \mathbf V^{-1} ile tartılır. Sıradan regresyonun R^2'siyle aynı ölçekte değildir ve farklı \mathbf V'li modeller arasında karşılaştırılmaz: Brown için 0,845, \lambda için 0,866 değerleri "hangi model daha iyi" sorusunun cevabı değildir. Yordayıcının açıkladığı payın kaba bir göstergesi olarak, modelin adıyla birlikte verilir.
S5. K>1 ne demek; 1,07 ile 1,17 arasında fark var mı?
K>1, yakın akrabaların Brown hareketinin öngördüğünden de çok benzediğini, varyansın daha çok derin dallar arasında toplandığını gösterir. K'nin örnekleme dağılımı geniştir; 71 türde 1,07 ile 1,17 birbirinden ayırt edilemez ve ikisi de "Brown'a uygun" diye okunur. Permütasyon testi yalnız "K sıfır sinyalden büyük mü" sorusunu sınar; "K=1" hipotezini sınamaz.
S6. Politomiler sonuçları nasıl etkiler?
PGLS ve K için politomi, soyların aynı anda ayrıldığı varsayımıdır; \mathbf C buna göre kurulur ve hesap tanımlıdır. Politomi gerçek bir eşzamanlı ayrılmayı değil, çözülememiş bir dallanmayı gösteriyorsa ortak geçmiş eksik sayılır ve bağımsızlık olduğundan fazla görünür. Karşıtlıklarda her politomi tek karşıtlık verir; serbestlik derecesi düşer (70 yerine 62) ve bu, belirsizliği yansıtan tutucu bir seçimdir. Karşıtlıkların grupları ilk yordayıcıya göre kurulduğundan, çok yordayıcılı modelde yordayıcıların sırası değişirse sonuç değişebilir.
S7. Ağaç ultrametrik değilse ne değişir?
Brown ve \lambda modelleri değişmez; köşegen d_i değerleri farklılaşır, yani kökten uzak türlerin varyansı büyük sayılır. OU'da şablon aynı sabit köklü formülü kullanır; ultrametrik olmayan ağaçta (örneğin soyu tükenmiş türler içeren ya da dal uzunluğu ikame sayısı olan ağaçta) durağan varyans varsayımı sağlanmaz ve \alpha'nın yorumu zayıflar. Sinyal \lambda'sının üst sınırı 1 olur. Şablonun ultrametriklik ölçütü ağaç yüksekliğinin milyonda biridir; dal uzunlukları üç ondalığa yuvarlanmış ağaçlar ultrametrik sayılır, ama sinyal \lambda'sının üst sınırı için paketin daha sıkı ölçütü geçerlidir (örnek ağaçta özet satırı "ultrametrik" der, \lambda_{\max} yine 1'dir).
S8. K'nin permütasyon p'si küçük ağaçta neden güvenilmez?
İki neden vardır. Düzen sayısı azdır: dört türde yalnız 24 düzen vardır ve p değeri 1/24'ün katlarıdır. İkincisi, simetrik bir ağaçta kardeş türlerin değerlerini yer değiştirmek K'yi değiştirmez; gözlenenle eş değerli birkaç düzen vardır ve bunların K'si kuramsal olarak gözlenene eşittir. Şablon karşılaştırmayı göreli 10^{-9} toleransla yapar; kayan nokta farkı bu düzenlerin sayılmasını engellemez. Dört türlük dengeli bir ağaçta 24 düzenin 8'i gözlenenle eş değerlidir ve n!\le n_{\text{sim}} olduğundan bütün düzenler sayılır: p=8/24=0{,}333. Tür sayısı arttıkça eş değerli düzenlerin payı hızla sıfıra iner; 20 ve üzeri türde etkisi yoktur.
S9. Sinyal \lambda'sı neden 1'i aşabiliyor ve bu ne anlama gelir?
\lambda>1, iç dalların uç dallarına göre uzatılması demektir: akrabalar Brown'ın öngördüğünden daha benzer (K>1 ile aynı yön). Kovaryans matrisinin geçerli kalması için \lambda sınırsız büyüyemez; üst sınır, en yakın iki türün bağıntısının 1'e ulaştığı değerdir. Paket bu sınıra kadar arar; şablonun kendi PGLS'si ise geleneksel [0{,}1] aralığında kalır. Sinyal tablosunda 1'den büyük bir \lambda görüldüğünde raporda aralığın [0,\lambda_{\max}] olduğu belirtilir.
S10. Ölçüm hatası ve tür içi değişkenlik neden önemli; şablon bunları modelliyor mu?
Modellemiyor. Tür ortalamaları hatasız sayılır. Ölçüm hatası, uçlara ağaçtan bağımsız bir varyans ekler; bu, \lambda'yı 1'in altına ve K'yi aşağı çeker, OU'da ise \alpha'yı yukarı iter (hata, "çekim" gibi görünür). Az bireyden hesaplanmış tür ortalamalarıyla düşük sinyal bulunduğunda bu olasılık tartışılır. \lambda modeli, ağaçtan bağımsız varyansa yer açtığı için ölçüm hatasına Brown modelinden daha dayanıklıdır.
72.10 Kaynaklar
- Blomberg, S. P., Garland, T., Jr., & Ives, A. R. (2003). Testing for phylogenetic signal in comparative data: Behavioral traits are more labile. Evolution, 57(4), 717–745. https://doi.org/10.1111/j.0014-3820.2003.tb00285.x
- Butler, M. A., & King, A. A. (2004). Phylogenetic comparative analysis: A modeling approach for adaptive evolution. The American Naturalist, 164(6), 683–695. https://doi.org/10.1086/426002
- Cooper, N., Thomas, G. H., Venditti, C., Meade, A., & Freckleton, R. P. (2016). A cautionary note on the use of Ornstein Uhlenbeck models in macroevolutionary studies. Biological Journal of the Linnean Society, 118(1), 64–77. https://doi.org/10.1111/bij.12701
- Felsenstein, J. (1985). Phylogenies and the comparative method. The American Naturalist, 125(1), 1–15. https://doi.org/10.1086/284325
- Freckleton, R. P., Harvey, P. H., & Pagel, M. (2002). Phylogenetic analysis and comparative data: A test and review of evidence. The American Naturalist, 160(6), 712–726. https://doi.org/10.1086/343873
- Garland, T., Jr., Harvey, P. H., & Ives, A. R. (1992). Procedures for the analysis of comparative data using phylogenetically independent contrasts. Systematic Biology, 41(1), 18–32. https://doi.org/10.1093/sysbio/41.1.18
- Grafen, A. (1989). The phylogenetic regression. Philosophical Transactions of the Royal Society of London. B, Biological Sciences, 326(1233), 119–157. https://doi.org/10.1098/rstb.1989.0106
- Hansen, T. F. (1997). Stabilizing selection and the comparative analysis of adaptation. Evolution, 51(5), 1341–1351. https://doi.org/10.1111/j.1558-5646.1997.tb01457.x
- Ho, L. S. T., & Ané, C. (2014). A linear-time algorithm for Gaussian and non-Gaussian trait evolution models. Systematic Biology, 63(3), 397–408. https://doi.org/10.1093/sysbio/syu005
- Kembel, S. W., Cowan, P. D., Helmus, M. R., Cornwell, W. K., Morlon, H., Ackerly, D. D., Blomberg, S. P., & Webb, C. O. (2010). Picante: R tools for integrating phylogenies and ecology. Bioinformatics, 26(11), 1463–1464. https://doi.org/10.1093/bioinformatics/btq166
- Lislevand, T., & Thomas, G. H. (2006). Limited male incubation ability and the evolution of egg size in shorebirds. Biology Letters, 2(2), 206–208. https://doi.org/10.1098/rsbl.2005.0428
- Martins, E. P., & Hansen, T. F. (1997). Phylogenies and the comparative method: A general approach to incorporating phylogenetic information into the analysis of interspecific data. The American Naturalist, 149(4), 646–667. https://doi.org/10.1086/286013
- Orme, D., Freckleton, R., Thomas, G., Petzoldt, T., Fritz, S., Isaac, N., & Pearse, W. (2025). caper: Comparative analyses of phylogenetics and evolution in R (R package version 1.0.4). https://doi.org/10.32614/CRAN.package.caper
- Pagel, M. (1992). A method for the analysis of comparative data. Journal of Theoretical Biology, 156(4), 431–442. https://doi.org/10.1016/S0022-5193(05)80637-X
- Pagel, M. (1999). Inferring the historical patterns of biological evolution. Nature, 401(6756), 877–884. https://doi.org/10.1038/44766
- Paradis, E., & Schliep, K. (2019). ape 5.0: An environment for modern phylogenetics and evolutionary analyses in R. Bioinformatics, 35(3), 526–528. https://doi.org/10.1093/bioinformatics/bty633
- Pennell, M. W., Eastman, J. M., Slater, G. J., Brown, J. W., Uyeda, J. C., FitzJohn, R. G., Alfaro, M. E., & Harmon, L. J. (2014). geiger v2.0: An expanded suite of methods for fitting macroevolutionary models to phylogenetic trees. Bioinformatics, 30(15), 2216–2218. https://doi.org/10.1093/bioinformatics/btu181
- Pinheiro, J., Bates, D., & R Core Team. (2025). nlme: Linear and nonlinear mixed effects models (R package version 3.1-168). https://doi.org/10.32614/CRAN.package.nlme
- Revell, L. J. (2010). Phylogenetic signal and linear regression on species data. Methods in Ecology and Evolution, 1(4), 319–329. https://doi.org/10.1111/j.2041-210X.2010.00044.x
- Revell, L. J. (2024). phytools 2.0: An updated R ecosystem for phylogenetic comparative methods (and other things). PeerJ, 12, e16505. https://doi.org/10.7717/peerj.16505