73. Popülasyon Başına Genetik Çeşitlilik
Şablon kimliği: genetik_cesitlilik · Kategori: genetik · Dil: R · Dosya: pro/sablonlar/genetik/genetik_cesitlilik.R (satır 1–227; üstbilgi 1–61) · Örnek veri: _ornek/abies_cilicica.csv · Paketler: taban R (stats, graphics); ek paket yüklenmez
73.1 Ne işe yarar
Şablon, diploit ve eş baskın (iki aleli de okunabilen) belirteçlerle genotiplenmiş bireylerde her popülasyonun kendi içindeki genetik çeşitliliği sayılara döker. Cevapladığı soru: "Her popülasyonda kaç farklı alel var, bu aleller ne kadar dengeli dağılmış, beklenen kadar heterozigot birey var mı ve hangi popülasyonlar başkalarında bulunmayan aleller taşıyor?"
Bütün ölçüler tek bir hammaddeden, bir lokusta bir popülasyonun alel frekanslarından (p_1,\dots,p_k) türetilir. Temel büyüklük beklenen heterozigotluktur:
- p_i: popülasyonda i. alelin frekansı; k: o popülasyonda o lokusta görülen alel sayısı.
- \sum p_i^2: rastgele çekilen iki alelin aynı olma olasılığı (homozigotluk); H_e bunun tümleyenidir.
- Rastgele çiftleşen bir popülasyonda heterozigot bireylerin beklenen oranı H_e'dir; gözlenen oran H_o bundan küçükse heterozigot eksikliği vardır.
Şablon bu büyüklüğün çevresinde on bir ölçü verir: alel sayısı N_a, etkin alel sayısı N_e, gözlenen heterozigotluk H_o, beklenen heterozigotluk H_e ve iki yansız biçimi (uH_e, H_s), içsel akrabalık katsayısı F, polimorfik bilgi içeriği PIC, Shannon bilgi indeksi I, seyreltmeyle alel zenginliği A_r ve özel alel sayısı. Sonuçlar üç düzeyde tablolanır: lokus × popülasyon hücresi, popülasyon (lokuslar üzerinden ortalama) ve lokus (popülasyonlar üzerinden özet).
Ne zaman kullanılır? Bireyler önceden tanımlı popülasyonlara (yöre, meşcere, koloni, ırk, tohum kaynağı) aitse; belirteçler mikrosatellit, SNP ya da başka bir eş baskın sistemse; amaç popülasyonları çeşitlilik bakımından karşılaştırmak, koruma önceliği belirlemek ya da bir belirteç setinin bilgi içeriğini raporlamaksa.
Ne zaman kullanılmaz?
- Popülasyonlar arasındaki farklılaşma (F_{ST}, G''_{ST}, Jost D) soruluyorsa:
f_istatistikleri; hiyerarşik ayrıştırma içinamova. - Popülasyon çiftleri arasındaki uzaklık ve ağaç isteniyorsa:
genetik_uzaklik. - Heterozigot eksikliğinin anlamlılığı sınanacaksa:
hardy_weinberg(kesin test); bu şablon F'yi yalnız tanımlar, isteğe bağlı bir bootstrap aralığı dışında sınama yapmaz. - Lokuslar arası bağlantı dengesizliği için:
bag_dengesizligi. - Veri DNA dizisiyse (haplotip ve nükleotit çeşitliliği):
notralite_testlerivedizi_amova. - Tohum bahçesi klonlarının etkin sayısı ve statü sayısı için:
tohum_bahcesi_cesitlilik. - Baskın belirteçler (AFLP, RAPD), haploit ya da poliploit veri: ayrıştırıcı yalnız iki alelli diploit genotip yazımını kabul eder.
Temel programla ilişki. Temel programdaki çeşitlilik indeksleri (Shannon, Simpson) tür bolluk tabloları içindir; genotip verisinden alel frekansı çıkaran, heterozigotluk ve alel zenginliği hesaplayan bir analiz temel programda yoktur. Bu şablon MerQuR+'a özgüdür.
73.2 Şablonun girdileri
Form, üstbilgideki yedi [[param]] bloğundan kurulur (genetik_cesitlilik.R:10–60).
| Alan (form etiketi) · ad | Tür · sekme | Varsayılan | Geçerli değerler | Kodda etkisi |
|---|---|---|---|---|
Lokus sütunları · lokuslar |
sütunlar · Değişkenler | yok | en az 1 sütun | Her sütun bir lokus; ayrıştırılır (79, 93). |
Popülasyon · populasyon |
kategorik sütun · Değişkenler | boş (isteğe bağlı) | herhangi bir sütun ya da boş | Boşsa bütün bireyler "Tümü" adlı tek popülasyon (75, 94); düzeyler ada göre sıralanır (90). |
Alel ayırıcısı · ayirici |
metin · Değişkenler | / |
boş olmayan metin | Metin genotipini iki alele böler (95; ayrıştırıcıya 79. satırda verilir). |
Eksik genotip kodları · eksik_kodlar |
metin · Değişkenler | boş | virgülle ayrılmış kodlar | Boşsa varsayılan liste (boş hücre, NA, 0, 00, 000, ?, -, ., -9) eksik sayılır; doluysa alandaki kodlar bu listenin yerine geçer (boş hücre ve NA her zaman eksik); baş ve son boşluk kırpılır, boş kodlar atılır (satır 66–67; Bölüm 1.5). |
Seyreltme büyüklüğü · seyreltme |
tam sayı · Seçenekler | 0 | 0–10000 | A_r için çekilen gen sayısı g; 0 ise bütün hücrelerdeki en küçük gen sayısı (124–126). |
Popülasyon F için bootstrap · fis_B |
tam sayı · Seçenekler | 0 | 0–9999 | 0'dan büyükse lokuslar yeniden örneklenir, F için güven aralığı tablosu eklenir (196–209). |
Güven düzeyi · guven |
ondalık · Seçenekler | 0,95 | 0,5–0,999 | Yalnız fis_B > 0 iken bootstrap kantilleri (198, 204). |
Örnek ayar (ornek_param, satır 9): on lokus (NFF3, NFF7, NFH15, NFH3, SF1, SF333, SF50, SF78, SFb4, SFb5) ve populasyon = pop. Öteki alanlar varsayılandadır; bootstrap kapalıdır.
Genotip yazımı. Genotipleri bütün genetik şablonlarının ortak ayrıştırıcısı okur; şablonda yalnız iki satırlık bağlama vardır (satır 66–67; kural Bölüm 1.5). Sütun veri sekmesinde sayısal türdeyse değerler yalnız 0, 1, 2 olabilir ve "B alelinin sayısı" diye okunur: 0 → A/A, 1 → A/B, 2 → B/B. Sütun metinse her hücre ayırıcıyla ikiye bölünür (136/142). Şu yazımlar eksik genotip sayılır: boş hücre, NA, na, 0, 00, 000, ?, -, ., -9; ayırıcılı yazımda iki alel de eksik kodu olmalıdır (0/0, -9/-9). Alellerinden yalnız biri eksik kodu olan genotip (0/143, 0/1) çalıştırmayı durdurur: 0 verideki gerçek bir alelin adıysa o alel başka bir adla yeniden kodlanır (73.8). Eksik genotip kodları alanı doluysa (virgülle ayrılmış, ör. .) alandaki kodlar bu listenin yerine eksik sayılır; boş hücre ve NA her zaman eksiktir ve yarı eksik durma kuralı yeni listeye göre işler: VCF tarzı 0/1 kodlu veride alana yalnız . yazılırsa 0 gerçek alel olur (satır 66–67). Bütün lokuslar okunduktan sonra eksik sayılan genotiplerin dökümü konsola yazılır (81); örnek veride "Genotip okuma: 10 lokusta 3510 genotipin 72 tanesi eksik sayıldı (boş hücre: 72; …)".
Denetimler. Genotip yazımına ilişkin denetimleri ortak ayrıştırıcı yapar (şablondaki çağrı 79. satırdadır); ötekiler şablonun kendi satırlarındadır.
| Koşul | İleti (özet) | Satır |
|---|---|---|
| Veri açık değil | "Önce Veri sekmesinde bir veri açın." | 69 |
| Lokus bütünüyle eksik | "lokusunda hiç genotip yok" | ortak ayrıştırıcı |
| Sayısal lokusta 0/1/2 dışında değer | "sayısal genotip yalnız 0/1/2 olabilir" | ortak ayrıştırıcı |
| Ayırıcı boş | "Alel ayırıcısı boş olamaz." | ortak ayrıştırıcı |
| Ayırıcı içermeyen genotip | "ayırıcı içermeyen genotip var … haploit veri çözümlenemez" | ortak ayrıştırıcı |
| İkiden çok alelli genotip | "yalnız diploit veri desteklenir" | ortak ayrıştırıcı |
| Alellerinden yalnız biri eksik kodu olan genotip | "… lokusunda … genotipte alellerden yalnız biri eksik kodu ('0'; ör. '0/143') …" | ortak ayrıştırıcı |
| Popülasyon sütunu lokus olarak da seçilmiş | "Popülasyon sütunu lokus olarak da seçilemez." | 74 |
| Hiçbir bireyin popülasyonu belli değil | "Popülasyonu belli birey yok." | 78 |
| Hiçbir hücrede genotip yok | "Çözümlenecek genotip bulunamadı." | 118 |
Durdurmayan notlar ve uyarılar: popülasyonu eksik bireyler çıkarılır ve sayısı yazılır (76–77); genotip okuma dökümü (81); seyreltme büyüklüğü kendiliğinden seçilmiş ve 4 ya da daha küçük çıkmışsa onu belirleyen hücreyi adıyla veren uyarı (127–132); en küçük hücre tek gen içeriyorsa g=1 notu (133); gen sayısı g'den küçük hücrelerde "alel zenginliği verilmedi" notu (139); tek popülasyonda "özel alel tanımsız" notu (153); tek lokusta "bootstrap yapılamaz" notu (199); tek biçimli lokus uyarısı (211–212); tek bireyli hücre uyarısı (213–215).
Eksik değer: bir bireyin bir lokustaki genotipi eksikse birey yalnız o lokusun hücresinden düşer; öteki lokuslarda kullanılır. Bir popülasyonda bir lokusun hiç genotipi yoksa o hücre tablolara girmez ve popülasyon ortalaması kalan lokuslardan alınır.
73.3 Örnek veri
Dosya: _ornek/abies_cilicica.csv. Lübnan'daki 15 Toros göknarı (Abies cilicica) popülasyonundan 351 ağacın 10 çekirdek mikrosatellit lokusundaki genotipleri (Awad ve ark., 2014). Sütunlar: birey kimliği, popülasyon, on lokus, boylam ve enlem.
| Değişken | Rol | Tür (veri sekmesi) | Özet |
|---|---|---|---|
birey |
kullanılmaz | metin | 351 ağaç. |
pop |
Popülasyon | kategorik (15 düzey) | Popülasyon büyüklükleri 11–30: KCHB 30, BTJF 30, CHIR 28, JBMD 30, MKTF 30, NBSH 30, QARS 11, QJRN 28, QEMN 28, HNKT 12, HNKF 21, GHAB 24, HKYT 12, KMHR 18, EHDN 19. |
NFF3 … SFb5 |
Lokuslar | kategorik (metin genotip) | Bütün örneklemde alel sayıları: NFF3 4, NFF7 17, NFH15 13, NFH3 27, SF1 3, SF333 5, SF50 6, SF78 18, SFb4 13, SFb5 3 (toplam 109). |
boylam, enlem |
kullanılmaz | coğrafi | Popülasyon koordinatları. |
Eksik genotip: SF1 1, SF50 3, SF78 1, SFb4 12, SFb5 55 birey; öteki lokuslar tamdır. En küçük hücreler 10 genotiplidir (SF50 × QARS ve SFb5 × HNKT); varsayılan seyreltme büyüklüğü bu yüzden g=2\cdot10=20 gendir.
Popülasyon sırası: alfabetik
Veri sekmesi pop sütununu ilk görülme sırasıyla (KCHB, BTJF, …) aktarır; şablon ise popülasyon düzeylerini kendi içinde ada göre sıralar (factor(pv, levels = sort(unique(pv))), satır 90). Tabloların ve çubuk grafiklerinin sırası bu yüzden BTJF, CHIR, EHDN, GHAB, HKYT, HNKF, HNKT, JBMD, KCHB, KMHR, MKTF, NBSH, QARS, QEMN, QJRN'dir. Sıralama metin sıralamasıdır: popülasyonlar 1, 2, …, 15 diye adlandırılmışsa sıra 1, 10, 11, …, 15, 2, 3 olur. Sıra hiçbir sayıyı değiştirmez; verinin satır sırası da sonucu etkilemez (73.6.1).
Bu bölümde kullanılan çalıştırmalar: (1) örnek ayar; (2) seyreltme = 6; (3) fis_B = 999, guven = 0,90; (4) aynı ayar, satırları karıştırılmış veri; (5) popülasyon alanı boş; (6) seyreltme = 40; (7) sınır durumları için türetilmiş veriler (tek bireyli popülasyon, tek biçimli lokus, SNP kodlamaları, farklı eksik kodları).
73.4 Yöntem: formüller ve hesap adımları
Hesap sırası: (1) genotipler ayrıştırılır, popülasyonu eksik bireyler çıkarılır; (2) her lokus × popülasyon hücresinde aleller sayılır ve hücre ölçüleri hesaplanır; (3) seyreltme büyüklüğü belirlenir ve alel zenginliği eklenir; (4) özel aleller bulunur; (5) her lokus için popülasyonlar üzerinden Nei (1987) özetleri kurulur; (6) her popülasyon için lokuslar üzerinden ortalamalar alınır; (7) istenirse F için lokuslar yeniden örneklenir; (8) tablolar ve iki şekil yazılır. Şablon bütün hesapları kendi satırlarında yapar; hiçbir popülasyon genetiği paketi çağrılmaz.
73.4.1 Alel frekansı, alel sayısı ve etkin alel sayısı
Bir hücrede n bireyin 2n aleli sayılır:
- n: hücrede (o lokusta, o popülasyonda) genotipi eksik olmayan birey sayısı; c_i: i. alelin kopya sayısı.
- N_a: hücrede görülen farklı alel sayısı.
- N_e: etkin alel sayısı (Kimura ve Crow, 1964); gözlenen homozigotluğu verecek eşit frekanslı alel sayısı.
Neden iki ayrı alel sayısı?
N_a nadir alelleri de tam sayar ve örneklem büyüdükçe artar. N_e alelleri frekanslarıyla tartar: bir alel 0,85, ikisi 0,10 ve 0,05 frekansındaysa üç alel vardır, ama çeşitlilik 1,36 eşit frekanslı alelinki kadardır. N_a ile N_e arasındaki açıklık, dağılımın ne kadar dengesiz olduğunu gösterir.
73.4.2 Gözlenen ve beklenen heterozigotluk; iki yansız kestirici
- H_o: iki aleli farklı olan bireylerin oranı (satır 110).
- H_e: örneklem frekanslarından düzeltmesiz beklenen heterozigotluk.
- uH_e: Nei'nin (1978) yansız kestiricisi; 2n gamet için küçük örneklem düzeltmesi.
- H_s: Nei'nin (1987) gen çeşitliliği; aynı düzeltmeyi bireylerin sayısı üzerinden yapar ve gözlenen heterozigotluğu hesaba katar. n=1 iken tanımsızdır (hücre boş bırakılır).
Neden uH_e ve H_s birbirinden farklı?
1-\sum p_i^2, sonlu örneklemde gerçek heterozigotluğu aşağı yanlı kestirir. Nei (1978) yanlılığı, 2n gametin bağımsız çekildiği varsayımıyla 2n/(2n-1) çarpanıyla giderir. Nei (1987) gametlerin bireyler içinde ikişer ikişer geldiğini hesaba katar: popülasyon Hardy–Weinberg dengesinde değilse düzeltme H_o'ya da bağlıdır. İki kestirici H_o=H_e olduğunda hemen hemen çakışır; heterozigot eksikliğinde H_s>uH_e, fazlalığında H_s<uH_e olur. Örnek veride fark üçüncü ondalıktadır (KCHB ortalaması: 0,6160 ve 0,6170).
İçsel akrabalık katsayısı hücre düzeyinde yansız beklenen heterozigotluğa göre hesaplanır:
- F>0: heterozigot eksikliği (akrabalı çiftleşme, alt yapı, okunamayan aleller); F<0: heterozigot fazlalığı.
- uH_e=0 (hücrede tek alel) iken F tanımsızdır ve boş bırakılır (satır 121).
- Hücrede tek birey varsa (n=1) F yine boş bırakılır: tek genotipten H_o ile uH_e karşılaştırılamaz (heterozigot tek bireyde H_o=uH_e=1 ve oran kendiliğinden 0 çıkar; bu bir kestirim değildir).
Koddaki tercih
Şablonun F sütunu uH_e'yi paydaya alır (satır 121, 182). Yaygın kullanılan öteki tanım 1-H_o/H_s'dir; FSTAT ve hierfstat popülasyon F_{IS}'ini böyle verir. İki tanım aynı tabloda yan yana gelsin diye Hs sütunu ve tablonun son sütunu F_Hs =1-H_o/H_s da yazılır (satır 185). Örnek veride KCHB için 1-0{,}5684/0{,}6160=0{,}0772 ve 1-0{,}5684/0{,}6170=0{,}0787; Awad ve ark. (2014) ikincisini (0,079) yayımlamıştır.
73.4.3 Polimorfik bilgi içeriği ve Shannon indeksi
- PIC (Botstein ve ark., 1980): bir belirtecin, bağlantı çözümlemesinde ebeveynden gelen aleli ayırt edebilme olasılığı; H_e'den her zaman küçüktür.
- \sum_{i<j}2p_i^2p_j^2: iki ebeveynin de aynı heterozigot genotipi taşıdığı ve yavrunun yarısının bilgi vermediği durumun payı.
- I: Shannon bilgi indeksi (doğal logaritma); alel sayısı ve dengesi birlikte arttıkça büyür, üst sınırı \ln k'dir.
Neden heterozigotluk varken PIC ve I de veriliyor?
Üçü de aynı frekanslardan hesaplanır, ama farklı sorulara cevap verir. H_e popülasyon genetiğinin kuramsal büyüklüğüdür. PIC belirteç seçimi için kullanılır: 0,5'in üstü "çok bilgi verici", 0,25–0,5 arası "orta" sayılır (Botstein ve ark., 1980). I nadir alellere H_e'den daha duyarlıdır; çok alelli mikrosatellitlerde lokusları H_e'den daha iyi ayırır. Kodda PIC, p_i^2 değerlerinin dış çarpım matrisinin köşegen dışı toplamı olarak hesaplanır (satır 111); bu, yukarıdaki çift toplamın aynısıdır.
73.4.4 Seyreltmeyle alel zenginliği
Alel sayısı örneklem büyüklüğüyle artar; 30 ağaçlık bir popülasyonu 11 ağaçlık bir popülasyonla N_a üzerinden karşılaştırmak adil değildir. Seyreltme (rarefaction), her hücreden yalnız g gen çekilseydi görülmesi beklenen farklı alel sayısını verir (Hurlbert, 1971; El Mousadik ve Petit, 1996):
- N: hücredeki gen (alel kopyası) sayısı; c_i: i. alelin kopya sayısı.
- \binom{N-c_i}{g}/\binom{N}{g}: yerine koymadan çekilen g genin hiçbirinin i. alel olmama olasılığı; köşeli parantez i. alelin en az bir kez görülme olasılığıdır.
- g: seyreltme büyüklüğü; bütün hücrelerde aynıdır. N<g olan hücrede A_r verilmez.
Koddaki tercih
seyreltme = 0 iken g, bütün lokus × popülasyon hücrelerindeki en küçük gen sayısıdır: g_sey <- min(2 * T1$n) (satır 126). Bu, hierfstat::allelic.richness'in varsayılanıyla aynı kuraldır. Binom katsayılarının oranı taşmasın diye logaritmalarla hesaplanır: exp(lchoose(N - c, g) - lchoose(N, g)) (137). Kullanıcı g'yi kendisi verirse gen sayısı g'den az olan hücreler boş kalır, sayıları bir notla yazılır (139) ve o hücreyi içeren popülasyonun ortalama alel zenginliği de boş kalır.
En küçük hücre bütün tabloyu belirler
g tek bir sayıdır ve en zayıf hücreye göre seçilir. Bir popülasyonda bir lokusta tek birey kalmışsa g=2 olur. İki gen çekildiğinde beklenen alel sayısı cebirsel olarak 1+uH_e'dir; yani A_r sütunu uH_e sütununun bir fazlasına dönüşür ve yeni bilgi taşımaz. Şablon, g'yi kendisi seçtiğinde ve g\le4 çıktığında bunu belirleyen hücreyi adıyla bildirir (satır 127–132). EHDN'den tek ağaç bırakılan veride (çalıştırma 7): "Uyarı: alel zenginliğinin seyreltme büyüklüğünü (g = 2 gen) en küçük hücre belirledi: NFF3 lokusu, EHDN popülasyonu, n = 1 (bu büyüklükte 9 hücre var). g = 2 iken alel zenginliği 1 + uHe'ye eşittir ve yeni bilgi taşımaz; küçük hücreleri çıkarın ya da seyreltme büyüklüğünü elle verin." Bu çalıştırmada BTJF'nin ortalama alel zenginliği 1{,}607=1+0{,}607'dir (örnek veride 4,397). Çözüm, çok küçük popülasyonu çözümlemeden çıkarmak ya da seyreltme alanına daha büyük bir g yazıp küçük hücrelerin boş kalmasını kabul etmektir.
73.4.5 Özel aleller
Bir lokusta yalnız tek bir popülasyonda görülen alel özel aleldir (satır 141–153). Şablon her özel aleli popülasyonu, lokusu, adı ve kopya sayısıyla listeler; hücre ve popülasyon tablolarına sayısını yazar. Ölçüt yalnız var/yok ölçütüdür: tek bir kopya özel alel sayılmaya yeter ve seyreltme uygulanmaz. Bu yüzden özel alel sayısı örneklem büyüklüğüne N_a kadar duyarlıdır (73.9 S6). Tek popülasyon varsa özel alel tanımsızdır; sütun boş kalır ve bir not yazılır.
73.4.6 Lokus özeti: H_o, H_s, H_t, F_{IS}
Her lokus için popülasyonlar üzerinden Nei'nin (1987) büyüklükleri kurulur (satır 155–172):
- r: lokusta genotipi olan popülasyon sayısı; p_{ij}: j. popülasyonda i. alelin frekansı.
- \tilde n=r/\sum_j(1/n_j): popülasyon örneklem büyüklüklerinin harmonik ortalaması.
- \bar p_i=\frac1r\sum_j p_{ij}: popülasyon frekanslarının ağırlıksız ortalaması.
- H_t: popülasyonlar birleştirildiğinde beklenen toplam gen çeşitliliği; \bar H_s: popülasyon içi ortalama gen çeşitliliği.
Neden harmonik ortalama ve ağırlıksız frekans?
Küçük örneklemli popülasyonlar yanlılığa daha çok katkı yapar; harmonik ortalama küçük n_j'lere daha çok ağırlık vererek düzeltmeyi buna göre ayarlar. Ağırlıksız frekans ortalaması, her popülasyonu örneklem büyüklüğünden bağımsız bir birim sayar: 11 ağaçlık QARS ile 30 ağaçlık KCHB H_t'ye aynı ağırlıkla girer. Tanımlar hierfstat::basic.stats ile aynıdır.
Lokus tablosunda ayrıca bütün örneklem tek popülasyon sayılarak hesaplanan Na, Ne, uHe_toplam, PIC_toplam ve I_toplam verilir; bunlar belirtecin genel bilgi içeriğini gösterir. "Genel" tablosu \bar H_o, \bar H_s ve H_t'nin lokuslar üzerinden aritmetik ortalamasını ve bu ortalamalardan F_{IS}=1-\bar H_o/\bar H_s'yi verir (173–174).
Buradaki \bar H_s, f_istatistikleri şablonunun Hs sütunuyla (Bölüm 71.4.3) aynı sayı değildir: orada Nei ve Chesser'in (1983) H_o terimi içermeyen kestiricisi kullanılır (NFF3 için 0,291337; burada 0,291496).
73.4.7 Popülasyon özeti ve bootstrap
Popülasyon tablosu, o popülasyonun hücre değerlerinin lokuslar üzerinden aritmetik ortalamasıdır (satır 177–186). Tek istisna F'dir: hücre F'lerinin ortalaması değil, ortalamaların oranıdır ve yalnız en az iki bireyli hücrelerden hesaplanır:
Tablonun son sütunu F_Hs, yayımlanan F_{IS}'dir: aynı ortalamaların \bar H_o/\bar H_s oranıdır, F_{\text{Hs}}=1-\bar H_o/\bar H_s (\mathcal L_2 hücrelerinin ortalamaları; satır 185). Sütun tablonun sonuna eklenmiştir; öteki sütunların sırası ve değerleri değişmez.
- \mathcal L_2: popülasyonun en az iki bireyli (n\ge2) hücresi olan lokusları; L_2: bu lokusların sayısı; H_{o,\ell}, uH_{e,\ell}: \ell. lokustaki hücre değerleri.
- Oranların ortalaması yerine ortalamaların oranı alınır; böylece çeşitliliği düşük, F'si gürültülü lokuslar sonucu savurmaz.
- Popülasyonun tek bireyli hücresi yoksa \mathcal L_2 genotipi olan bütün lokuslardır ve F, tablonun
HoveuHesütunlarından 1-\bar H_o/\overline{uH_e} olarak aynen elde edilir (örnek veride on beş popülasyonun hepsi böyledir).
Koddaki tercih
Tek bireyli hücreler yalnız iki sütunun dışında tutulur: popülasyonun Hs sütunu ve F sütunu en az iki bireyli hücrelerden hesaplanır (satır 180–182); hiç böyle hücre yoksa ikisi de boş kalır. Na, Ne, Ho, uHe, PIC, I ve A_r ortalamaları bütün hücrelerden alınmayı sürdürür (181, 183). Bu yüzden tek bireyli hücresi olan bir popülasyonda F, aynı satırın Ho ve uHe sütunlarından hesaplanan orana eşit olmayabilir. EHDN'den tek ağaç bırakılan veride (çalıştırma 7) EHDN satırında n_ort 1, Ho ve uHe 0,3333, Hs ve F boştur.
fis_B > 0 iken her popülasyon için \mathcal L_2'deki L_2 lokus yerine koyarak B kez yeniden çekilir ve aynı oran yeniden hesaplanır:
- S_b: b. tekrarda çekilen L_2 lokusluk küme; Q_q: B değerin q kantili (R'nin varsayılan kantil tanımı, tür 7); \alpha=1-\texttt{guven}.
- Yeniden örneklenen birim lokustur; bireyler yeniden örneklenmez.
- En az iki bireyli hücresi ikiden az olan popülasyon bootstrap tablosuna girmez (satır 201–202); çalıştırma 7'de tablo on dört satırdır, EHDN yoktur.
Koddaki tercih
Çekiliş sample.int(nrow(d), replace = TRUE) ile yapılır (satır 203); popülasyonlar ada göre sırayla, her biri için B çekiliş. Kestirici şablonun kendi F'sidir (uH_e paydalı). hierfstat::boot.ppfis aynı yeniden örnekleme fikrini 1-\sum H_o/\sum H_s kestiricisine uygular; iki aralık yakındır ama aynı değildir (KCHB, %90: şablon [-0{,}009;\ 0{,}192], hierfstat [-0{,}007;\ 0{,}202]).
Tohum. Bootstrap aralıkları çalıştırmanın tohumuna (seed) bağlıdır. Şablon formunda tohum alanı yoktur; tohum Kod panelindeki Tohum alanından verilir (Bölüm 1.3). Alan boşsa MerQuR+ her çalıştırmaya yeni bir tohum atar; kullanılan tohumu künyeye yazar ve betik adımına kaydeder; betik yeniden oynatıldığında aynı tohum kullanılır ve aynı aralıklar çıkar (Bölüm 57). Bu bölümdeki bootstrap sayıları, yürütücüye sabit tohum (2026) verilerek üretilmiştir. Bootstrap kapalıyken şablonda rastgelelik yoktur.
73.5 Kod adım adım
| Satırlar | Ne yapar | Neden / dikkat |
|---|---|---|
| 1–61 | Üstbilgi: kimlik, açıklama, örnek veri ve ayar, altı parametre. | Form buradan kurulur (Bölüm 1.2). |
| 62–67 | .m() ileti seçici; ortak genotip ayrıştırıcısına bağlama (.gn_eksik, .gn_genotip). |
Ayrıştırıcı n\times2 alel adı matrisi döndürür; eksik genotipte iki hücre de NA. Kural Bölüm 1.5'tedir. |
| 69–91 | .gn_hazirla: popülasyonu eksik bireyleri atar, lokusları ayrıştırır, okuma dökümünü yazar, popülasyon faktörünü kurar. |
Döküm bütün lokuslar okunduktan sonra bir kez yazılır (81). Popülasyon düzeyleri sort(unique()) ile sıralanır (90). Popülasyon adları baştaki ve sondaki boşluklardan arındırılır (75). |
| 93–97 | Parametreler okunur, veri hazırlanır. | populasyon boşsa pc = NULL → tek popülasyon "Tümü". |
| 99–121 | Lokus × popülasyon döngüsü: alel sayımı, N_a, N_e, H_o, H_e, uH_e, H_s, PIC, I; sonra F. | Genotipi olmayan hücre atlanır (106). H_s için n > 1 koşulu (113); F için uHe > 0 ve n >= 2 koşulu (121). |
| 123–139 | Seyreltme büyüklüğü ve A_r. | g bütün hücrelerin en küçüğü (126); g\le4 ise belirleyen hücre bildirilir (127–132); lchoose ile taşmasız hesap (137). |
| 141–153 | Özel aleller: alel → görüldüğü popülasyonlar listesi; tek popülasyonlular ayrılır. | Tek popülasyonda atlanır, not yazılır (153). |
| 155–174 | Lokus özeti ve "Genel" satırı. | Harmonik ortalama mn (162); ağırlıksız frekans ortalaması (164–165). |
| 176–186 | Popülasyon özeti. | Hs ve F yalnız en az iki bireyli hücrelerden (180–182); F ortalamaların oranı (182). Son sütun F_Hs yayımlanan F_{IS}'dir (185). |
| 188–215 | Özet satırı, beş tablo (bootstrap açıksa altı), uyarılar. | Yardımcı sp2 sütunu tablodan çıkarılır (188). Bootstrap yalnız en az iki bireyli hücrelerle (201). |
| 216–226 | İki çubuk grafik. | İkincisi yalnız en az bir popülasyonda ortalama A_r varsa çizilir (221). |
Konsola tek satırlık özet yazılır (189–191): birey, lokus ve popülasyon sayısı ile seyreltme büyüklüğü g. Birey sayısı, popülasyonu belli olan bütün bireylerdir; hiçbir lokusta genotipi olmayan birey de sayıya girer. Eksik sayılan genotip varsa özetten önce okuma dökümü satırı yer alır (81).
73.6 Elle hesap: örnek veride bağımsız yeniden hesap
Ara değerler dogrulama/genetik_cesitlilik/elle_hesap.py ile, şablon kodu ve popülasyon genetiği paketleri kullanılmadan hesaplanmıştır: frekanslar sayımla, PIC çift toplamla, alel zenginliği tam binom katsayılarıyla. R tarafında (r_dogrulama.R) aynı büyüklükler paket fonksiyonlarıyla alınmıştır: hierfstat::basic.stats ve allelic.richness, poppr::poppr, locus_table ve private_alleles, vegan::diversity.
Adım 1 — NFF3 × KCHB hücresinde sayım. 30 ağacın 60 aleli: 105 aleli 51, 109 aleli 3, 143 aleli 6 kopya. Frekanslar 0{,}85; 0{,}05; 0{,}10.
Adım 2 — Heterozigotluklar. 30 ağacın 7'si heterozigottur:
Adım 3 — PIC ve Shannon.
Adım 4 — Alel zenginliği (g=20). N=60. 105 aleli 51 kopyadır; kalan 9 genden 20 gen çekilemez, alelin görülmeme olasılığı 0'dır. Öteki iki alel için:
Aynı hücrede g=6 ile A_r=1{,}759275'tir: daha az gen çekildiğinde nadir alellerin görülme olasılığı düşer.
Adım 5 — KCHB popülasyon özeti. On lokusun hücre değerlerinin ortalaması: \bar H_o=0{,}568406, \overline{uH_e}=0{,}615957, \bar H_s=0{,}616967, \bar N_a=6{,}5, \bar N_e=3{,}709512, \overline{\mathrm{PIC}}=0{,}567814, \bar I=1{,}299586, \bar A_r=4{,}949390.
1-\bar H_o/\bar H_s=0{,}078710'dur; Awad ve ark. (2014) Tablo 2'de KCHB için H_o=0{,}568, H_e=0{,}616, AR(20) = 4,95, AR(6) = 3,04 ve F_{IS}=0{,}079 verilmiştir. g=6 ile şablonun KCHB ortalaması 3,043129'dur.
Adım 6 — NFF3 lokus özeti. 15 popülasyonda \bar H_o=0{,}285117; harmonik ortalama \tilde n=20{,}580137; popülasyon içi düzeltmesiz ortalama 1-\frac1r\sum\sum p_{ij}^2=0{,}284259; birleşik frekanslardan 1-\sum\bar p_i^2=0{,}302235.
Adım 7 — Genel değerler ve özel aleller. On lokusun ortalamaları: H_o=0{,}578119, H_s=0{,}595504, H_t=0{,}629629; F_{IS}=1-0{,}578119/0{,}595504=0{,}029194. Awad ve ark. (2014) ortalama H_o=0{,}578, H_e=0{,}595 ve genel F_{IS}=0{,}029 bildirmiştir; şablonda popülasyon uH_e'lerinin ortalaması 0,594888, AR(20) ortalaması 4,140097'dir (yayımlanan 4,14). Toplam 109 alelin 26'sı özeldir (36 kopya); en çok özel alel QJRN'de (5) ve KCHB'de (4), lokuslar içinde NFH3'tedir (9).
Adım 8 — Bootstrap. fis_B = 999, guven = 0,90, tohum 2026: KCHB için F^{*} değerlerinin %5 ve %95 kantilleri -0{,}008787 ve 0{,}191505; EHDN için 0{,}056453 ve 0{,}229721; HNKT için -0{,}207115 ve 0{,}031196. On beş popülasyondan yalnız EHDN'nin aralığı sıfırı dışlar.
73.6.1 Doğrulama: MerQuR+, Python ve R
MerQuR+ sütunu şablonun tablolarından tam hassasiyetle okunmuştur (çalıştırmalar 1, 2 ve 3). Bootstrap satırlarında Python ve R, şablonla aynı tohumu ve aynı çekiliş sırasını kullanır; Python tarafında R'nin rastgele sayı üreteci ve sample.int algoritması yeniden kurulmuştur.
| Büyüklük | MerQuR+ | Python (bağımsız) | R (bağımsız) | En büyük fark | |
|---|---|---|---|---|---|
| NFF3 × KCHB: N_a | 3 | 3 | 3 | 0 | ✓ |
| NFF3 × KCHB: N_e | 1,36054422 | 1,36054422 | 1,36054422 | 3,6e−15 | ✓ |
| NFF3 × KCHB: H_o | 0,23333333 | 0,23333333 | 0,23333333 | 3,3e−13 | ✓ |
| NFF3 × KCHB: H_e | 0,265 | 0,265 | 0,265 | 1,1e−16 | ✓ |
| NFF3 × KCHB: uH_e | 0,26949153 | 0,26949153 | 0,26949153 | 5,6e−17 | ✓ |
| NFF3 × KCHB: H_s | 0,27011494 | 0,27011494 | 0,27011494 | 2,6e−13 | ✓ |
| NFF3 × KCHB: F | 0,13417191 | 0,13417191 | 0,13417191 | 1,2e−12 | ✓ |
| NFF3 × KCHB: PIC | 0,2468875 | 0,2468875 | 0,2468875 | 1,1e−16 | ✓ |
| NFF3 × KCHB: I | 0,51818621 | 0,51818621 | 0,51818621 | 1,1e−16 | ✓ |
| NFF3 × KCHB: A_r (g=20) | 2,63461028 | 2,63461028 | 2,63461028 | 2,0e−15 | ✓ |
| NFH3 × KCHB: A_r (g=20) | 8,76807994 | 8,76807994 | 8,76807994 | 6,9e−15 | ✓ |
| NFH3 × KCHB: PIC | 0,83858935 | 0,83858935 | 0,83858935 | 8,9e−16 | ✓ |
| SFb5 × QARS: A_r (g=20) | 2 | 2 | 2 | 0 | ✓ |
| SFb5 × QARS: PIC | 0,20779831 | 0,20779831 | 0,20779831 | 3,1e−16 | ✓ |
| NFF7 × BTJF: A_r (g=20) | 7,34339658 | 7,34339658 | 7,34339658 | 5,4e−15 | ✓ |
| NFF7 × BTJF: PIC | 0,8030216 | 0,8030216 | 0,8030216 | 1,4e−15 | ✓ |
| KCHB (lokus ortalaması): N_a | 6,5 | 6,5 | 6,5 | 0 | ✓ |
| KCHB (lokus ortalaması): N_e | 3,7095116 | 3,7095116 | 3,7095116 | 4,8e−16 | ✓ |
| KCHB (lokus ortalaması): H_o | 0,5684058 | 0,5684058 | 0,5684058 | 5,1e−14 | ✓ |
| KCHB (lokus ortalaması): uH_e | 0,61595677 | 0,61595677 | 0,61595677 | 2,2e−16 | ✓ |
| KCHB (lokus ortalaması): H_s | 0,61696743 | 0,61696743 | 0,61696743 | 2,0e−14 | ✓ |
| KCHB (lokus ortalaması): F=1-H_o/uH_e | 0,07719855 | 0,07719855 | 0,07719855 | 8,2e−14 | ✓ |
| KCHB (lokus ortalaması): PIC | 0,56781399 | 0,56781399 | 0,56781399 | 3,3e−16 | ✓ |
| KCHB (lokus ortalaması): I | 1,29958566 | 1,29958566 | 1,29958566 | 3,4e−15 | ✓ |
| KCHB (lokus ortalaması): A_r (g=20) | 4,94938988 | 4,94938988 | 4,94938988 | 3,1e−15 | ✓ |
| QARS (lokus ortalaması): N_a | 3,3 | 3,3 | 3,3 | 0 | ✓ |
| QARS (lokus ortalaması): N_e | 2,12717258 | 2,12717258 | 2,12717258 | 0 | ✓ |
| QARS (lokus ortalaması): H_o | 0,44818182 | 0,44818182 | 0,44818182 | 8,2e−14 | ✓ |
| QARS (lokus ortalaması): uH_e | 0,49720437 | 0,49720437 | 0,49720437 | 2,8e−16 | ✓ |
| QARS (lokus ortalaması): H_s | 0,49984848 | 0,49984848 | 0,49984848 | 1,5e−14 | ✓ |
| QARS (lokus ortalaması): F=1-H_o/uH_e | 0,09859639 | 0,09859639 | 0,09859639 | 1,6e−13 | ✓ |
| QARS (lokus ortalaması): PIC | 0,41581887 | 0,41581887 | 0,41581887 | 4,4e−16 | ✓ |
| QARS (lokus ortalaması): I | 0,83422226 | 0,83422226 | 0,83422226 | 4,4e−16 | ✓ |
| QARS (lokus ortalaması): A_r (g=20) | 3,22683983 | 3,22683983 | 3,22683983 | 8,3e−16 | ✓ |
| KCHB: A_r (g=6) | 3,04312889 | 3,04312889 | 3,04312889 | 1,5e−16 | ✓ |
| QARS: A_r (g=6) | 2,33505726 | 2,33505726 | 2,33505726 | 1,9e−15 | ✓ |
| Lokus özeti NFF3: H_o | 0,28511696 | 0,28511696 | 0,28511696 | 3,3e−13 | ✓ |
| Lokus özeti NFF3: H_s | 0,29149602 | 0,29149602 | 0,29149602 | 4,0e−13 | ✓ |
| Lokus özeti NFF3: H_t | 0,30271736 | 0,30271736 | 0,30271736 | 1,5e−13 | ✓ |
| Lokus özeti NFF3: F_{IS} | 0,02188388 | 0,02188388 | 0,02188388 | 4,0e−13 | ✓ |
| NFF3, bütün örneklem: uH_e | 0,28879785 | 0,28879785 | 0,28879785 | 5,6e−17 | ✓ |
| NFF3, bütün örneklem: PIC | 0,26132134 | 0,26132134 | 0,26132134 | 5,6e−17 | ✓ |
| NFF3, bütün örneklem: I | 0,55226412 | 0,55226412 | 0,55226412 | 2,2e−16 | ✓ |
| Lokus özeti SFb5: H_o | 0,4215428 | 0,4215428 | 0,4215428 | 3,5e−13 | ✓ |
| Lokus özeti SFb5: H_s | 0,4452341 | 0,4452341 | 0,4452341 | 1,9e−13 | ✓ |
| Lokus özeti SFb5: H_t | 0,51035012 | 0,51035012 | 0,51035012 | 4,0e−14 | ✓ |
| Lokus özeti SFb5: F_{IS} | 0,05321088 | 0,05321088 | 0,05321088 | 2,2e−13 | ✓ |
| SFb5, bütün örneklem: uH_e | 0,52471761 | 0,52471761 | 0,52471761 | 3,3e−16 | ✓ |
| SFb5, bütün örneklem: PIC | 0,41761453 | 0,41761453 | 0,41761453 | 0 | ✓ |
| SFb5, bütün örneklem: I | 0,80883455 | 0,80883455 | 0,80883455 | 4,4e−16 | ✓ |
| Genel H_o | 0,57811943 | 0,57811943 | 0,57811943 | 1,8e−14 | ✓ |
| Genel H_s | 0,5955043 | 0,5955043 | 0,5955043 | 2,9e−13 | ✓ |
| Genel H_t | 0,62962855 | 0,62962855 | 0,62962855 | 3,7e−13 | ✓ |
| Genel F_{IS} | 0,02919352 | 0,02919352 | 0,02919352 | 1,6e−13 | ✓ |
| Özel alel sayısı | 26 | 26 | 26 | 0 | ✓ |
| Özel alel kopya sayısı | 36 | 36 | 36 | 0 | ✓ |
| Toplam alel sayısı (lokus özeti) | 109 | 109 | 109 | 0 | ✓ |
| KCHB: F bootstrap alt (%90, B=999) | −0,00878665 | −0,00878665 | −0,00878665 | 2,3e−14 | ✓ |
| KCHB: F bootstrap üst (%90, B=999) | 0,1915054 | 0,1915054 | 0,1915054 | 1,5e−13 | ✓ |
| EHDN: F bootstrap alt (%90, B=999) | 0,05645308 | 0,05645308 | 0,05645308 | 4,9e−13 | ✓ |
| EHDN: F bootstrap üst (%90, B=999) | 0,22972144 | 0,22972144 | 0,22972144 | 2,2e−13 | ✓ |
| HNKT: F bootstrap alt (%90, B=999) | −0,20711456 | −0,20711456 | −0,20711456 | 1,7e−13 | ✓ |
| HNKT: F bootstrap üst (%90, B=999) | 0,03119648 | 0,03119648 | 0,03119648 | 3,4e−13 | ✓ |
Ölçütü karşılayan: 63/63. Python: sayımdan frekans, Botstein çift toplamı, tam binom katsayılarıyla seyreltme; bootstrap, R'nin rastgele sayı akışı yeniden kurularak. R: hierfstat::basic.stats ve allelic.richness, poppr::poppr, locus_table ve private_alleles, vegan::diversity; PIC için 1-\sum p^2-(\sum p^2)^2+\sum p^4 özdeşliği.
Satırları karıştırılmış veriyle yapılan çalıştırmada (4) bütün tablolar ve bootstrap aralıkları örnek dosyanınkiyle birebir aynıdır (en büyük fark 0): sonuç verinin satır sırasına bağlı değildir.
73.7 Çıktıyı okuma
Örnek ayarın konsol metni iki satırdır: genotip okuma dökümü ve özet.
Genotip okuma: 10 lokusta 3510 genotipin 72 tanesi eksik sayıldı (boş hücre: 72; eksik kodu: 0; alellerinden yalnız biri eksik kodu: 0; başka neden: 0).
Genetik çeşitlilik: 351 birey, 10 lokus, 15 popülasyon; alel zenginliği seyreltme büyüklüğü g = 20 gen
Tablolar (seçilmiş satırlar, üç ondalığa kısaltılmış; tablolarda tam hassasiyet saklanır):
Popülasyon özeti (lokuslar üzerinden ortalama; F = 1 − Ho/uHe)
 populasyon n_ort lokus  Na    Ne    Ho   uHe    Hs     F   PIC     I    Ar ozel_alel  F_Hs
       BTJF  29.2    10 5.7 3.396 0.582 0.607 0.607 0.041 0.548 1.209 4.397         3 0.042
       CHIR  28.0    10 5.9 3.464 0.629 0.631 0.632 0.005 0.564 1.253 4.571         1 0.005
       EHDN  18.4    10 4.2 2.469 0.446 0.522 0.524 0.146 0.460 0.967 3.671         0 0.149
 …
       KCHB  29.3    10 6.5 3.710 0.568 0.616 0.617 0.077 0.568 1.300 4.949         4 0.079
       QARS  10.9    10 3.3 2.127 0.448 0.497 0.500 0.099 0.416 0.834 3.227         2 0.103

Lokus × popülasyon çeşitliliği (He = 1 − Σp²; uHe Nei 1978; Hs Nei 1987)
 lokus populasyon  n Na    Ne    Ho    He   uHe    Hs      F   PIC     I    Ar ozel_alel
  NFF3       BTJF 30  4 1.403 0.333 0.287 0.292 0.291 -0.141 0.262 0.557 2.637         0
  NFF3       KCHB 30  3 1.361 0.233 0.265 0.269 0.270  0.134 0.247 0.518 2.635         0
  NFF3       QARS 11  1 1.000 0.000 0.000 0.000 0.000    NaN 0.000 0.000 1.000         0
 …

Lokus özeti (Ho, Hs, Ht, Fis: hierfstat::basic.stats tanımı; *_toplam: bütün örneklem)
 lokus   n populasyon_sayisi Na    Ne    Ho    Hs    Ht    Fis uHe_toplam PIC_toplam I_toplam
  NFF3 351                15  4 1.405 0.285 0.291 0.303  0.022      0.289      0.261    0.552
  NFF7 351                15 17 6.051 0.799 0.794 0.831 -0.006      0.836      0.816    2.080
 …
  SFb4 339                15 13 4.582 0.633 0.746 0.784  0.151      0.783      0.748    1.696
  SFb5 296                15  3 2.100 0.422 0.445 0.510  0.053      0.525      0.418    0.809

Genel (lokus ortalaması)
    Ho    Hs    Ht   Fis
 0.578 0.596 0.630 0.029

Özel aleller (yalnız bir popülasyonda görülen)
 populasyon lokus alel sayi
       HNKF  NFF7  145    1
       MKTF  NFF7  181    2
 …
| Öğe | Ne yazar | Nasıl yorumlanır |
|---|---|---|
| Popülasyon özeti | Her popülasyon için lokus ortalamaları; lokus sütunu ortalamaya giren lokus sayısı |
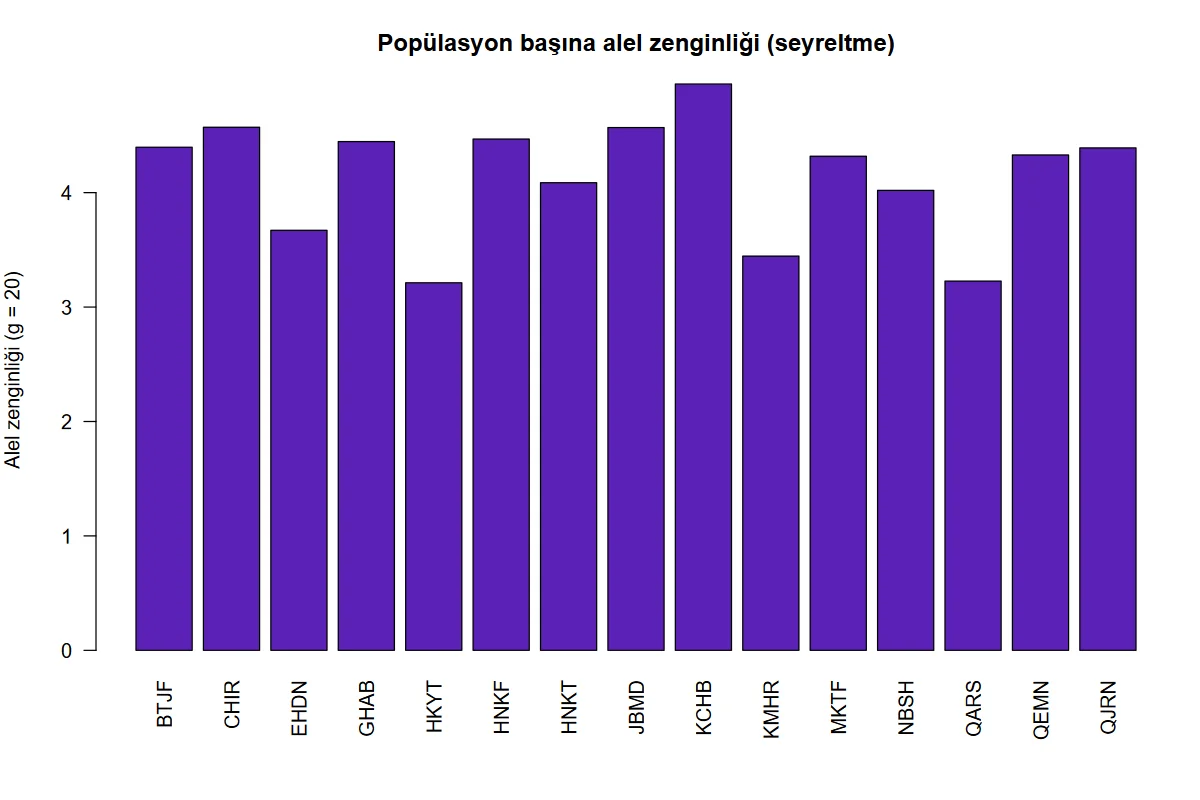
Popülasyonlar arası karşılaştırmanın ana tablosu. Örnekte uH_e 0,497 (QARS) ile 0,631 (CHIR), A_r 3,21 (HKYT) ile 4,95 (KCHB) arasındadır. N_a yerine A_r karşılaştırılır. Son sütun F_Hs yayımlanan F_{IS}'dir (KCHB 0,079). |
| Genotip okuma satırı | Kaç lokusta kaç genotipin eksik sayıldığı ve nedeni | Sayı, veride beklenen eksik genotip sayısıyla karşılaştırılır (örnekte 72 boş hücre). "Eksik kodu" sayısı beklenenden büyükse 0 ya da -9 gerçek bir alel adı olabilir. |
F (popülasyon) |
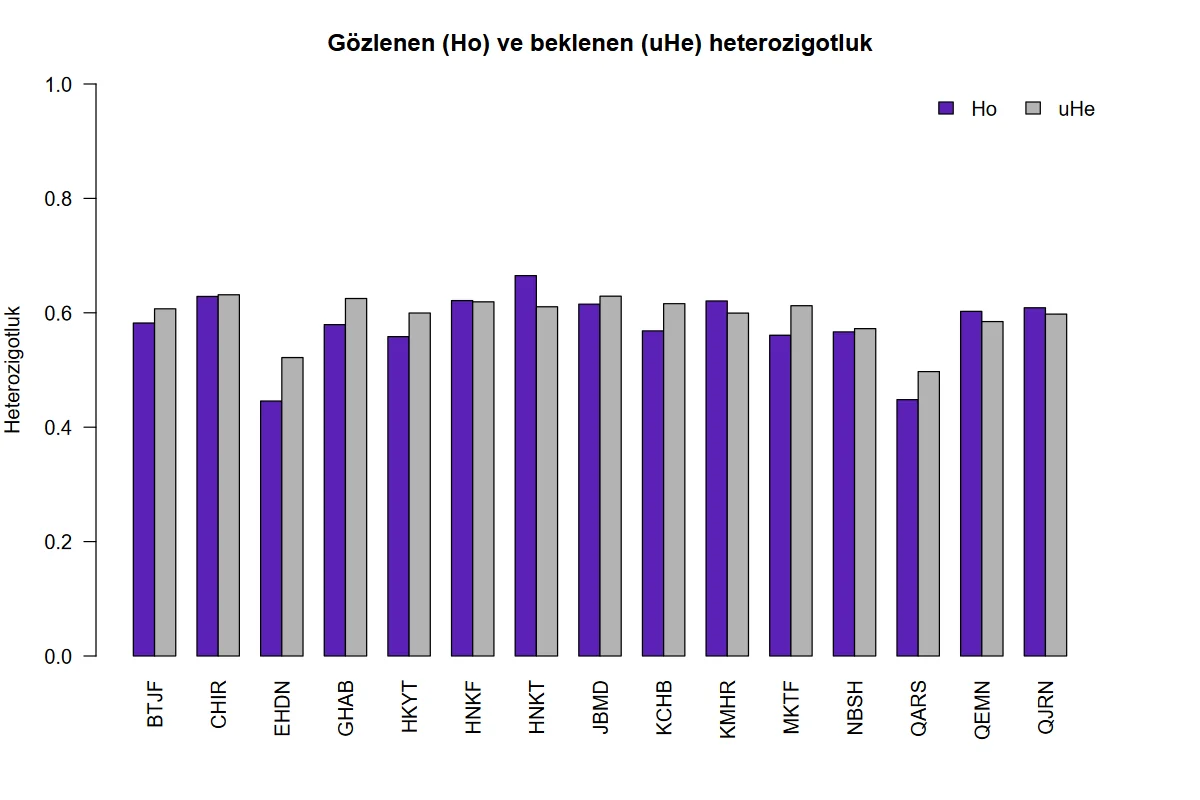
1-\bar H_o/\overline{uH_e}; ortalamalar en az iki bireyli hücrelerden (73.4.7) | Pozitif değer heterozigot eksikliği. En yüksek EHDN'dedir (0,146); altı popülasyonda sıfıra çok yakın ya da negatiftir. Boşsa popülasyonun en az iki bireyli hücresi yoktur. |
| Lokus × popülasyon | 150 hücrenin her biri için bütün ölçüler | Tek tek hücreler küçük örnekleme dayanır; n sütunu her yorumdan önce okunur. F boşsa hücrede tek alel ya da tek birey vardır. |
| Lokus özeti | \bar H_o, \bar H_s, H_t, F_{IS} ve bütün örneklemde belirteç ölçüleri | H_t-\bar H_s popülasyonlar arası payı gösterir. PIC_toplam belirtecin bilgi içeriğidir: NFF7, NFH3, SF78, SFb4, NFH15 0,7'nin üstünde; NFF3 0,26 ile en düşük. |
| Genel | Lokus ortalamaları ve F_{IS} | Raporlanacak özet değerler. |
| Özel aleller | Yalnız bir popülasyonda görülen aleller ve kopya sayıları | Tek kopyalı özel alel örnekleme rastlantısı olabilir (26 alelin 18'i tek kopyadır). |
Bootstrap tablosu (fis_B > 0) |
Popülasyon F'si ve kantil sınırları | Aralık sıfırı içeriyorsa heterozigot eksikliği lokuslar arasında tutarlı değildir. Tabloda olmayan popülasyonun en az iki bireyli hücresi ikiden azdır. |
| Şekil 1 | Popülasyon başına H_o (mor) ve uH_e (gri) çubukları | Mor çubuk griden kısaysa heterozigot eksikliği. |
| Şekil 2 | Popülasyon başına ortalama A_r | Dikey eksen başlığında g yazar. |
Şekil 73.1. Şablonun çizdiği gözlenen (H_o) ve yansız beklenen (uH_e) heterozigotluk çubukları (örnek veri, 15 popülasyon). EHDN ve QARS'ta iki çubuk da düşüktür; HNKT'de gözlenen değer beklenenden yüksektir.
Şekil 73.2. Popülasyon başına ortalama alel zenginliği (g=20 gen). En zengin popülasyon KCHB, en yoksullar HKYT ve QARS'tır.
Rapor cümlesi (örnek ayar; bootstrap çalıştırma 3'ten):
On mikrosatellit lokusunda toplam 109 alel saptandı. Popülasyon başına yansız beklenen heterozigotluk 0,497 (QARS) ile 0,631 (CHIR), 20 gene seyreltilmiş alel zenginliği 3,21 (HKYT) ile 4,95 (KCHB) arasında değişti. Ortalama gözlenen heterozigotluk 0,578, popülasyon içi gen çeşitliliği (H_s) 0,596 ve toplam gen çeşitliliği (H_t) 0,630 bulundu; genel F_{IS} 0,029'du. Popülasyon düzeyinde içsel akrabalık katsayısı −0,089 (HNKT) ile 0,146 (EHDN) arasındaydı; lokuslar üzerinden bootstrap %90 güven aralığı yalnız EHDN'de sıfırı dışladı (0,056–0,230). On bir popülasyonda toplam 26 özel alel gözlendi.
73.8 Sık hatalar ve tuzaklar
- Alel adı olarak 0 kullanmak.
0,00,000ve-9eksik veri kodudur. Bir alelin adı 0 ise0/143gibi genotipler görülür görülmez çalıştırma durur: "'NFF3' lokusunda 100 genotipte alellerden yalnız biri eksik kodu ('0'; ör. '0/143') …". Alelleri 0 ve 1 diye adlandırılmış SNP verisi de (0/0,0/1,1/1) aynı iletiyle durur. AlellerA/Bya da1/2gibi adlarla yeniden kodlanır; SNP'ler için sayısal 0/1/2 kodlaması ayrı bir yoldur. Çalıştırmanın durmadığı tek durum, 0 adlı alelin yalnız homozigotlarda (0/0) görülmesidir; bu genotipler eksik sayılır ve okuma dökümünde "eksik kodu" sayısı olarak görünür. Alana Eksik genotip kodları yalnız veride gerçekten eksik olan kodu (ör..) yazmak yeniden kodlamayı gereksiz kılar:0o zaman gerçek alel sayılır. - Eksik genotipi tanınmayan bir kodla yazmak. Tanınan eksik kodları 73.2'deki listedir;
-9/-9bunlardandır ve boş hücreyle aynı sonucu verir (boş hücreleri-9/-9yapılmış örnek veride bütün tablolar örnek dosyanınkiyle birebir aynıdır).-1/-1,999/999ya daN/Ngibi yazımlar ise eksik sayılmaz; o adla bir alel doğar, alel sayıları ve özel aleller artar, homozigot görünen "eksik" bireyler F'yi yükseltir. Okuma dökümündeki eksik genotip sayısı verideki eksik sayısıyla karşılaştırılır; tutmuyorsa eksik hücreler boş bırakılır. - 0/1/2 kodlu SNP sütununun türü. Sayısal kodlama yalnız sütun veri sekmesinde "sayısal" türdeyken tanınır. Sütun "kategorik" ya da "metin" türüne çevrilmişse "ayırıcı içermeyen genotip" iletisi çıkar; sütun türü sayısala çevrilir.
- N_a ile popülasyonları karşılaştırmak. 30 ağaçlık popülasyonda 11 ağaçlık popülasyondan daha çok alel bulunması beklenir. Karşılaştırma A_r ile yapılır; N_a yalnız betimleyicidir.
- Çok küçük bir popülasyonu çözümlemede bırakmak. Tek bireyli bir hücre g'yi 2'ye indirir (73.4.4). Ayrıca tek bireyli hücrede uH_e ya 0 ya 1'dir, H_s ve F tanımsızdır; şablon bu hücrelerin sayısını ve popülasyonlarını bildirir ("Uyarı: 9 hücrede (lokus × popülasyon) tek birey var: EHDN. …"), popülasyonun H_s ve F değerlerini kalan hücrelerden hesaplar, kalan hücre yoksa boş bırakır. Tek bireye dayanan öteki ortalamalar (H_o, uH_e, PIC, I) tabloda yer alır ama kestirim değildir. Beşten az bireyli popülasyonlar çıkarılır ya da komşusuyla birleştirilir.
- Seyreltme büyüklüğünü elle büyütüp ortalamaları yorumlamak.
seyreltme = 40yazıldığında örnek veride 150 hücrenin 54'ü boş kalır ve 15 popülasyonun 8'inde ortalama A_r verilmez. Kalan popülasyonların ortalamaları yalnız kendi aralarında karşılaştırılır. - Tek biçimli lokusları fark etmeden bırakmak. Bütün bireylerde aynı olan bir lokus uyarıyla tutulur ve ortalamalara 0 heterozigotluk, 1 alel olarak girer; popülasyon ortalamaları düşer (F değişmez). Uyarı bunu söyler: "tek biçimli (monomorfik) lokus: MONO (heterozigotluk 0, F tanımsız; lokus popülasyon ortalamalarına girer ve Ho, uHe ile alel zenginliği ortalamalarını düşürür)". Örnek veriye sabit bir lokus eklendiğinde BTJF'nin H_o ortalaması 0,582'den 0,529'a, uH_e 0,607'den 0,552'ye, A_r 4,397'den 4,088'e iner; F 0,041'de kalır. Çalışmalar arası karşılaştırmada lokus kümesinin aynı olması gerekir.
Fsütununu yayımlanmış F_{IS} ile doğrudan karşılaştırmak. Şablonun F'si uH_e paydalıdır; birçok yazılım H_s paydalı değeri verir. Fark küçüktür (örnekte en çok 0,005) ama üçüncü ondalıkta görünür; yayımlanan değerle karşılaştırmak için son sütunF_Hskullanılır.- Yüksek F'yi akrabalı çiftleşme diye yorumlamak. Akrabalı çiftleşme bütün lokusları etkiler. Lokus özetinde F_{IS} yalnız birkaç lokusta yüksekse (örnekte SFb4 0,151; SF50 0,097) neden çoğu kez okunamayan (boş) alellerdir; bu iki lokus eksik genotipi olan beş lokus arasındadır.
- Özel alel sayısını popülasyonun "özgünlüğü" saymak. Ölçüt tek kopyayı da sayar ve örneklem büyüdükçe artar. Örnekte 26 özel alelin 18'i tek kopyadır; en çok özel aleli olan popülasyonlar büyük örneklemli olanlardır.
- Az lokusla bootstrap aralığına fazla güvenmek. On lokusta her tekrar on lokusluk bir çekiliştir; aralığın genişliğini B değil lokus sayısı belirler. B=999 ile KCHB'nin %90 üst sınırı 100 farklı tohumda 0,173 ile 0,201 arasında kalmıştır.
- Popülasyon alanını boş bırakıp sonuçları popülasyon içi çeşitlilik diye okumak. Tek popülasyon kipinde bütün bireyler birleştirilir; alt yapı varsa H_o<uH_e çıkar (örnekte F=0{,}078; popülasyonlar ayrıyken genel F_{IS}=0{,}029). Aradaki fark Wahlund etkisidir.
73.9 Uzman soruları
S1. H_e, uH_e ve H_s'den hangisi raporlanmalı?
Düzeltmesiz H_e yalnız büyük örneklemde uygundur; küçük örneklemde sistematik olarak düşüktür (n=11 için yanlılık çarpanı 21/22). Popülasyonlar farklı büyüklükteyse uH_e (Nei, 1978) ya da H_s (Nei, 1987) raporlanır. uH_e "beklenen heterozigotluk" adıyla en yaygın olanıdır; H_s, H_t ile birlikte gen çeşitliliği ayrıştırmasının parçasıdır ve F_{IS}'in paydasıdır. Hangisi seçilirse seçilsin kestiricinin adı yazılır; şablon üçünü de verir.
S2. Popülasyon F'si neden hücre F'lerinin ortalaması değil?
Hücre F'si bir orandır ve paydası küçüldükçe gürültüsü büyür: NFF3 × HKYT hücresinde F=0{,}517, aynı lokusta GHAB'da -0{,}194'tür ve ikisi de 12–24 ağaca dayanır. Oranların ortalaması bu uç değerlere eşit ağırlık verir; tek alelli hücrelerde ise F tanımsızdır ve ortalamadan düşer. Ortalamaların oranı her lokusu çeşitliliğiyle tartar ve tanımsız hücre sorununu ortadan kaldırır. Bu, çok lokuslu F kestiriminde olağan yoldur.
S3. Seyreltme büyüklüğü neden bütün hücrelerin en küçüğü; popülasyon başına en küçük olamaz mı?
Alel zenginliği yalnız aynı g ile hesaplandığında karşılaştırılabilir. Lokuslar arasında g değişirse popülasyon ortalaması farklı ölçeklerin karışımı olur; popülasyonlar arasında değişirse karşılaştırmanın amacı ortadan kalkar. Bedeli, tek bir zayıf hücrenin bütün tabloyu aşağı çekmesidir. Örnek veride g=20 makul bir değerdir; Awad ve ark. (2014) ayrıca başka çalışmalarla karşılaştırmak için g=6 değerlerini de vermiştir, şablonda bunun için seyreltme = 6 yazılır.
S4. Seyreltme ile alt örneklemleri bilgisayarda çekip ortalamak arasında fark var mı?
Formül, yerine koymadan çekilen g genlik bütün alt örneklemler üzerindeki beklenen değeri kapalı biçimde verir (hipergeometrik dağılım); benzetimle ortalama almak aynı sayıya rastgele hata ekler. Bu yüzden A_r'de tohuma bağlılık yoktur. Formül bireyleri değil genleri çeker: aynı bireyin iki aleli bağımsız sayılır. Heterozigot eksikliği güçlüyse bu varsayım alel zenginliğini biraz yüksek gösterir; etkisi genellikle üçüncü ondalıktadır.
S5. PIC ile H_e arasındaki ilişki nedir; ikisini birden vermek gerekli mi?
PIC her zaman H_e'den küçüktür ve fark \sum_{i<j}2p_i^2p_j^2'dir. İki alelli bir lokusta fark en büyüktür (p=0{,}5 için H_e=0{,}5, PIC =0{,}375); alel sayısı arttıkça fark kapanır (NFH3: 0,829 ve 0,808). PIC haritalama ve babalık çözümlemesi geleneğinden gelir ve belirteç panellerini tanıtırken beklenir; popülasyon genetiği raporlarında H_e yeterlidir. İkisinin sıralaması hemen hemen aynıdır.
S6. Özel aleller seyreltilemez mi?
Seyreltilebilir: Kalinowski (2004) ve Szpiech ve ark. (2008) eşit örneklem büyüklüğüne indirgenmiş "özel alel zenginliği"ni tanımlar. Şablon bunu hesaplamaz; yalnız ham sayıyı ve kopya sayısını verir. Kopya sayısı sütunu kaba bir süzgeç olarak kullanılabilir: en az iki kopyalı özel aleller örnekleme rastlantısına daha az bağlıdır (örnekte 26'nın 8'i).
S7. Lokus özetindeki F_{IS} ile `f_istatistikleri` şablonunun F_{IS}'i neden farklı?
Buradaki F_{IS}=1-\bar H_o/\bar H_s Nei'nin (1987) heterozigotluk oranıdır: popülasyonlar eşit ağırlıkla, lokuslar aritmetik ortalamayla girer (genel 0,0292). f_istatistikleri Weir ve Cockerham'ın (1984) varyans bileşeni kestiricisini kullanır: popülasyonlar örneklem büyüklüğüyle tartılır, genel değer bileşen toplamlarının oranıdır (0,0294). İki kestirici aynı büyüklüğü hedefler; dengeli örneklemde çakışır, dengesiz örneklemde üçüncü–dördüncü ondalıkta ayrışır.
S8. Eksik genotipler lokuslar arasında çok farklıysa (SFb5'te 55 eksik) popülasyon ortalamaları yanlı olur mu?
Her hücre kendi n'siyle hesaplanır; eksik veri o hücrenin kesinliğini düşürür, ama rastgeleyse yanlılık yaratmaz. Yansız kestiriciler (uH_e, H_s) ve seyreltme, farklı n'leri karşılaştırılabilir kılmak için vardır. Yanlılık, eksikliğin nedeni genotipe bağlıysa doğar: okunamayan alel taşıyan homozigotlar eksik, heterozigotlar homozigot kaydedilir; H_o düşer, F yükselir. SFb5 × KCHB hücresinde F=0{,}615 olması (23 ağaç) bu tür bir lokus sorununa işaret eder; duyarlılık çözümlemesi için lokus çıkarılıp ortalamalar yeniden hesaplanır.
S9. SNP'lerde 0/1/2 kodlamasında hangi alelin "B" olduğu sonucu etkiler mi?
Etkilemez. Bütün ölçüler alel adlarına göre simetriktir: frekanslar yer değiştirir, \sum p^2, H_o ve seyreltme toplamı aynı kalır. Özel alel listesinde yalnız ad değişir. Dikkat edilecek tek nokta, sütunun veri sekmesinde sayısal türde olmasıdır.
73.10 Kaynaklar
- Awad, L., Fady, B., Khater, C., Roig, A., & Cheddadi, R. (2014). Genetic structure and diversity of the endangered fir tree of Lebanon (Abies cilicica Carr.): Implications for conservation. PLoS ONE, 9(2), e90086. https://doi.org/10.1371/journal.pone.0090086
- Botstein, D., White, R. L., Skolnick, M., & Davis, R. W. (1980). Construction of a genetic linkage map in man using restriction fragment length polymorphisms. American Journal of Human Genetics, 32(3), 314–331.
- El Mousadik, A., & Petit, R. J. (1996). High level of genetic differentiation for allelic richness among populations of the argan tree [Argania spinosa (L.) Skeels] endemic to Morocco. Theoretical and Applied Genetics, 92(7), 832–839. https://doi.org/10.1007/BF00221895
- Goudet, J. (2005). hierfstat, a package for R to compute and test hierarchical F-statistics. Molecular Ecology Notes, 5(1), 184–186. https://doi.org/10.1111/j.1471-8286.2004.00828.x
- Goudet, J., & Jombart, T. (2022). hierfstat: Estimation and tests of hierarchical F-statistics (R package version 0.5-11). https://doi.org/10.32614/CRAN.package.hierfstat
- Hurlbert, S. H. (1971). The nonconcept of species diversity: A critique and alternative parameters. Ecology, 52(4), 577–586. https://doi.org/10.2307/1934145
- Jombart, T. (2008). adegenet: A R package for the multivariate analysis of genetic markers. Bioinformatics, 24(11), 1403–1405. https://doi.org/10.1093/bioinformatics/btn129
- Kalinowski, S. T. (2004). Counting alleles with rarefaction: Private alleles and hierarchical sampling designs. Conservation Genetics, 5(4), 539–543. https://doi.org/10.1023/B:COGE.0000041021.91777.1a
- Kamvar, Z. N., Tabima, J. F., & Grünwald, N. J. (2014). Poppr: An R package for genetic analysis of populations with clonal, partially clonal, and/or sexual reproduction. PeerJ, 2, e281. https://doi.org/10.7717/peerj.281
- Kimura, M., & Crow, J. F. (1964). The number of alleles that can be maintained in a finite population. Genetics, 49(4), 725–738. https://doi.org/10.1093/genetics/49.4.725
- Lewontin, R. C. (1972). The apportionment of human diversity. Evolutionary Biology, 6, 381–398. https://doi.org/10.1007/978-1-4684-9063-3_14
- Nei, M. (1973). Analysis of gene diversity in subdivided populations. Proceedings of the National Academy of Sciences, 70(12), 3321–3323. https://doi.org/10.1073/pnas.70.12.3321
- Nei, M. (1978). Estimation of average heterozygosity and genetic distance from a small number of individuals. Genetics, 89(3), 583–590. https://doi.org/10.1093/genetics/89.3.583
- Nei, M. (1987). Molecular evolutionary genetics. Columbia University Press. https://doi.org/10.7312/nei-92038
- Nei, M., & Chesser, R. K. (1983). Estimation of fixation indices and gene diversities. Annals of Human Genetics, 47(3), 253–259. https://doi.org/10.1111/j.1469-1809.1983.tb00993.x
- Oksanen, J., Simpson, G. L., Blanchet, F. G., Kindt, R., Legendre, P., ve ark. (2025). vegan: Community ecology package (R package version 2.7-6). https://doi.org/10.32614/CRAN.package.vegan
- Szpiech, Z. A., Jakobsson, M., & Rosenberg, N. A. (2008). ADZE: A rarefaction approach for counting alleles private to combinations of populations. Bioinformatics, 24(21), 2498–2504. https://doi.org/10.1093/bioinformatics/btn478