62. Akrabalık: Genotip, Soy Kütüğü ve Genomik Matris
Şablon kimliği: akrabalik · Kategori: genetik · Dil: R · Dosya: pro/sablonlar/genetik/akrabalik.R (satır 1–435; üstbilgi 1–113) · Örnek veri: _ornek/akrabalik_benzetim.csv (soy kütüğü ve genomik kip için mrode_tablo21.csv, cam_snp.csv) · Paketler: yok (yalnız taban R)
62.1 Ne işe yarar
Şablon "bu iki birey ne kadar akraba?" sorusunu, eldeki bilgiye göre üç ayrı yoldan cevaplar. Üç yol, formdaki Veri türü / kip alanıyla seçilir ve aynı büyüklüğün üç farklı kestirimini verir: iki bireyin soydan özdeş (ortak bir atadan kopyalanmış) alel paylaşma derecesi.
| Kip | Girdi | Çıktı |
|---|---|---|
| Genotip | Az sayıda eş baskın belirteç (mikrosatellit ya da SNP) | Her birey çifti için akrabalık katsayısı r'nin beş moment kestirimi |
| Soy kütüğü | Birey, baba, ana sütunları | Eklemeli akrabalık matrisi \mathbf A, kendileşme katsayısı F, ortak ata katsayısı |
| Genomik | Çok sayıda SNP (0/1/2) | VanRaden genomik akrabalık matrisi \mathbf G, genomik kendileşme |
Üç büyüklük birbirine şöyle bağlıdır:
- \theta_{xy}: ortak ata katsayısı (kinship, coancestry); x'ten ve y'den rastgele çekilen birer alelin soydan özdeş olma olasılığı.
- r_{xy}: akrabalık katsayısı; ebeveyn–yavru ve tam kardeşte 0,5; yarım kardeşte 0,25; akraba olmayanlarda 0.
- A_{xy}: eklemeli (pay) akrabalık; soy kütüğünden hesaplanır. F_x: bireyin kendileşme katsayısı, ebeveynlerinin ortak ata katsayısına eşittir.
Ne zaman kullanılır? Genotip kipi: soy kütüğü bilinmeyen doğal popülasyonlarda, tohum bahçesi ya da koleksiyonlarda aile yapısını taramak için. Soy kütüğü kipi: ıslah programlarında kendileşmeyi izlemek ve karma model çözümlemesi için \mathbf A kurmak. Genomik kip: yoğun SNP verisinde gerçekleşmiş akrabalığı ölçmek ve genomik seçilim modellerine \mathbf G hazırlamak.
Ne zaman kullanılmaz?
- Binlerce SNP ile çift bazında akrabalık derecesi (ebeveyn–yavru, tam kardeş ayrımı) isteniyorsa:
ld_budama_ibdşablonu k_0, k_1, k_2 olasılıklarını ve KING kestiricisini verir. - Popülasyonlar arası farklılaşma soruluyorsa:
f_istatistikleri,genetik_uzaklik. - \mathbf A ya da \mathbf G ile damızlık değer kestirilecekse:
genomik_seleksiyon,kalitim_derecesi; şablon matrisi verir, modeli kurmaz. - Olabilirlik tabanlı kestirim, çift başına güven aralığı ya da ebeveynlik ataması gerekiyorsa: şablonda yoktur; moment kestiricileri tek çift için kabadır (62.8).
- Baskın belirteçler, haploit ya da poliploit veri: ayrıştırıcı yalnız diploit, iki alelli genotipi kabul eder.
Temel programla ilişki. Temel programda akrabalık ya da kendileşme hesaplayan bir analiz yoktur.
62.2 Şablonun girdileri
Form, üstbilgideki on beş [[param]] bloğundan kurulur (akrabalik.R:10–112). Alanların çoğu yalnız bir kipte okunur.
| Alan (form etiketi) · ad | Tür · sekme | Varsayılan | Geçerli değerler | Kodda etkisi |
|---|---|---|---|---|
Veri türü / kip · veri_turu |
seçim · Model | genotip |
genotip, soy_kutugu, genomik |
Üç koldan birini seçer (130, 162, 213, 270). |
Lokus / SNP sütunları · lokuslar |
sütunlar · Değişkenler | yok | sütun listesi | Genotip ve genomik kipte belirteçler (215, 272). |
Birey kimliği · birey |
sütun · Değişkenler | boş | herhangi bir sütun | Çift tablolarındaki adlar; boşsa satır numarası (134–140). |
Aile / grup · grup |
kategorik sütun · Değişkenler | boş | herhangi bir sütun | Genotip kipinde grup içi ortalamalar (404–416). |
Soy kütüğü: birey · hayvan |
sütun · Değişkenler | boş | herhangi bir sütun | Soy kütüğü kipinde birey kimliği (164–167). |
Soy kütüğü: baba · baba |
sütun · Değişkenler | boş | herhangi bir sütun | Boş, 0, NA, -, . bilinmeyen sayılır; sayısal kimlikler her sütun türünde aynı metne çevrilir (166). |
Soy kütüğü: ana · ana |
sütun · Değişkenler | boş | herhangi bir sütun | Aynı kural. |
Alel ayırıcısı · ayirici |
metin · Değişkenler | / |
boş olmayan metin | Genotip kipinde metin genotipi böler (118–124, 274). |
Eksik genotip kodları · eksik_kodlar |
metin · Değişkenler | boş | virgülle ayrılmış kodlar | Boşsa varsayılan liste (boş hücre, NA, 0, 00, 000, ?, -, ., -9) eksik sayılır; doluysa alandaki kodlar bu listenin yerine geçer (boş hücre ve NA her zaman eksik); baş ve son boşluk kırpılır, boş kodlar atılır (satır 118–119; Bölüm 1.5). |
Dış alel frekansları · referans_frekans |
metin · Seçenekler | boş | L01: 130=0.25, 134=0.46; L02: … |
Genotip kipinde frekanslar örneklem yerine buradan alınır (280–300). |
En küçük alel frekansı süzgeci · maf |
ondalık · Seçenekler | 0 | 0–0,45 | Genomik kipte MAF'ı eşiğin altındaki SNP'ler atılır (231, 241). |
Genomik akrabalık yöntemi · genomik_yontem |
seçim · Model | vanraden1 |
vanraden1, vanraden2 |
\mathbf G'nin ölçeklemesi (232, 251–263). |
SNP başına en çok eksik oranı · eksik_esik |
ondalık · Seçenekler | 1 | 0–1 | Genomik kipte eksik oranı eşiği aşan SNP'ler atılır (234–240). |
Tam matris tablosu için en çok birey · matris_en_cok |
tam sayı · Çıktı | 200 | 2–3000 | \mathbf A ya da \mathbf G tablosu yalnız birey sayısı bu sınırı aşmıyorsa yazılır (211, 268). |
Isı haritası için en çok birey · harita_en_cok |
tam sayı · Çıktı | 400 | 2–3000 | Daha çok bireyde ısı haritası çizilmez (142). |
Örnek ayar (ornek_param, satır 9): veri_turu = genotip, on lokus (L01–L10), birey = birey, grup = aile.
Genotip yazımı. Genotip kipi, genetik şablonlarının ortak ayrıştırıcısını (mq_genotip) kullanır (satır 116–125): sayısal sütunda 0/1/2 ("B alelinin sayısı"), metin sütunda alel1/alel2. Veri sekmesinde kategorik ya da metin türünde gelen ve değerlerinin hepsi 0, 1, 2 olan sütun da sayısal kodlama olarak okunur (119–125). Boş hücre, NA, na, 0, 00, 000, ?, -, ., -9 eksik genotip sayılır; iki alel de eksik kodu olmalıdır (0/0, -9/-9). Alellerinden yalnız biri eksik kodu olan genotip (0/1) çalıştırmayı durdurur; adı 0 olan gerçek bir alel varsa yeniden kodlanmalıdır. Eksik genotip kodları alanı doluysa (virgülle ayrılmış, ör. .) alandaki kodlar bu listenin yerine eksik sayılır; boş hücre ve NA her zaman eksiktir ve yarı eksik durma kuralı yeni listeye göre işler: VCF tarzı 0/1 kodlu veride alana yalnız . yazılırsa 0 gerçek alel olur (satır 118–119). Eksik sayılan genotiplerin dökümü konsola yazılır (306). Ayrıntı Bölüm 71.2 ve 1.5'tedir. Genomik kip sütunları doğrudan sayıya çevirir (221) ve yalnız 0, 1, 2 değerlerini kabul eder.
Şablonun kendi denetimleri.
| Kip | Koşul | İleti (özet) | Satır |
|---|---|---|---|
| hepsi | Veri açık değil | "Önce Veri sekmesinde bir veri açın." | 128 |
| genotip, genomik | Birey kimliğinde eksik ya da yinelenen değer | "eksik değer var" / "yinelenmiş" | 137–138 |
| genotip, genomik | 2'den az ya da 3000'den çok birey | "En az 2 birey" / "çok büyük" | 225–226, 277–278 |
| genotip | Lokus seçilmemiş | "lokus sütunlarını seçin" | 273 |
| genotip | Ayrıştırıcı hataları (ayırıcısız, ikiden çok alelli, 0/1/2 dışı sayı, yarı eksik genotip) | Bölüm 71.2 | 112 (ortak mq_genotip) |
| genotip | Dış frekans metni biçime uymuyor | "'lokus: alel=frekans, …' bekleniyor" ya da "'alel=frekans' biçiminde olmalı; … ondalık ayırıcı nokta olmalıdır" | 287, 292 |
| genotip | Dış frekans sayı değil ya da negatif | "sayı değil ya da negatif" | 294 |
| genotip | Bir lokusun dış frekans toplamı 1'den 0,02'den çok sapıyor | "toplamı …; 1 olmalı" | 295 |
| genotip | Seçili bir lokus için dış frekans verilmemiş | "Referans frekansı verilmeyen lokus(lar)" | 298–299 |
| genotip | Örneklemde görülen alel dış frekanslarda yok | "referans frekanslarında yok" | 316 |
| genotip | Çok biçimli lokus kalmadı | "akrabalık kestirilemez" | 367 |
| soy kütüğü | Üç sütundan biri seçilmemiş / aynı sütun iki kez | "seçilmeli" / "farklı sütunlar olmalı" | 164–165 |
| soy kütüğü | Birey yok; kimlik yinelenmiş | "birey yok" / "birden çok kez yer alıyor" | 169–170 |
| soy kütüğü | Birey kendi ebeveyni | "kendi ebeveyni olarak yazılmış" | 171–172 |
| soy kütüğü | 3000'den çok birey (eklenen kurucular dahil) | "Seyrek yöntemler gerekir." | 180 |
| soy kütüğü | Döngü | "döngü var: … kendi atası durumunda" | 188–189 |
| genomik | 2'den az SNP sütunu | "en az 2 SNP sütunu seçin" | 216 |
| genomik | Sayıya çevrilemeyen ya da 0/1/2 dışı değer | "sayısal değil" / "0/1/2 dışında değer" | 221–222 |
| genomik | Süzgeçlerden sonra 2'den az SNP | "en az 2 çok biçimli SNP kalmalı" | 228, 239, 246 |
Uyarılar ve notlar (durdurmaz): tek biçimli lokuslar ve SNP'ler atılır ve bildirilir (243, 366); ortak genotipli lokusu olmayan çiftler için kestirim boş kalır (389); soy kütüğünde kimliği eksik satırlar atılır (168), satırı olmayan ebeveynler kurucu olarak eklenir (175–178) ve eklenen kurucu sayısı satır sayısının yarısına varıyorsa kimlik yazımı için ek uyarı yazılır (177), aynı birey hem baba hem ana olarak geçiyorsa uyarı yazılır ve hesap sürer (173–174); genomik kipte eksik genotipler SNP ortalamasıyla doldurulur ve sayısı yazılır (249).
Eksik değer: genotip kipinde bir çiftin kestirimine yalnız iki bireyin de genotipli olduğu lokuslar girer; çift tablosundaki n_lokus bu sayıdır. Alel frekansları her lokusta o lokusun genotipli bireylerinden hesaplanır.
62.3 Örnek veri
Genotip kipi: akrabalik_benzetim.csv. İlişkisi bilinen çiftlerin benzetimidir: lebistes balığı alel frekanslarından (Pew ve ark., 2015) 25'er ebeveyn–yavru (PO), tam kardeş (SB), yarım kardeş (HS) ve akraba olmayan (UR) çift, toplam 200 birey ve 10 mikrosatellit lokusu. Eksik genotip yoktur.
| Değişken | Rol | Tür (veri sekmesi) | Özet |
|---|---|---|---|
birey |
Birey kimliği | metin | 200 tekil ad (ör. PO0000001p, PO0000001o). |
iliski |
kullanılmaz | kategorik (4 düzey) | PO, SB, HS, UR; her biri 50 birey. |
aile |
Aile / grup | metin | 100 aile, her biri iki birey: gerçek ilişkisi bilinen çift. |
L01–L10 |
Lokuslar | kategorik ya da metin | Alel sayıları: 29, 26, 18, 23, 6, 28, 32, 22, 22, 10. |
Bu veride 19 900 birey çifti vardır; yalnız 100'ü aynı ailedendir. Aile içi çiftlerin beklenen ortalama akrabalığı (0{,}5+0{,}5+0{,}25+0)/4=0{,}3125'tir; kestiriciler bu değerle karşılaştırılabilir.
Soy kütüğü kipi: mrode_tablo21.csv. Mrode'nin (2014) ders kitabındaki altı bireylik soy kütüğü: 1 ve 2 kurucudur; 3'ün babası 1, anası 2; 4'ün babası 1 (anası bilinmiyor); 5'in babası 4, anası 3; 6'nın babası 5, anası 2.
Genomik kip: cam_snp.csv. Resende ve ark.'nın (2012) loblolly çamı verisinden 60 birey ve 300 SNP (0/1/2); eksik değer ve tek biçimli SNP yoktur.
Düzey sırası bu şablonda hiçbir kestirimi etkilemez: çiftler verinin satır sırasıyla, grup tablosu grup adının metin sırasıyla dizilir.
Bu bölümde kullanılan çalıştırmalar: (1) örnek ayar; (2) iki lokus için dış alel frekansları; (3) eksik genotipli ve bir lokusu tek biçimli türetilmiş veri; (4) Mrode soy kütüğü; (5) sekiz bireylik ikinci bir soy kütüğü ve kendilemeli küçük bir soy kütüğü; (6) genomik kip, yöntem 1 ve 2; (7) genomik kip, MAF süzgeci ve eksik değerli veri.
62.4 Yöntem: formüller ve hesap adımları
62.4.1 Genotip kipi: ortak hazırlık
Her lokus için aleller ve frekansları belirlenir; tek biçimli lokus atlanır. x bireyinin genotipi (a,b), y bireyininki (c,d) olsun. Bütün kestiriciler şu göstergelerden kurulur:
- S_{ac}=1 ise x'in birinci aleli ile y'nin birinci aleli aynıdır (durumca özdeş); ötekiler benzer.
- S_{ab}=1 ise x homozigottur.
- p_a, p_b: x'in taşıdığı alellerin popülasyon frekansı. Varsayılan olarak bütün örneklemden kestirilir: p_a=(\text{alel sayısı})/(2N_\ell), N_\ell o lokusta genotipli birey sayısı (satır 322).
Neden frekanslar bu kadar önemli?
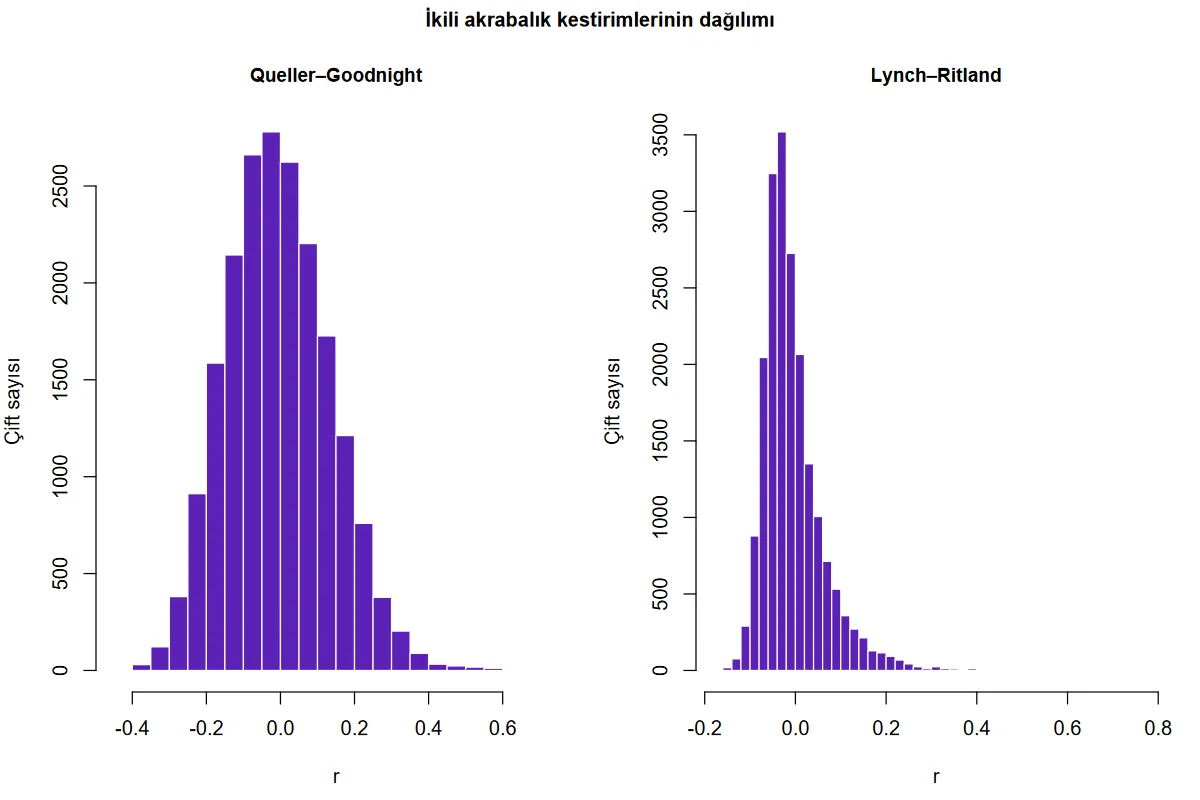
İki birey bir aleli iki nedenle paylaşır: ortak atadan gelmiştir ya da alel popülasyonda yaygındır. Bütün moment kestiricileri gözlenen paylaşımdan, frekanslardan hesaplanan "rastlantısal paylaşım" payını çıkarır. Frekanslar yanlışsa çıkarılan pay da yanlıştır. Frekanslar örneklemin kendisinden kestirildiğinde örneklemin ortalama akrabalığı sıfıra zorlanır: Queller–Goodnight ve Lynch–Ritland kestirimlerinin bütün çiftler üzerinden ortalaması tam -1/(n-1) çıkar (örnek veride -1/199=-0{,}005025).
Koddaki tercih
referans_frekans doluysa frekanslar oradan alınır; her lokusun frekansları toplamı 1 olacak biçimde yeniden ölçeklenir (satır 296), frekansı 0 verilen aleller yok sayılır (314) ve seçili lokusların hepsi için frekans verilmesi zorunludur (298–299). Sayılar ondalık nokta ile yazılır; virgül alelleri ayırır. Hesap n\times n matrislerle, lokus lokus toplanarak yapılır (301–365); en çok 3000 birey kabul edilir.
62.4.2 Queller–Goodnight
- Pay: y'nin, x'in alellerini taşıma düzeyi eksi rastlantıyla beklenen düzey. Payda: x'in kendisiyle karşılaştırıldığında alacağı değer.
- Toplamlar lokuslar üzerindendir; oran toplamlardan alınır (lokus oranlarının ortalaması değil).
- Kestirici simetrik değildir (x "başvuru" bireyidir); şablon iki yönün ortalamasını verir (satır 369).
Neden iki yönün ortalaması?
Payda x'in genotipine bağlıdır: x homozigotken 2-2p_a, heterozigotken 1-p_a-p_b. x ile y'nin yeri değişince başka bir sayı çıkar. Ortalama almak kestiriciyi simetrik yapar ve varyansını düşürür. İki alelli bir lokusta heterozigot başvuru bireyinin paydası sıfırdır (p_a+p_b=1); bu lokus o yönde toplama katkı yapmaz. Bütün lokusları iki alelli ve bir bireyi hepsinde heterozigot olan veride o yön tanımsız kalır.
62.4.3 Lynch–Ritland ve Ritland
Lynch ve Ritland'ın (1999) kestiricisi, her lokusun kestirimini varyansının tersiyle ağırlıklandırır:
- w_\ell: akraba olmayan çiftler için lokus kestiriminin örnekleme varyansının tersi; nadir alel taşıyan başvuru bireyinde büyüktür.
- w_\ell\hat r_{xy,\ell}=\big[p_a(S_{bc}+S_{bd})+p_b(S_{ac}+S_{ad})-4p_ap_b\big]/(2p_ap_b); şablon payı ve paydayı ayrı ayrı toplar (satır 335–338).
- İki yönün ortalaması alınır (370).
Ritland'ın (1996) kestiricisi aynı lokus payını kullanır, ama ağırlığı alel sayısından alır:
- k_\ell: lokustaki alel sayısı (dış frekansta frekansı sıfırdan büyük alel sayısı).
- Pay, Lynch–Ritland'ın w_\ell\hat r_{xy,\ell} terimiyle cebirsel olarak aynıdır; iki kestirici yalnız paydada ayrılır: Lynch–Ritland çifte özgü \sum w_\ell'ye, Ritland bütün çiftler için aynı olan \sum(k_\ell-1)'e böler.
- Kestirici simetriktir; yön ortalaması gerekmez.
Yakın akrabalarda aşağı yanlılık
İki kestirici de akraba olmayan çiftler için en küçük varyanslı olacak biçimde ağırlıklandırılmıştır ve nadir alellere büyük ağırlık verir. Frekanslar örneklemden kestirildiğinde, çok alelli lokuslarda yakın akrabaların kestirimi sistematik olarak küçülür: örnek veride ebeveyn–yavru çiftlerinin ortalaması Queller–Goodnight ile 0,518, Lynch–Ritland ile 0,438, Ritland ile 0,373'tür (beklenen 0,5). Şablon frekanslar örneklemden alındığında bu notu konsola yazar (satır 394–395). Ritland kestiricisi ayrıca 1'i aşabilir (örnekte en büyük değer 1,11).
62.4.4 Lynch–Li (benzerlik kestiricisi)
- S_{xy}: Lynch'in (1988) benzerlik indeksi; aynı genotipte 1, biri homozigot öteki onu taşıyan heterozigotta 0,75, tek ortak alelli iki heterozigotta 0,5, ortak alel yoksa 0.
- S_0: akraba olmayan iki bireyin beklenen benzerliği (Li ve ark., 1993); 2\sum p^2-\sum p^3.
- Kestirici simetriktir. Şablon lokusları pay ve payda toplamlarıyla birleştirir (satır 343–346).
62.4.5 Wang
Wang (2002), çiftin bir lokustaki görünümünü dört sınıfa ayırır ve akrabalığı iki ayrı olasılık üzerinden kestirir: çiftin tek alel çiftini soydan özdeş paylaşması (\phi) ve iki alel çiftini birden paylaşması (\Delta).
- P_1,P_2,P_3: lokusların 1/u_\ell ağırlıklı ortalaması olarak hesaplanan sınıf oranları; u_\ell=2a_2-a_3, akraba olmayan çiftin beklenen benzerliği.
- a_m=\sum_j p_j^m (m=2{,}3{,}4): frekansların kuvvet toplamları. \hat\phi ve \hat\Delta, bu toplamlardan türetilen altı katsayı (b,c,d,e,f,g) ile P_1,P_2,P_3'ün kapalı biçimli fonksiyonlarıdır (satır 358–382).
- Frekanslar örneklemden kestirilmişse a_2,a_3,a_4 örneklem büyüklüğü N_\ell için düzeltilir, ör. a_2=(N_\ell\sum p_j^2-1)/(N_\ell-1) (352–354).
Neden örneklem düzeltmesi ve neden 1/u ağırlığı?
\sum\hat p_j^2, gerçek \sum p_j^2'yi yukarı yanlı kestirir (her frekansın örnekleme varyansı kadar). Wang'ın düzeltmesi bu yanlılığı a_2, a_3 ve a_4 için ardışık olarak giderir; bu sayede kestirici, frekanslar örneklemden alındığında da akraba olmayan çiftlerde yansız kalır. Ağırlık 1/u_\ell, bilgi içeriği yüksek (çok alelli, rastlantısal benzerliği düşük) lokuslara daha çok pay verir.
Koddaki tercih
Düzeltme yalnız örneklem frekanslarında uygulanır; dış frekans verilmişse a_m düzeltmesiz hesaplanır (satır 355). Genotipli birey sayısı 4'ten az olan ya da u_\ell\le0 çıkan lokuslar yalnız Wang kestiriminden çıkarılır ve bildirilir (351, 357, 373); öteki dört kestirici o lokusu kullanmayı sürdürür.
62.4.6 Soy kütüğü kipi: Henderson'ın tablo yöntemi
Bireyler, ebeveynler yavrulardan önce gelecek biçimde sıralanır. i. bireyin babası s, anası d ise:
- Bilinmeyen ebeveynin katkısı sıfırdır; iki ebeveyni de bilinmeyen birey kurucudur (A_{ii}=1, öncekilerle akrabalığı 0).
- A_{sd}: ebeveynlerin birbirine akrabalığı; yarısı yavrunun kendileşme katsayısıdır (Wright, 1922).
- j<i: j daha önce yerleştirilmiş (daha yaşlı ya da aynı kuşak) bir bireydir; yavrunun herhangi bir bireyle akrabalığı ebeveynlerinin o bireyle akrabalıklarının ortalamasıdır.
Neden sıralama gerekli?
Özyineleme, bir bireyin satırı doldurulurken ebeveynlerinin satırlarının hazır olmasını ister. Şablon her turda "iki ebeveyni de yerleşmiş ya da bilinmeyen" bireyleri sıraya ekler (satır 182–187); hiçbir birey eklenemiyorsa ve yerleşmemiş birey kalmışsa soy kütüğünde döngü vardır ve çalıştırma durur. Çıktı tabloları bu kuşak sırasıyla yazılır, dosyadaki sırayla değil.
Koddaki tercih
Kimlikler mq_kimlik ile tek biçimli metne çevrilerek eşlenir (satır 166): sayısal kimlik, sütun tam sayı ya da ondalık türde olsa da kategorik ya da metin olarak gelse de aynı metindir (100000 her durumda "100000", "1e+05" ya da "100000.0" değil); ebeveyn olarak geçip kendi satırı olmayan bireyler kurucu sayılarak başa eklenir (175–178). Aynı birey bir yavrunun hem babası hem anası olabilir (kendileme): formül A_{ii}=1+\tfrac12A_{ss} olur ve doğru sonucu verir; şablon bu durumda yalnız uyarır. Matris yoğun kurulur; sınır eklenen kurucular dahil 3000 bireydir.
62.4.7 Genomik kip: VanRaden matrisleri
\mathbf M (n\times m) bireylerin SNP'lerdeki alel sayılarını (0, 1, 2) tutsun; p_j j. SNP'de sayılan alelin frekansı, \mathbf Z sütunlardan 2p_j çıkarılarak merkezlenmiş matris olsun.
- p_j=\bar M_{\cdot j}/2: gözlenen (eksik olmayan) genotiplerden (satır 229). Z_{ij}=M_{ij}-2p_j.
- 2\sum_jp_j(1-p_j): Hardy–Weinberg dengesinde genotiplerin toplam beklenen varyansı; bölme \mathbf G'yi \mathbf A ile aynı ölçeğe getirir (köşegen ortalaması 1'e yakın).
- Yöntem 2'de her SNP kendi varyansına bölünür; nadir aleller yöntem 1'e göre daha çok ağırlık taşır.
Neden merkezleme ve neden köşegen dışı ortalama negatif?
2p_j çıkarmak, akrabalığı "örneklemin ortalama bireyine göre" ölçer: frekanslar aynı örneklemden kestirildiğinde \mathbf Z'nin sütun toplamları sıfırdır, dolayısıyla \mathbf G'nin her satırının toplamı da sıfırdır. Köşegen pozitif olduğundan köşegen dışı ortalama zorunlu olarak negatiftir: yaklaşık -\bar G_{ii}/(n-1) (örnekte -0{,}9666/59=-0{,}01638). Negatif G_{ij} "ortalamadan daha az akraba" demektir, hata değildir. Aynı nedenle \mathbf G tekildir (en küçük özdeğeri sıfırdır); karma modelde kullanılmadan önce köşegene küçük bir değer eklenir ya da \mathbf A ile harmanlanır.
Koddaki tercih
Süzgeç sırası (satır 227–247): bütünüyle eksik SNP'ler; eksik oranı eksik_esik'i aşanlar; tek biçimliler; MAF'ı maf'ın altında kalanlar. Frekanslar süzgeçten önce, eksik değerler doldurulmadan hesaplanır. Kalan eksik genotipler 2p_j ile doldurulur (249); doldurulan hücre merkezlendikten sonra sıfırdır ve çarpımlara katkı yapmaz, ama payda bütün bireyler için aynı kalır.
62.5 Kod adım adım
| Satırlar | Ne yapar | Neden / dikkat |
|---|---|---|
| 1–113 | Üstbilgi: kimlik, açıklama, örnek veri ve ayar, on dört parametre. | Form buradan kurulur (Bölüm 1.2). |
| 114–125 | .m() ve ortak genotip ayrıştırıcısı. |
Bölüm 71 ile aynı kod. |
| 128–160 | Kip seçimi; sınır sabitleri; ids_al (kimlik denetimi), isi_haritasi, uzun_tablo yardımcıları. |
Isı haritası köşegeni boş bırakır (143); birey sayısı 60'ı aşarsa eksen adları yazılmaz (149). |
| 162–212 | Soy kütüğü: temizleme, denetimler, kurucu ekleme, sıralama, tablo yöntemi, üç tablo ve ısı haritası. | Konsol satırı ortalama F ve kendileşmiş birey sayısını yazar (203–205). |
| 213–269 | Genomik: sütunların sayıya çevrilmesi, süzgeçler, doldurma, \mathbf G_1 ya da \mathbf G_2, üç tablo ve ısı haritası. | Konsol satırı SNP sayısını, paydayı ve köşegen ortalamalarını yazar. |
| 270–300 | Genotip: lokuslar, kimlikler, dış frekans metninin ayrıştırılması. | Lokus blokları ;, lokus adı :, alel–frekans çiftleri , ve = ile ayrılır. |
| 301–365 | Lokus döngüsü: göstergeler ve beş kestiricinin pay/payda birikimleri. | Eksik genotipli bireyler W maskesiyle sıfırlanır (323). |
| 366–382 | Oranlar, yön ortalamaları, Wang'ın \hat\phi ve \hat\Delta'sı. | Sıfıra bölme sonucu boş (NA) yapılır (368, 382). |
| 384–423 | Çift tablosu, özet tablo, grup içi ve gruplar arası ortalamalar. | Çift tablosu 5000 satırla sınırlıdır (Bölüm 1.4); sıra üst üçgenin sütun sırasıdır. 5000'den çok çiftte en yüksek Queller–Goodnight kestirimli 200 çift ayrı tabloda verilir (417–423). |
| 424–434 | Queller–Goodnight ve Lynch–Ritland histogramları; Lynch–Ritland ısı haritası. | Isı haritasının renk aralığı [-0{,}5;\ 1]'dir (433). |
Çift tablosunun sırası önemlidir: çiftler (1{,}2),(1{,}3),(2{,}3),(1{,}4),\dots biçiminde, ikinci bireyin satır numarasına göre dizilir. 200 bireyde 19 900 çiftin ilk 5000'i yaklaşık olarak ilk 100 birey arasındaki çiftlerdir; sonraki bireylerin çiftleri bu tabloda yer almaz; şablon bunu bir notla bildirir ve en yüksek Queller–Goodnight kestirimli 200 çifti ayrı bir tabloda ayrıca yazar (aile içi çiftler gibi yakın akrabalar böylece görünür kalır). Özet tablo ve grup ortalamaları ise bütün çiftlerden hesaplanır.
62.6 Elle hesap: örnek veride bağımsız yeniden hesap
Ara değerler dogrulama/akrabalik/elle_hesap.py ve adim_tablosu.py ile hesaplanmıştır: her çift ve her lokus için formüller döngüyle uygulanır; şablonun matris işlemleri kullanılmaz. R tarafında (r_dogrulama.R) Wang, Lynch–Ritland ve Ritland kestirimleri Demerelate paketiyle, soy kütüğü kinship2 ile, genomik matris AGHmatrix ile yeniden kurulmuştur.
Adım 1 — Bir çiftin lokus katkıları. İlk aile bir ebeveyn–yavru çiftidir (x = PO0000001p, y = PO0000001o). x başvuru bireyi iken:
| Lokus | x | y | p_a; p_b | QG pay / payda | LR pay / ağırlık | S_{xy} | S_0 |
|---|---|---|---|---|---|---|---|
| L01 | 160/213 | 213/201 | 0,0075; 0,0350 | 0,4575 / 0,9575 | 12,2857 / 78,9524 | 0,50 | 0,2542 |
| L02 | 182/150 | 182/182 | 0,2050; 0,0850 | 0,7100 / 0,7100 | 2,8780 / 6,3214 | 0,75 | 0,1918 |
| L03 | 131/131 | 131/135 | 0,4500; 0,4500 | 0,1000 / 1,1000 | 0,2222 / 2,4444 | 0,75 | 0,4512 |
| L04 | 207/175 | 207/227 | 0,2600; 0,1375 | 0,1025 / 0,6025 | −0,0769 / 3,5594 | 0,50 | 0,2298 |
| L05 | 134/134 | 134/134 | 0,4275; 0,4275 | 1,1450 / 1,1450 | 2,6784 / 2,6784 | 1,00 | 0,5516 |
| L06 | 304/279 | 304/308 | 0,0650; 0,0850 | 0,3500 / 0,8500 | 5,6923 / 11,5747 | 0,50 | 0,1113 |
| L07 | 197/229 | 197/225 | 0,0425; 0,0275 | 0,4300 / 0,9300 | 9,7647 / 27,9465 | 0,50 | 0,0974 |
| L08 | 194/198 | 194/144 | 0,2350; 0,1450 | 0,1200 / 0,6200 | 0,1277 / 3,5759 | 0,50 | 0,2016 |
| L09 | 182/174 | 182/178 | 0,1975; 0,0375 | 0,2650 / 0,7650 | 0,5316 / 13,8650 | 0,50 | 0,3560 |
| L10 | 154/152 | 152/152 | 0,0825; 0,6725 | 0,2450 / 0,2450 | −0,5130 / 4,8041 | 0,75 | 0,6576 |
| Toplam | 3,9250 / 7,9250 | 33,5907 / 155,7222 |
L01 satırı okunursa: iki birey 213 alelini paylaşır (S_{bc}=1, ötekiler 0). Queller–Goodnight payı \tfrac12\cdot1-0{,}0075-0{,}0350=0{,}4575, paydası 1+0-0{,}0425=0{,}9575'tir. Lynch–Ritland payı (0{,}0075\cdot1+0-4\cdot0{,}0075\cdot0{,}0350)/(2\cdot0{,}0075\cdot0{,}0350)=12{,}2857'dir; ağırlığın (78,95) büyüklüğü iki alelin de nadir olmasından gelir.
Adım 2 — Çiftin kestirimleri.
Ritland payı Lynch–Ritland payıyla aynıdır (33,5907); payda \sum(k_\ell-1)=206: \hat r^{\,R}=33{,}5907/206=0{,}163062. Lynch–Li: \sum(S-S_0)=3{,}147653, \sum(1-S_0)=6{,}897653, \hat r^{\,LL}=0{,}456337. Wang: sınıflar lokus sırasıyla 3, 2, 2, 3, 1, 3, 3, 3, 3, 2; ağırlıklı oranlar P_1=0{,}0375, P_2=0{,}1892, P_3=0{,}7733; \hat\phi=1{,}0926, \hat\Delta=-0{,}0925, \hat r^{\,W}=0{,}453773.
Gerçek değeri 0,5 olan bu çiftte Lynch–Ritland (0,25) ve Ritland (0,16) belirgin biçimde düşüktür: en büyük ağırlığı taşıyan L01'de çift tek alel paylaşır ve lokus kestirimi yalnız 0,16'dır.
Adım 3 — Bütün çiftler. 19 900 çiftin ortalaması Queller–Goodnight ve Lynch–Ritland için -0{,}005025 (=-1/199), Ritland için -0{,}004983, Lynch–Li için -0{,}007030, Wang için 0{,}005035'tir. Standart sapmalar sırasıyla 0,1398; 0,0712; 0,0628; 0,1431; 0,1205'tir.
Adım 4 — İlişki sınıflarına göre ortalamalar (her sınıfta 25 çift; beklenen değerler 0,5; 0,5; 0,25; 0):
| Sınıf | Queller–Goodnight | Lynch–Ritland | Ritland | Lynch–Li | Wang |
|---|---|---|---|---|---|
| Ebeveyn–yavru | 0,5184 | 0,4382 | 0,3727 | 0,5129 | 0,5090 |
| Tam kardeş | 0,5341 | 0,5082 | 0,4526 | 0,5201 | 0,5123 |
| Yarım kardeş | 0,2345 | 0,2195 | 0,2321 | 0,2360 | 0,2329 |
| Akraba değil | −0,0202 | −0,0116 | −0,0120 | −0,0119 | −0,0280 |
| Aile içi (100 çift) | 0,3167 | 0,2886 | 0,2613 | 0,3143 | 0,3065 |
| Aileler arası (19 800 çift) | −0,0066 | −0,0065 | −0,0063 | −0,0087 | 0,0035 |
Tek tek çiftlerin saçılımı büyüktür: ebeveyn–yavru sınıfında çiftler arası standart sapma Queller–Goodnight için 0,071, Lynch–Ritland için 0,168; yarım kardeşlerde 0,152 ve 0,146.
Adım 5 — Mrode soy kütüğü. Sıra 1, 2, 3, 4, 5, 6. A_{33}=1+\tfrac12A_{12}=1; A_{34}=\tfrac12(A_{31}+0)=0{,}25; A_{55}=1+\tfrac12A_{43}=1{,}125; A_{56}=\tfrac12(A_{55}+A_{52})=\tfrac12(1{,}125+0{,}25)=0{,}6875; A_{66}=1+\tfrac12A_{52}=1{,}125. Buradan F_5=F_6=0{,}125, A_{36}=\tfrac12(A_{35}+A_{32})=\tfrac12(0{,}625+0{,}5)=0{,}5625. Değerler Mrode'nin (2014) tablosuyla aynıdır.
Adım 6 — Genomik matris. 300 SNP'de 2\sum p_j(1-p_j)=95{,}6425. İlk birey için G_{11}=\sum_jZ_{1j}^2/95{,}6425=0{,}911885, yani F^{\,G}=-0{,}088115; G_{12}=-0{,}032430. Köşegen ortalaması 0,966638, köşegen dışı ortalama -0{,}016384; genomik kendileşme -0{,}298 ile 0{,}279 arasındadır. Yöntem 2 ile G_{11}=0{,}947879'dur.
62.6.1 Doğrulama: MerQuR+, Python ve R
MerQuR+ sütunu şablonun tablolarından tam hassasiyetle okunmuştur. Demerelate çift başına yavaş olduğundan R karşılaştırması ilk 12 bireyin 66 çiftinde yapılmış (frekanslar yine 200 bireyden), en büyük farkı veren çift tabloya alınmıştır.
| Büyüklük | MerQuR+ | Python (bağımsız) | R (bağımsız) | En büyük fark | |
|---|---|---|---|---|---|
| Queller–Goodnight, çift 1–2 | 0,45351642 | 0,45351642 | 0,45351642 | 3,3e−16 | ✓ |
| Lynch–Ritland, çift 1–2 | 0,25262974 | 0,25262974 | 0,25262974 | 5,6e−17 | ✓ |
| Ritland, çift 1–2 | 0,16306181 | 0,16306181 | 0,16306181 | 2,5e−16 | ✓ |
| Lynch–Li, çift 1–2 | 0,45633683 | 0,45633683 | 0,45633683 | 0 | ✓ |
| Wang, çift 1–2 | 0,45377254 | 0,45377254 | 0,45377254 | 4,4e−16 | ✓ |
| Queller–Goodnight, çift 3–4 | 0,60422696 | 0,60422696 | 0,60422696 | 2,2e−16 | ✓ |
| Lynch–Ritland, çift 3–4 | 0,66945928 | 0,66945928 | 0,66945928 | 3,3e−16 | ✓ |
| Ritland, çift 3–4 | 0,54841578 | 0,54841578 | 0,54841578 | 4,4e−16 | ✓ |
| Lynch–Li, çift 3–4 | 0,60131368 | 0,60131368 | 0,60131368 | 1,0e−15 | ✓ |
| Wang, çift 3–4 | 0,63211584 | 0,63211584 | 0,63211584 | 4,4e−16 | ✓ |
| Queller–Goodnight: bütün çiftlerin ortalaması | −0,00502513 | −0,00502513 | −0,00502513 | 0 | ✓ |
| Queller–Goodnight: standart sapma | 0,13984509 | 0,13984509 | 0,13984509 | 3,1e−16 | ✓ |
| Lynch–Ritland: bütün çiftlerin ortalaması | −0,00502513 | −0,00502513 | — | 5,2e−18 | ✓ |
| Lynch–Ritland: standart sapma | 0,07119932 | 0,07119932 | — | 0 | ✓ |
| Ritland: bütün çiftlerin ortalaması | −0,00498329 | −0,00498329 | — | 8,4e−17 | ✓ |
| Ritland: standart sapma | 0,06283556 | 0,06283556 | — | 1,4e−17 | ✓ |
| Lynch–Li: bütün çiftlerin ortalaması | −0,00702992 | −0,00702992 | −0,00702992 | 1,0e−17 | ✓ |
| Lynch–Li: standart sapma | 0,14312159 | 0,14312159 | 0,14312159 | 3,6e−16 | ✓ |
| Wang: bütün çiftlerin ortalaması | 0,00503505 | 0,00503505 | — | 5,7e−17 | ✓ |
| Wang: standart sapma | 0,12051422 | 0,12051422 | — | 3,1e−16 | ✓ |
| Queller–Goodnight: aile içi ortalama | 0,31668955 | 0,31668955 | 0,31668955 | 3,9e−16 | ✓ |
| Queller–Goodnight: aileler arası ortalama | −0,00664995 | −0,00664995 | −0,00664995 | 6,2e−17 | ✓ |
| Lynch–Ritland: aile içi ortalama | 0,28859168 | 0,28859168 | — | 5,6e−17 | ✓ |
| Lynch–Ritland: aileler arası ortalama | −0,00650804 | −0,00650804 | — | 1,7e−17 | ✓ |
| Ritland: aile içi ortalama | 0,26132478 | 0,26132478 | — | 2,2e−16 | ✓ |
| Ritland: aileler arası ortalama | −0,00632828 | −0,00632828 | — | 6,0e−17 | ✓ |
| Lynch–Li: aile içi ortalama | 0,31425953 | 0,31425953 | 0,31425953 | 1,7e−16 | ✓ |
| Lynch–Li: aileler arası ortalama | −0,0086526 | −0,0086526 | −0,0086526 | 4,0e−17 | ✓ |
| Wang: aile içi ortalama | 0,3065487 | 0,3065487 | — | 2,2e−16 | ✓ |
| Wang: aileler arası ortalama | 0,00351225 | 0,00351225 | — | 1,9e−17 | ✓ |
| Lynch–Ritland: ilk 12 bireyin 66 çiftinde en büyük farklı çift | 0,48260033 | 0,48260033 | 0,48260033 | 4,4e−16 | ✓ |
| Ritland: ilk 12 bireyin 66 çiftinde en büyük farklı çift | 0,54841578 | 0,54841578 | 0,54841578 | 4,4e−16 | ✓ |
| Wang: ilk 12 bireyin 66 çiftinde en büyük farklı çift | 0,52293871 | 0,52293871 | 0,52293871 | 1,0e−15 | ✓ |
| Dış frekans, 2 lokus: Queller–Goodnight, çift 1–2 | 0,71729644 | 0,71729644 | — | 4,4e−16 | ✓ |
| Dış frekans, 2 lokus: Lynch–Ritland, çift 1–2 | 0,42053063 | 0,42053063 | — | 0 | ✓ |
| Dış frekans, 2 lokus: Ritland, çift 1–2 | 0,11756523 | 0,11756523 | — | 1,9e−16 | ✓ |
| Dış frekans, 2 lokus: Lynch–Li, çift 1–2 | 0,68995167 | 0,68995167 | — | 0 | ✓ |
| Dış frekans, 2 lokus: Wang, çift 1–2 | 0,6742362 | 0,6742362 | — | 2,2e−16 | ✓ |
| Eksik genotipli veri: Queller–Goodnight, çift 1–2 | 0,49344899 | 0,49344899 | — | 0 | ✓ |
| Eksik genotipli veri: Lynch–Ritland, çift 1–2 | 0,2678461 | 0,2678461 | — | 1,7e−16 | ✓ |
| Eksik genotipli veri: Ritland, çift 1–2 | 0,1976017 | 0,1976017 | — | 3,6e−16 | ✓ |
| Eksik genotipli veri: Lynch–Li, çift 1–2 | 0,47336695 | 0,47336695 | — | 3,3e−16 | ✓ |
| Eksik genotipli veri: Wang, çift 1–2 | 0,46598483 | 0,46598483 | — | 1,7e−16 | ✓ |
| Soy kütüğü: F_5 | 0,125 | 0,125 | 0,125 | 0 | ✓ |
| Soy kütüğü: F_6 | 0,125 | 0,125 | 0,125 | 0 | ✓ |
| Soy kütüğü: A_{13} | 0,5 | 0,5 | 0,5 | 0 | ✓ |
| Soy kütüğü: A_{36} | 0,5625 | 0,5625 | 0,5625 | 0 | ✓ |
| Soy kütüğü: A_{56} | 0,6875 | 0,6875 | 0,6875 | 0 | ✓ |
| Soy kütüğü: A_{45} | 0,625 | 0,625 | 0,625 | 0 | ✓ |
| Soy kütüğü: A_{26} | 0,625 | 0,625 | 0,625 | 0 | ✓ |
| Soy kütüğü (8 birey): A_{78} | 0,25 | 0,25 | 0,25 | 0 | ✓ |
| Soy kütüğü (8 birey): A_{47} | 0,5 | 0,5 | 0,5 | 0 | ✓ |
| Soy kütüğü (8 birey): A_{56} | 0,25 | 0,25 | 0,25 | 0 | ✓ |
| Kendilemeli soy kütüğü: F(Y2) | 0,5 | 0,5 | — | 0 | ✓ |
| Kendilemeli soy kütüğü: F(S1) | 0,75 | 0,75 | — | 0 | ✓ |
| Kendilemeli soy kütüğü: F(S2) | 0,875 | 0,875 | — | 0 | ✓ |
| VanRaden 1: G_{11} | 0,91188541 | 0,91188541 | 0,91188541 | 0 | ✓ |
| VanRaden 1: G_{12} | −0,03242979 | −0,03242979 | −0,03242979 | 2,8e−17 | ✓ |
| VanRaden 1: G_{23} | −0,14360771 | −0,14360771 | −0,14360771 | 4,4e−16 | ✓ |
| VanRaden 1: ortalama köşegen | 0,96663791 | 0,96663791 | 0,96663791 | 3,3e−16 | ✓ |
| VanRaden 1: ortalama köşegen dışı | −0,01638369 | −0,01638369 | −0,01638369 | 4,2e−17 | ✓ |
| VanRaden 2: G_{11} | 0,94787905 | 0,94787905 | 0,94787905 | 2,2e−16 | ✓ |
| VanRaden 2: G_{12} | −0,03170173 | −0,03170173 | −0,03170173 | 2,1e−17 | ✓ |
| VanRaden 2: G_{23} | −0,1141313 | −0,1141313 | −0,1141313 | 0 | ✓ |
| VanRaden 2: ortalama köşegen | 0,96530529 | 0,96530529 | 0,96530529 | 5,6e−16 | ✓ |
| VanRaden 2: ortalama köşegen dışı | −0,01636111 | −0,01636111 | −0,01636111 | 1,4e−17 | ✓ |
| VanRaden 1, MAF ≥ 0,10: G_{11} | 0,87788315 | 0,87788315 | 0,87788315 | 1,0e−15 | ✓ |
| VanRaden 1, MAF ≥ 0,10: G_{12} | −0,03867619 | −0,03867619 | −0,03867619 | 0 | ✓ |
| VanRaden 1, MAF ≥ 0,10: G_{23} | −0,15478281 | −0,15478281 | −0,15478281 | 0 | ✓ |
| VanRaden 1, MAF ≥ 0,10: ortalama köşegen | 0,96772431 | 0,96772431 | 0,96772431 | 1,2e−15 | ✓ |
| VanRaden 1, MAF ≥ 0,10: ortalama köşegen dışı | −0,01640211 | −0,01640211 | −0,01640211 | 6,9e−18 | ✓ |
| VanRaden 1, eksik değerli: G_{11} | 0,90963885 | 0,90963885 | 0,90963885 | 2,2e−16 | ✓ |
| VanRaden 1, eksik değerli: G_{12} | −0,02450111 | −0,02450111 | −0,02450111 | 4,2e−17 | ✓ |
| VanRaden 1, eksik değerli: G_{23} | −0,13307595 | −0,13307595 | −0,13307595 | 3,1e−16 | ✓ |
| VanRaden 1, eksik değerli: ortalama köşegen | 0,9631073 | 0,9631073 | 0,9631073 | 0 | ✓ |
| VanRaden 1, eksik değerli: ortalama köşegen dışı | −0,01632385 | −0,01632385 | −0,01632385 | 3,8e−17 | ✓ |
Ölçütü karşılayan: 76/76. Python: her çift ve lokus için yayımlanmış formüllerin döngüyle uygulanması; soy kütüğünde ortak ata katsayısının özyinelemeli tanımı. R: Wang, Lynch–Ritland ve Ritland için Demerelate::Emp.calc, Queller–Goodnight ve Lynch–Li için açık formül, soy kütüğünde kinship2::kinship, genomik kipte AGHmatrix::Gmatrix.
62.7 Çıktıyı okuma
Genotip kipi (örnek ayar) konsol metni:
İkili akrabalık: 200 birey, 19900 çift, 10 lokus kullanıldı (alel frekansları: bütün örneklemden kestirildi).
Not: alel frekansları örneklemden kestirildi. Çok alelli lokuslarda ve küçük örneklemde Lynch–Ritland ve Ritland
tahmincileri yakın akrabalarda (ebeveyn–yavru, tam kardeş) aşağı yanlı olabilir; güvenilir bir referans popülasyon
varsa frekanslarını 'dış alel frekansları' alanına girin.
Not: 19900 çiftin tabloda gösterilen ilk 5000'i, dosyadaki ilk 100 birey arasındaki çiftlerdir; sonraki bireylerin çiftleri bu tabloda yoktur. En yüksek Queller–Goodnight kestirimli 200 çift ayrı bir tabloda verilir; özet ve grup ortalamaları bütün çiftlerden hesaplanır.
Tahmincilerin özeti (bütün çiftler)
          tahminci   ortalama        ss   en_kucuk  en_buyuk
 Queller_Goodnight  -0.005025  0.139845  -0.402276  0.718052
     Lynch_Ritland  -0.005025  0.071199  -0.162700  0.787458
           Ritland  -0.004983  0.062836  -0.097087  1.112566
          Lynch_Li  -0.007030  0.143122  -0.449768  0.673802
              Wang   0.005035  0.120514  -0.246178  0.764707

Grup içi ve gruplar arası çiftlerin ortalama akrabalığı
          tahminci  grup_ici  gruplar_arasi
 Queller_Goodnight  0.316690      -0.006650
     Lynch_Ritland  0.288592      -0.006508
           Ritland  0.261325      -0.006328
          Lynch_Li  0.314260      -0.008653
              Wang  0.306549       0.003512

İkili akrabalık kestirimleri
     birey1      birey2  n_lokus  Queller_Goodnight  Lynch_Ritland   Ritland  Lynch_Li      Wang
 PO0000001p  PO0000001o       10           0.453516       0.252630  0.163062  0.456337  0.453773
 PO0000001p  PO0000002p       10           0.130781       0.050026  0.035744  0.130139  0.119122
 …
| Öğe | Ne yazar | Nasıl yorumlanır |
|---|---|---|
| Özet tablo | Beş kestiricinin bütün çiftlerdeki ortalaması, standart sapması, uç değerleri | Ortalama sıfıra yakın olmalıdır; standart sapma kestiricinin tek çift için kabalığını gösterir. 1'i aşan en büyük değer Ritland'da olağandır. |
| Grup (aile) içi ortalama | Her grup için çift sayısı ve beş ortalama | Grubun ortalama akrabalığı; tek çiftli grupta tek bir kestirimdir. |
| Grup içi / gruplar arası | İki ortalama | Aile yapısının yakalanıp yakalanmadığının özeti. Örnekte 0,29–0,32 ile 0 arası; beklenen 0,3125 ile 0. |
| İkili kestirimler | Çift, ortak lokus sayısı, beş kestirim | Tek çift için karar verilmez; n_lokus küçükse kestirim daha da kabadır. |
| Şekil 1 | Queller–Goodnight ve Lynch–Ritland histogramları | Büyük kütle sıfır çevresinde; yakın akrabalar sağ kuyrukta. |
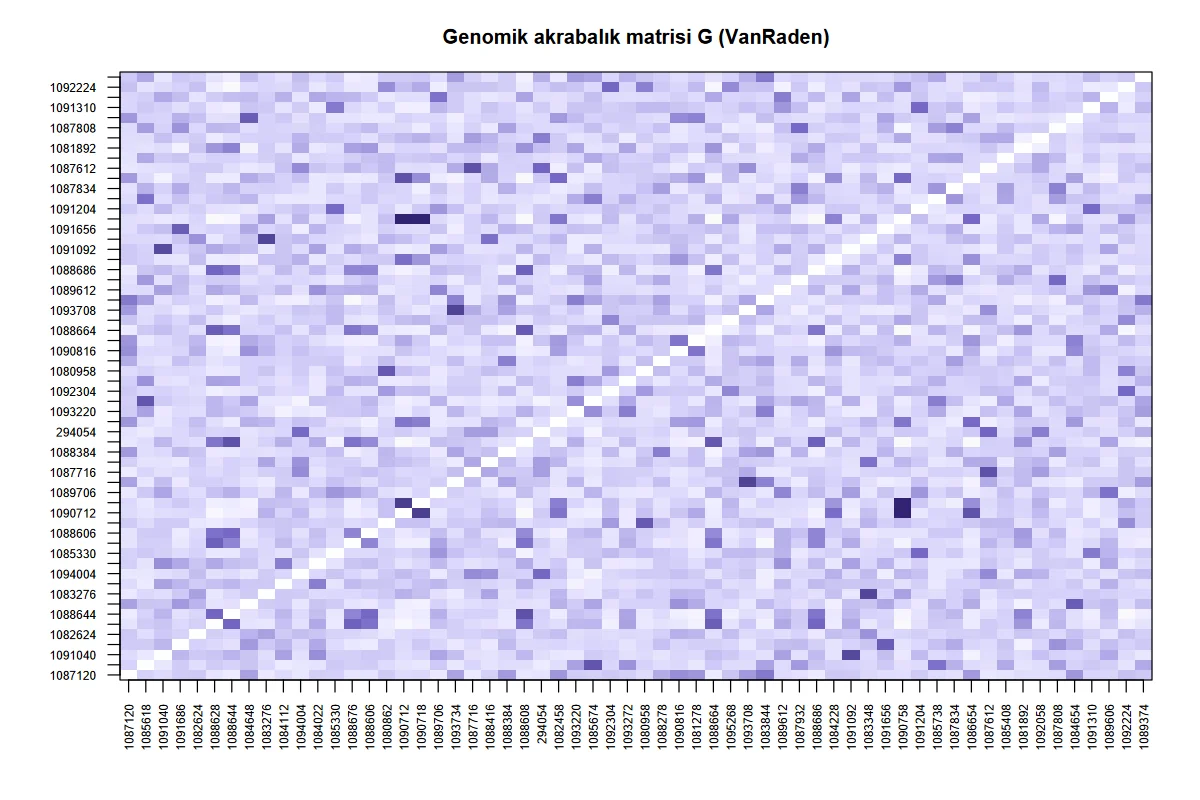
| Şekil 2 | Lynch–Ritland ısı haritası (köşegen 1) | Koyu hücreler akraba çiftler; birey sırası verinin satır sırasıdır. |
Şekil 62.1. Şablonun çizdiği ikili akrabalık kestirimlerinin dağılımı (örnek veri, 19 900 çift). Lynch–Ritland akraba olmayan çiftlerde daha dar, yakın akrabalarda daha dağınıktır.
Soy kütüğü kipi (Mrode):
Soy kütüğü: 6 birey (0 kurucu eklendi); Henderson tablo yöntemi. Ortalama kendileşme F = 0,04167; kendileşmiş birey sayısı 2.

Kendileşme katsayıları (F = A_ii − 1)
 birey  baba   ana      F   A_ii
     1    NA    NA  0.000  1.000
     2    NA    NA  0.000  1.000
     3     1     2  0.000  1.000
     4     1    NA  0.000  1.000
     5     4     3  0.125  1.125
     6     5     2  0.125  1.125
İkinci tablo her çift için A_{ij} ve ortak ata katsayısını (A_{ij}/2), üçüncü tablo birey sayısı sınırı aşmıyorsa \mathbf A'nın tamamını verir. Tam matris tablosunda satırlar sütunlarla aynı sıradadır (kuşak sırası); satır adı sütunu yoktur.
Genomik kip (yöntem 1):
Genomik akrabalık (VanRaden 2008, yöntem 1): 60 birey, 300 SNP; 2Σp(1−p) = 95,6425. Ortalama köşegen 0,96664, ortalama köşegen dışı -0,01638.
| Öğe | Ne yazar | Nasıl yorumlanır |
|---|---|---|
| Genomik kendileşme | Birey başına G_{ii} ve F=G_{ii}-1 | Negatif F, bireyin örneklem ortalamasından daha heterozigot olduğunu söyler. |
| İkili genomik akrabalık | Her çift için G_{ij} | 0,5 çevresi birinci derece akrabalık; örnekte en büyük değer 0,694'tür. |
| Tam matris | \mathbf G | Karma modele verilecek matris; tekildir (62.4.7). |
Şekil 62.2. Genomik akrabalık matrisinin ısı haritası (60 çam, 300 SNP; köşegen boş). Koyu bloklar aile gruplarıdır.
Rapor cümleleri:
On mikrosatellit lokusundan Queller–Goodnight akrabalık katsayısı kestirildi (alel frekansları örneklemden). Aynı aileden 100 çiftin ortalaması 0,317, farklı ailelerden çiftlerin ortalaması −0,007 idi; ebeveyn–yavru, tam kardeş, yarım kardeş ve akraba olmayan çiftlerde ortalamalar sırasıyla 0,52; 0,53; 0,23 ve −0,02 bulundu.
Soy kütüğünden Henderson'ın tablo yöntemiyle hesaplanan eklemeli akrabalık matrisinde 5 ve 6 numaralı bireylerin kendileşme katsayısı 0,125, aralarındaki akrabalık 0,6875 idi.
62.8 Sık hatalar ve tuzaklar
- Tek bir çiftin kestirimine göre ilişki atamak. On lokusla ebeveyn–yavru çiftlerinin Queller–Goodnight kestirimi 0,5 çevresinde 0,07 standart sapmayla, yarım kardeşlerinki 0,15 standart sapmayla dağılır; farklı ailelerden 19 800 çiftin 697'sinde kestirim 0,25'i, 44'ünde 0,4'ü aşar (en büyüğü 0,56). Kestirimler grup ortalamaları ve dağılım olarak yorumlanır; çift bazında karar için çok daha fazla belirteç ya da
ld_budama_ibdgerekir. - Lynch–Ritland ve Ritland'ı yakın akrabalarda kullanmak. Örneklem frekanslarıyla ebeveyn–yavru ortalaması 0,44 ve 0,37'dir. Yakın akrabalık soruluyorsa Queller–Goodnight, Lynch–Li ya da Wang okunur; Lynch–Ritland akraba olmayanları ayırmada daha keskindir.
- Akrabalarla dolu bir örneklemden frekans kestirmek. Örneklemin çoğu birkaç aileden oluşuyorsa frekanslar o ailelerin alellerine kayar ve bütün kestirimler aşağı çekilir. Bağımsız bir başvuru popülasyonu varsa frekansları dış alel frekansları alanına yazılır.
- Dış frekanslarda eksik alel ya da ondalık virgül. Örneklemde görülen her alelin frekansı verilmelidir; biri eksikse çalıştırma durur. Frekanslar
0.25biçiminde yazılır;0,25yazılırsa virgül ayırıcı sayılır ve "alel=frekans biçiminde olmalı" iletisi çıkar. - Çok az lokusla dış frekans kullanmak. İki lokusla Ritland kestirimi 7,97'ye, Queller–Goodnight −1,68'e ulaşmıştır; nadir alel paylaşan tek bir lokus sonucu belirler.
- Çift tablosunu bütün çiftler sanmak. Tablo en çok 5000 satır tutar ve çiftler birey sırasıyla dizilir; 200 bireyde ilk 100 bireyin çiftleri görünür, sonraki bireylerin çiftleri yalnız en yüksek Queller–Goodnight kestirimli 200 çiftin tablosunda (varsa) yer alır. Bütün çiftler gerekiyorsa veri parçalara bölünür ya da birey sayısı 100'ün altında tutulur (100\cdot99/2=4950).
- Soy kütüğünde "kurucu eklendi" notundaki sayıyı denetlememek. Kimlikler sütun türünden bağımsız aynı metne çevrilir; bu yüzden 100000 gibi yuvarlak sayılar ya da kategorik türdeki kimlikler eşleşir. Yine de ebeveyn kimlikleri birey kimliklerinden farklı yazılmışsa (ör.
A-12ileA12) ebeveynler bulunamaz ve ayrı kurucu sayılır; kendileşme sıfır çıkar. Eklenen kurucu sayısı satır sayısının yarısına varınca şablon uyarı yazar; not her zaman denetlenir. 0kimlikli birey ya da0adlı alel.0kimliği "bilinmiyor" sayılır. Alel adı0ise0/0eksik genotiptir;0/1gibi yalnız bir aleli0olan genotip çalıştırmayı durdurur (alel yeniden adlandırılır).-9de eksik koddur.- Soy kütüğü tablolarında dosya sırasını beklemek. Tablolar kuşak sırasıyla yazılır; eklenen kurucular en başa gelir.
- Negatif G_{ij} ya da negatif genomik F'yi hata sanmak. Frekanslar aynı örneklemden alındığında ortalama akrabalık sıfıra sabitlenir; negatif değerler ortalamanın altını gösterir.
- \mathbf G'yi doğrudan tersine çevirmek. Matris tekildir; kullanılmadan önce düzenlenir.
- Genotip kipini yoğun SNP verisiyle çalıştırmak. İki alelli lokuslarda Queller–Goodnight'ın heterozigot başvuru bireyi için paydası sıfırdır ve kestirim yalnız homozigot lokuslara dayanır; 30 SNP'lik denemede kestirimler −1,11 ile 0,84 arasına yayılmıştır. Yoğun SNP için genomik kip ya da
ld_budama_ibdkullanılır.
62.9 Uzman soruları
S1. Beş kestiriciden hangisi "doğru"?
Hiçbiri her durumda en iyi değildir. Queller–Goodnight ve Lynch–Li her akrabalık düzeyinde yaklaşık yansızdır, ama varyansları yüksektir. Lynch–Ritland ve Ritland akraba olmayan çiftlerde en küçük varyansı verir (örnekte standart sapma 0,07 ve 0,06; ötekilerde 0,12–0,14), yakın akrabalarda ise aşağı yanlıdır. Wang kestiricisi örneklem frekanslarındaki yanlılığı düzeltir; örnekte dört sınıfın hepsinde beklenen değere en yakın ortalamaları verenlerden biridir. Uygulamada kestirici, ilişkisi bilinen çiftlerle ya da kendi alel frekanslarından benzetilen çiftlerle seçilir; örnek veri bu amaçla kurulmuştur.
S2. Bütün çiftlerin ortalaması neden tam -1/(n-1)?
Frekanslar örneklemden kestirildiğinde, bir başvuru bireyinin örneklemdeki bütün bireylerle (kendisi dahil) kestirim paylarının toplamı sıfırdır: \sum_y\big[\tfrac12(\cdot)-p_a-p_b\big]=0, çünkü y'ler üzerinden alel paylaşımının ortalaması frekansın kendisidir. Bireyin kendisiyle payı paydaya eşittir; geri kalan n-1 bireyin pay toplamı eksi paydadır. Ortalama bu yüzden -1/(n-1) olur. Sonuç, "örneklem kendi başvuru popülasyonudur" varsayımının cebirsel karşılığıdır; gerçek ortalama akrabalık sıfırdan büyükse bütün kestirimler o kadar aşağı kayar.
S3. Ritland ile Lynch–Ritland'ın payı aynıysa neden iki ayrı kestirici var?
Pay aynıdır; fark normalleştirmededir. Ritland bütün çiftleri aynı sabite, \sum(k_\ell-1)'e böler; bu, lokus kestirimlerinin "akraba olmayan çiftlerdeki" varyansına göre ağırlıklandırılmış ortalamasıdır ve çiftin genotipine bakmaz. Lynch–Ritland her çift için o çiftin başvuru genotipine özgü ağırlıkların toplamına böler. Nadir alel taşıyan bir bireyde Lynch–Ritland'ın paydası büyür ve kestirim Ritland'a göre farklı ölçeklenir. İlk çiftte paylar 33,59, paydalar 155,72 / 116,01 (iki yön) ve 206'dır.
S4. Wang'da \hat\phi=1{,}09 ve \hat\Delta=-0{,}09 çıktı; olasılıklar nasıl 1'i aşar ya da negatif olur?
Moment kestiricileri parametre uzayıyla sınırlı değildir. \hat\phi ve \hat\Delta, gözlenen sınıf oranlarını beklenen oranlara eşitleyen doğrusal denklemlerin çözümüdür; on lokusta oranlar gürültülüdür ve çözüm [0{,}1] dışına düşebilir. Akrabalık \hat r=\hat\phi/2+\hat\Delta=0{,}454 ise makuldür: iki bileşenin hataları birbirini kısmen götürür. Bileşenler tek tek yorumlanmaz; şablon yalnız \hat r'yi tabloya yazar.
S5. \mathbf A ile \mathbf G aynı bireyler için neden farklı?
\mathbf A beklenen paylaşımı verir: tam kardeşler için her zaman 0,5. \mathbf G gerçekleşmiş paylaşımı kestirir: Mendel örneklemesi nedeniyle tam kardeşlerin gerçek paylaşımı 0,5 çevresinde dağılır. Ayrıca \mathbf A kurucuları akrabasız sayar, \mathbf G ise akrabalığı örneklem ortalamasına göre ölçer. İkisinin birleştirilmesi (tek adımlı yöntemlerdeki \mathbf H matrisi) bu şablonun kapsamında değildir.
S6. VanRaden yöntem 1 ile yöntem 2 arasında nasıl seçilir?
Yöntem 1 bütün SNP'leri aynı ölçekte toplar; yüksek heterozigotluklu SNP'ler baskındır ve matris nadir alellerdeki örnekleme gürültüsüne dayanıklıdır. Yöntem 2 her SNP'yi kendi varyansına böler; nadir alellerin paylaşımı daha çok bilgi sayılır, ama MAF küçükken payda sıfıra yaklaşır ve gürültü büyür. Örnekte iki yöntemin köşegen ortalaması 0,9666 ve 0,9653'tür, tek tek hücreler farklıdır (G_{11}: 0,912 ve 0,948). Yöntem 2 kullanılacaksa MAF süzgeci açılır.
S7. Genomik kipte eksik genotipi ortalamayla doldurmak neyi değiştirir?
Doldurulan hücre merkezlendikten sonra sıfırdır; o SNP bireyin çarpımlarına katkı yapmaz, ama payda bütün SNP'leri sayar. Eksik genotipi çok olan bireyin köşegeni ve bütün akrabalıkları sıfıra doğru çekilir. Türetilmiş veride (300 SNP'nin 40'ında eksik; eksik oranı 0,10'u aşan 5 SNP atıldıktan sonra 105 hücre dolduruldu) köşegen ortalaması 0,9666'dan 0,9631'e inmiştir. Eksik oranı yüksek bireyler ve SNP'ler önceden ayıklanır.
S8. Soy kütüğünde satırı olmayan ebeveynler nasıl ele alınır?
Kurucu sayılır: ebeveynleri bilinmeyen, öteki kuruculara akrabasız bireyler olarak matrisin başına eklenir ve sayıları konsola yazılır. Bu, eksik soy kütüğünde olağan varsayımdır, ama kendileşmeyi ve akrabalığı aşağı yanlı kestirir: gerçekte akraba olan iki "kurucu" akrabasız sayılır. Not beklenmedik biçimde büyük bir sayı gösteriyorsa neden çoğu kez kimlik yazımındaki tutarsızlıktır (62.8).
S9. Kendilemede F=0{,}5 nasıl çıkıyor?
Baba ve ana aynı birey s ise formül A_{ii}=1+\tfrac12A_{ss} olur. s kendileşmemişse A_{ss}=1 ve F_i=0{,}5'tir; ardışık kendilemede F 0,5; 0,75; 0,875 diye ilerler. Türetilmiş soy kütüğünde şablon bu diziyi vermiştir. Şablon aynı bireyin hem baba hem ana olarak geçmesini uyarıyla bildirir, çünkü hayvan verisinde bu çoğu kez kayıt hatasıdır; bitki verisinde olağandır.
62.10 Kaynaklar
- Amadeu, R. R., Cellon, C., Olmstead, J. W., Garcia, A. A. F., & Resende, M. F. R., Jr. (2016). AGHmatrix: R package to construct relationship matrices for autotetraploid and diploid species: A blueberry example. The Plant Genome, 9(3). https://doi.org/10.3835/plantgenome2016.01.0009
- Henderson, C. R. (1976). A simple method for computing the inverse of a numerator relationship matrix used in prediction of breeding values. Biometrics, 32(1), 69–83. https://doi.org/10.2307/2529339
- Kraemer, P., & Gerlach, G. (2017). Demerelate: Calculating interindividual relatedness for kinship analysis based on codominant diploid genetic markers using R. Molecular Ecology Resources, 17(6), 1371–1377. https://doi.org/10.1111/1755-0998.12666
- Li, C. C., Weeks, D. E., & Chakravarti, A. (1993). Similarity of DNA fingerprints due to chance and relatedness. Human Heredity, 43(1), 45–52. https://doi.org/10.1159/000154113
- Lynch, M. (1988). Estimation of relatedness by DNA fingerprinting. Molecular Biology and Evolution, 5(5), 584–599. https://doi.org/10.1093/oxfordjournals.molbev.a040518
- Lynch, M., & Ritland, K. (1999). Estimation of pairwise relatedness with molecular markers. Genetics, 152(4), 1753–1766. https://doi.org/10.1093/genetics/152.4.1753
- Mrode, R. A. (2014). Linear models for the prediction of animal breeding values (3rd ed.). CABI. https://doi.org/10.1079/9781780643915.0000
- Pew, J., Muir, P. H., Wang, J., & Frasier, T. R. (2015). related: An R package for analysing pairwise relatedness from codominant molecular markers. Molecular Ecology Resources, 15(3), 557–561. https://doi.org/10.1111/1755-0998.12323
- Queller, D. C., & Goodnight, K. F. (1989). Estimating relatedness using genetic markers. Evolution, 43(2), 258–275. https://doi.org/10.1111/j.1558-5646.1989.tb04226.x
- Resende, M. F. R., Jr., Muñoz, P., Resende, M. D. V., Garrick, D. J., Fernando, R. L., Davis, J. M., Jokela, E. J., Martin, T. A., Peter, G. F., & Kirst, M. (2012). Accuracy of genomic selection methods in a standard data set of loblolly pine (Pinus taeda L.). Genetics, 190(4), 1503–1510. https://doi.org/10.1534/genetics.111.137026
- Ritland, K. (1996). Estimators for pairwise relatedness and individual inbreeding coefficients. Genetical Research, 67(2), 175–185. https://doi.org/10.1017/S0016672300033620
- Sinnwell, J. P., Therneau, T. M., & Schaid, D. J. (2014). The kinship2 R package for pedigree data. Human Heredity, 78(2), 91–93. https://doi.org/10.1159/000363105
- VanRaden, P. M. (2008). Efficient methods to compute genomic predictions. Journal of Dairy Science, 91(11), 4414–4423. https://doi.org/10.3168/jds.2007-0980
- Wang, J. (2002). An estimator for pairwise relatedness using molecular markers. Genetics, 160(3), 1203–1215. https://doi.org/10.1093/genetics/160.3.1203
- Wright, S. (1922). Coefficients of inbreeding and relationship. The American Naturalist, 56(645), 330–338. https://doi.org/10.1086/279872